Sistemas de apareamiento
Monogamia, poliginia de harén, poliginia en serie y promiscuidad: qué especies practican cada sistema, por qué hay tantos y quién cuida de la puesta y de los pollos.
Entre las aves en general la monogamia es la regla: HBW recoge la cifra de D. Lack, algo más del 90 % de las especies. Los galliformes, y los faisanes en particular, se salen de ella: cerca de un tercio de los géneros de tetraónidos, pavos, codornices americanas, faisanes y pintadas se consideran típicamente poligínicos o promiscuos, una proporción muy superior a la del conjunto de las aves, y en los fásidos la monogamia aparece en prácticamente todos los géneros de perdices pero solo en la mitad, aproximadamente, de los de faisanes (del Hoyo et al., 1994). Johnsgard resume la relación de fondo con una frase: entre los faisanes existe una correlación bastante estrecha entre el dimorfismo del plumaje y la estrategia reproductora (Johnsgard, 1986).
Este capítulo ordena lo que se sabe y, sobre todo, lo que no se sabe. Gran parte de la información procede de aves cautivas o de observaciones sueltas, y la de los grandes manuales es de hace décadas: Johnsgard escribía en 1986 y HBW en 1994. Conviene leer cada afirmación con esa fecha, porque el comportamiento reproductor de muchas especies de bosque tropical y de montaña sigue sin estudiarse en libertad.
Cuatro maneras de aparearse
- Monogamia
- El macho y la hembra forman pareja al menos durante la temporada de cría y ambos participan, en distinto grado, en la crianza. Johnsgard cita tres géneros de faisanes con vínculos de pareja que duran toda la temporada: el ensangrentado (Ithaginis), los orejudos (Crossoptilon) y el Wallich (Catreus) (Johnsgard, 1986). Según Johnsgard, los tres tienen un dicromatismo limitado, sin iridiscencia en el macho (Johnsgard, 1986).
- Poliginia de harén (simultánea)
- Un macho se asocia al mismo tiempo con varias hembras gregarias. HBW cita como ejemplos el gallo rojo, el faisán de Lady Amherst y, como caso mejor conocido, el faisán común de las poblaciones introducidas, donde se han registrado hasta 18 hembras con un solo macho territorial y otros machos con muy pocas o con ninguna (del Hoyo et al., 1994).
- Poliginia en serie (secuencial)
- El macho se empareja con una hembra tras otra. HBW señala que no hay prueba concluyente de que sea la estrategia principal de ningún fásido, aunque se cree que el macho del tragopán satyr permanece con la hembra solo hasta el comienzo de la puesta o de la incubación (del Hoyo et al., 1994). Johnsgard supone algo parecido para el kalij y para el gallo de Sonnerat según Ali y Ripley (Johnsgard, 1986).
- Promiscuidad
- Macho y hembra solo se encuentran para copular. HBW distingue dos pautas: con machos agregados, que solo se da en los dos pavos reales asiáticos, y con machos dispersos, propia del faisán pavo malayo, el gran argus y el argus de Rheinard, que preparan «pistas de baile» en el bosque (del Hoyo et al., 1994). Johnsgard considera que solo en los pavos reales (Pavo) ha evolucionado algo comparable a la arena de exhibición de ciertos urogallos, con varios machos juntos y la hembra eligiendo entre ellos (Johnsgard, 1986).
Por qué hay tantos sistemas: el hábitat y los pollos
Dos razones aparecen una y otra vez en la literatura. La primera es la propia biología de los pollos: como son nidífugos, se mueven y se alimentan casi desde que nacen, de modo que a los padres solo les queda calentarlos, guiarlos hacia el alimento y vigilar; una sola hembra puede hacer todo eso y la presencia de un segundo adulto rara vez duplica la eficacia. El resultado es un vínculo más corto, que deja al macho libre para buscar otras hembras, y una competencia intensa entre machos por pocas hembras, que favorece cualquier rasgo, de aspecto o de conducta, que mejore la capacidad de atraerlas: plumajes más extravagantes o mejor capacidad de combate (del Hoyo et al., 1994).
La segunda razón es el hábitat. Johnsgard resume a Ridley (trabajo entonces en prensa): la sociabilidad depende sobre todo del medio, porque los faisanes que viven o buscan comida en espacios abiertos son gregarios por el mayor riesgo de depredación, y como esas especies comen sobre todo vegetales no compiten con fuerza por alimento en la época de cría, mientras que los de bosque suelen ser solitarios, aparentemente para evitar la competencia por una comida escasa (Johnsgard, 1986). En terreno abierto los machos vigilan a las hembras y los vínculos de pareja son largos; en el borde del bosque predomina la poliginia de harén; y en el bosque tropical lo habitual es la poliginia en serie o la promiscuidad, favorecida por los ciclos de cría asíncronos de los trópicos (Johnsgard, 1986). HBW lo formula como una cuestión de vigilancia de la pareja (mate guarding): donde no hay vegetación que oculte a las hembras, el macho las guarda de depredadores y de otros machos; si las hembras son gregarias, un solo macho puede guardar a varias y aparece el harén; en el bosque denso, las hembras quedan ocultas, la vigilancia no compensa y el vínculo puede reducirse a la cópula (del Hoyo et al., 1994).
| Medio y géneros (según Ridley, en Johnsgard, 1986) | Hembras | Duración del vínculo y sistema |
|---|---|---|
| Matorral y pastizal abierto: Ithaginis, Catreus, Crossoptilon | No gregarias | Vínculo durante toda la temporada de cría |
| Borde de bosque o de matorral, con alimentación a campo abierto: Gallus, Phasianus, Syrmaticus, Lophophorus, Pavo | Gregarias | Toda la temporada en Gallus; hasta la incubación en Phasianus, Syrmaticus y Lophophorus; solo hasta la fecundación en Pavo |
| Bosque de montaña: Pucrasia, Tragopan, Chrysolophus | Solitarias | Hasta la incubación; solo hasta la fecundación en Chrysolophus |
| Bosque tropical: Lophura, Polyplectron, Argusianus, Rheinartia, Afropavo | No gregarias | Poliginia en todos menos Lophura y, probablemente, Afropavo; en Afropavo parece haber un vínculo monógamo durante la temporada |
Johnsgard (1986, cap. 6). El Congo se considera un faisán muy primitivo, por lo que su monogamia sería, según Johnsgard, la conservación de un rasgo original y no una adquisición posterior.
Johnsgard añade una hipótesis evolutiva: la tendencia general en los faisanes, como en las codornices y los urogallos, habría sido pasar de sistemas monógamos antiguos a otros poligínicos o promiscuos siempre que las condiciones ecológicas lo permitían, y probablemente más de una vez, de modo que el grupo podría tener origen polifilético y proceder de perdices que en su mayoría abandonaron la monogamia (Johnsgard, 1986). Las excepciones a la regla del hábitat también están documentadas: el faisán noble (Lophura ignita), de bosque primario, se ve en grupos de hasta diez (del Hoyo et al., 1994).
Qué sistema se atribuye a cada especie
La tabla siguiente reúne lo que dicen las fuentes para las especies de las que hay algo que decir. Se ha respetado la forma en que cada obra lo expresa («probable», «se supone», «en cautividad»), porque la certeza es muy desigual. Las fichas enlazadas contienen el detalle y las fuentes originales.
| Especie | Sistema de apareamiento según las fuentes | Fuentes |
|---|---|---|
| Faisán ensangrentado | Monógamo según casi todos los autores, con parejas y crías juntas en invierno (Beebe); Grahame habla de «monogamia laxa» dentro de los bandos; Madge y McGowan: probablemente monógamo, aunque se han alegado poligamia y poliandria | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán satyr | Desconocido; quizá el macho permanece con la hembra solo hasta la puesta o la incubación y puede aparearse luego con otra; Lelliott lo juzga probablemente monógamo | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Temminck | Desconocido; presumiblemente monógamo, pero las hembras crían solas | (Madge y McGowan, 2002) |
| Tragopán de Blyth | Desconocido (poquísimos datos de libertad y de cautividad) | (Madge y McGowan, 2002) |
| Tragopán de Cabot | Monógamo y poligínico: el macho permanece con una hembra al principio de la temporada y, al avanzar la incubación, se alimenta solo o con otros machos o se aparea con otras hembras que entran en su territorio | (Madge y McGowan, 2002) |
| Koklas | Monógamo, con el macho cerca de la hembra incubando y participando en la cría de los pollos | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal del Himalaya | Incierto; Ridley lo juzgó poligínico, con vínculo desde el apareamiento hasta la incubación, y Madge y McGowan sospechan poligamia | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal de Sclater y monal chino | Desconocido | (Fichas de la web, 2026) |
| Gallo rojo | Poligínico en la mayoría de los estudios recientes (de ninguna a cuatro hembras por macho); Madge y McGowan: variable, con monogamia y poligamia ambas frecuentes | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo de Sonnerat | En desacuerdo: poliginia en serie (Ali y Ripley) o monogamia con parejas todo el año (Beebe); poligínico facultativo en cautividad | (Johnsgard, 1986) |
| Gallo verde | Se supone monógamo, por haberse visto solo parejas | (Madge y McGowan, 2002) |
| Orejudos | Monógamos según todos los observadores; Madge y McGowan: monogamia presumida en el orejudo blanco | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Kalij | Desacuerdo: de uno a tres machos con hembras o parejas con crías; para Johnsgard, probablemente poligínico facultativo | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán plateado | Poligínico según casi todos los autores: de dos a cinco hembras por macho, juntas todo el año bajo el dominio del macho (poliginia de harén) | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Swinhoe | Poliginia sospechada, pero se ven parejas; Wayre lo creía monógamo por las aves asilvestradas de Brownsea | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Prelado y noble | Monógamos en cautividad; en libertad se desconoce | (Johnsgard, 1986) |
| Faisán Bulwer | Desconocido; el dimorfismo sugiere poliginia, pero se vieron parejas con pollos | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Wallich | Monógamo según todos; la duración del vínculo en libertad se desconoce | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán venerado | Poligínico al menos facultativo según Johnsgard; algunos autores lo creen monógamo; Madge y McGowan: patrón poco claro | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Hume, Elliot y Mikado | Poligínicos (al menos facultativos) en cautividad; para el Mikado, Severinghaus pensaba que los silvestres podrían ser monógamos | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán cobrizo | Incierto: Yamashina lo cree poligínico; Beebe, tan monógamo como poligínico | (Johnsgard, 1986) |
| Faisán común | Poliginia de harén, muy estudiada; hasta 18 hembras por macho en las poblaciones introducidas | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán verde | Flexible: polígamo y a la vez socialmente monógamo según las poblaciones; harenes de cinco hembras | (Fichas de la web, 2026) |
| Faisán dorado | En libertad, casi siempre un macho con una sola hembra, con poliginia ocasional probable; en cautividad lo habitual es la poliginia | (Johnsgard, 1986) |
| Faisán de Lady Amherst | Poco claro: machos con una, con dos o, raramente, con más hembras; poligínico en cautividad | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo de Sumatra (cola bronceada) | Sin datos de libertad; poco dimorfismo y exhibición simple, por lo que Johnsgard cree posible solo poca no monogamia | (Johnsgard, 1986) |
| Pavo de Rothschild | Desconocido; Ridley cree que los machos de la mayoría de los faisanes pavo abandonan a la pareja durante o tras la puesta | (Johnsgard, 1986) |
| Faisán pavo gris | Pareja todo el año según Baker y Beebe; Ridley: vínculo roto hacia la incubación; poligamia observada en cautividad | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo de Germain | Normalmente monógamo según la cautividad, con algún macho apareado con dos hembras a la vez | (Johnsgard, 1986) |
| Pavo malayo | Casi seguro poligínico, probablemente en serie; el macho mantiene un territorio al que acude la hembra | (del Hoyo et al., 1994; Madge y McGowan, 2002) |
| Pavo de Borneo y pavo de Palawan | Borneo: asocial en cautividad; Palawan: monógamo según Whitehead (en libertad) y Jeggo (cautividad) | (Johnsgard, 1986) |
| Argus de Rheinard | Se cree polígamo, sin nidos conocidos en libertad cuando Madge y McGowan escribieron | (del Hoyo et al., 1994; Madge y McGowan, 2002) |
| Gran argus | Poligínico, sin duda para Davison; macho y hembra solo se encuentran en la pista de baile | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo real azul | Poligínico, con harén, y machos agrupados que se exhiben ante las hembras | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Pavo real verde | Dispersión de los machos poco conocida; se ha citado también poliginia de harén | (del Hoyo et al., 1994) |
| Pavo del Congo | Monógamo (aparentemente, con vínculo durante la temporada), aunque con certeza desigual | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
Los espacios en blanco de la tabla son los de las fuentes: la mayoría de los sistemas atribuidos a especies de bosque tropical o de montaña se infieren del dimorfismo o de las parejas cautivas.
Cuidado de la puesta y de los pollos: solo la hembra, casi siempre
En todos los faisanes de los que se tiene noticia incuba únicamente la hembra (Johnsgard, 1986). La presencia del macho en la cría es otra cuestión, y varía. En el koklas, el macho permanece cerca durante la incubación y, una vez nacidos los pollos, acompaña a la hembra y participa en la protección de la pollada; en el Wallich, la pareja es monógama; en el ensangrentado, Beebe vio parejas y crías juntas en invierno; y en el pavo del Congo, el macho permanece cerca del nido durante la incubación (Fichas de la web, 2026; Johnsgard, 1986). En el faisán de Reeves, por el contrario, Johnsgard cita la aparente falta de interés del macho por los pollos como uno de los argumentos para considerarlo poligínico (Johnsgard, 1986), y en el pavo real azul y el gran argus la hembra incuba y cría sola, mientras los machos siguen llamando y manteniendo sus lugares de exhibición (del Hoyo et al., 1994). HBW lo resume con una comparación de varias especies de galliformes hecha por H. Sigurjónsdóttir: los sexos son parecidos en las monógamas con ayuda del macho en la cría, y distintos, a veces de forma llamativa, en las poligínicas o promiscuas donde el macho no participa (del Hoyo et al., 1994).
Territorio, harenes y jerarquías
Cuánto espacio defiende un macho, cómo se organizan las bandadas y qué ocurre con la dominancia cuando llega la época de cría.
El territorio de los faisanes se conoce mal. Casi todo lo que se sabe procede de unas pocas especies muy estudiadas (el faisán común, el gallo rojo), de algunos recuentos de machos cantores y de observaciones en recintos, y rara vez se ha medido la defensa real de un espacio. Johnsgard advierte, hablando del faisán común, que los llamados «territorios de canto» o «de cría» casi nunca se han evaluado como espacios defendidos (Johnsgard, 1986).
El faisán común: un territorio de límites elásticos
Los estudios con faisán común dan imágenes distintas. Gates y Hale, en Wisconsin, encontraron que en primavera los machos se concentraban en áreas de no más de media milla cuadrada; el área más próxima a un territorio era la zona de canto, donde el macho cantaba con más intensidad, reunía su harén y concentraba el cortejo, pero esas zonas rara vez tenían un límite común con peleas entre machos y algunos cantaban a media milla de su centro de actividad. Con una densidad de solo 0,7 machos por cada 100 acres, concluyeron que se trataba de una «zona móvil de intolerancia» y no de territorios definidos (Johnsgard, 1986). Estudios con densidades mayores (de 5,0 a 5,8 machos por 100 acres) hallaron territorios bien definidos: Burger, de 1,2 a 9,8 acres; Taber, de 12 a 13 acres en abril, comprimidos a unos 6 en mediados de junio; Stokes, de 6 a 10 acres en Pelee Island (Johnsgard, 1986). Según los observadores reunidos por Edminster (1954), las áreas de canto van de 3 o 4 acres a entre 25 y 75, y Kozlowa, que estudió la especie en Asia, prefería hablar de «rutas de patrulla» de no más de 400 a 500 m, trazadas y retrazadas por los machos al buscar comida y pareja sin que ella viera nunca a un macho expulsar a otro (Johnsgard, 1986). En conjunto, Johnsgard concluye que los límites son elásticos y dependen de la densidad de población, la cobertura y la topografía (Johnsgard, 1986).
Las hembras, por su parte, forman harenes laxos. Fuera de la época de cría el faisán común suele vivir en bandos de un solo sexo; las hembras se dispersan a finales de marzo y principios de abril, cuando el tamaño medio del grupo pasa de seis a dos aves, y mientras se dispersan entran y salen de los harenes. A cada macho territorial se asocian números muy variables de hembras, hasta 18 en los casos citados, y la hembra se ocupa sola de elegir el nido, incubar y criar, mientras el macho sigue defendiendo y exhibiéndose ante las hembras que no incuban; cuando todas las hembras de su harén han anidado, puede abandonar el territorio (del Hoyo et al., 1994). Gates y Hale vieron además que el macho adulto permanece fiel durante toda su vida a la zona en la que crió por primera vez, y que las hembras tienden a volver a sus antiguos lugares de nidificación más que a los de invernada (Johnsgard, 1986).
Del gallo rojo a los faisanes pavo: cuánto espacio se defiende
| Especie | Dato de campo o de cautividad | Fuente |
|---|---|---|
| Gallo rojo (San Diego, aves asilvestradas) | Unos 10 dormideros de entre 6 y 30 aves; el espacio defendido, donde se concentraban, medía en promedio 100–150 pies de diámetro; los machos dominantes se asociaban con una o varias hembras, y los subordinados quedaban a menudo excluidos del contacto con ellas | (Johnsgard, 1986) |
| Monal del Himalaya | Los machos están dispersos en primavera, pero el 14,5 % de los vistos estaban en grupos de dos y el 13 % en grupos mayores; sin límites territoriales estrictos, sino «áreas de campeo» poco definidas | (Johnsgard, 1986) |
| Koklas | Once machos cantando en 1,2 km² en mayo, lo que sugiere un territorio máximo de unas 10 ha (25 acres) | (Johnsgard, 1986) |
| Faisán Wallich | Cuatro individuos cantando en 0,5 km² en mayo (≈ 12 ha por macho, en el supuesto de que fueran machos) | (Johnsgard, 1986) |
| Faisán venerado (recinto) | Con 20 machos inicialmente, no hubo conducta territorial; reducidos a ocho en abril, el recinto se dividió en dos mitades defendidas por tres machos cada una, y los dos restantes fueron sumisos ante todos | (Johnsgard, 1986) |
| Faisán de Elliot (recinto) | En recintos pequeños los machos se pelean hasta que uno mata a los demás; incluso en recintos de 46 × 61 m el macho dominante necesita mucho espacio | (Johnsgard, 1986) |
| Gran argus | Pistas de baile separadas, en media, por unos 400 m; machos que mueren dejan su pista a otros en años siguientes | (Johnsgard, 1986) |
| Pavo real azul | Zonas de exhibición de 2 a 3 m² defendidas ante otros machos; territorios de cría de 0,05 a 0,5 ha, con 1 a 4 lugares de exhibición | (Fichas de la web, 2026) |
| Faisán pavo malayo | De 92 zonas de exhibición observadas, 88 estaban en viejos senderos de caza o de uso humano poco frecuente, en terreno llano o suave; la más pequeña medía 40 cm de diámetro y la mayor, 1 × 2 m; una misma zona podía usarse varios meses y reutilizarse años después | (Johnsgard, 1986) |
Todos los datos son de las fechas de los manuales (hasta 1986). Los del pavo real azul proceden de la ficha de la web, que cita a Birds of the World.
En los faisanes de bosque tropical el espacio se defiende sobre todo con la voz. Del faisán noble, Johnsgard dice que carece de llamadas territoriales fuertes y que probablemente el aleteo sonoro sea su principal señal de territorio; los machos mantienen en el periodo de preparación (mayo y junio) pequeñas zonas centrales bien espaciadas, dentro de áreas de campeo mayores (Johnsgard, 1986). Del faisán Hume, que los machos anuncian su presencia con un aleteo audible a más de 30 m, sobre todo en primavera y durante la primera hora tras dejar el dormidero (Johnsgard, 1986). Johnsgard cuenta, del kalij, que imitar el aleteo sacudiendo un pañuelo suele atraer a otros machos corriendo, lo que sugiere territorios bastante próximos en algunos hábitats (Johnsgard, 1986).
La jerarquía de picoteo
Las jerarquías sociales de los galliformes, llamadas «órdenes de picoteo» desde que se descubrieron en la gallina doméstica, están muy estudiadas. Johnsgard las resume así: se forman relaciones individuales de dominancia-subordinación muy pronto, que acaban siendo una jerarquía esencialmente lineal; una bandada mixta suele tener dos órdenes, uno por sexo, porque los machos son más agresivos y las hembras suelen ser pasivas en la dominancia entre sexos; el mantenimiento exige memoria individual, y tras separaciones de dos semanas o más la jerarquía puede perderse por olvido. Se asocian a la dominancia el tamaño de la cresta, la ausencia de muda, el tamaño general y la postura de amenaza, y como parte de ello se relacionan con los niveles de hormonas masculinas (Johnsgard, 1986). HBW añade que tanto el gallo rojo como el faisán común tienen jerarquías lineales y que existen indicios de patrones de dominancia en otros faisanes y perdices (del Hoyo et al., 1994).
En el campo, Collias y Taber marcaron con color a 38 machos y 170 hembras de faisán común. Entre grupos de tres, nueve y ocho machos asociados a puntos de alimentación solo vieron dos desviaciones de una jerarquía lineal, y ambas coincidieron con un macho que se hizo territorial y ganó ventaja temporal sobre otros dos. Entre 14 hembras en un comedero hubo pocas desviaciones, y en 85 repeticiones de encuentros entre las mismas dos hembras no hubo una sola inversión de dominancia. Todos los machos dominaban a todas las hembras, pero dejaban de picotearlas poco después de que empezase la cría. Banks, con 26 hembras de gallo rojo en cuatro bandos cautivos, encontró jerarquías tan lineales como las de la gallina doméstica (Johnsgard, 1986).
Dominancia y éxito de apareamiento
Hay una relación positiva entre la posición de un macho en la jerarquía y su éxito en el apareamiento (Lill y Wood-Gush, en Johnsgard). Pero el macho más dominante no cortejará necesariamente más veces ni intentará más cópulas que otros de rango menor; aun así, es el que consigue más cópulas completas. Del mismo modo, las hembras más dominantes tienden a ser menos receptivas, porque la postura sumisa de agacharse facilita la cópula. Los machos varían de forma heredable en frecuencia de cortejo y capacidad de provocar el agachamiento de la hembra, y en un estudio la relación entre el tamaño de la cresta y la frecuencia de cópula fue incluso negativa; otros trabajos hallaron una correlación negativa entre el volumen de semen y la tasa de cópula, y Wood-Gush apuntaba que el macho más dominante podría reducir la fertilidad del grupo al impedir que otros machos copulen (Johnsgard, 1986). Conviene recordar que casi todo ello procede de gallinas y gallos domésticos y de aves en recintos.
Dimorfismo sexual y selección sexual
Por qué los machos de unos géneros son tan vistosos y los de otros apenas se distinguen de las hembras, y qué relación guardan el plumaje, el tamaño, el sistema de apareamiento y el hábitat.
La pregunta de por qué un macho de faisán dorado o de pavo real luce lo que luce, y el de un ensangrentado o un orejudo casi no se distingue de su hembra, tiene una respuesta general y muchas excepciones. La general es la que Johnsgard formula para los vertebrados: el dimorfismo, tanto el de color y plumaje (dicromatismo) como el de conducta, tiende a ser máximo en las especies poligínicas o promiscuas, de acuerdo con las ideas aceptadas sobre cómo la selección sexual moldea las señales sociales (Johnsgard, 1986). Las excepciones son las que justifican seguir mirando especie por especie.
Lo que dice la tabla de Johnsgard
Johnsgard resumió la situación de los 16 géneros en una tabla que relaciona el vínculo de pareja con el dimorfismo. En ella los tres géneros con vínculo de toda la temporada (Ithaginis, Crossoptilon y Catreus) tienen dicromatismo limitado, carecen siempre de iridiscencia en el macho y muestran muy poca diferencia de peso entre sexos. La tabla que sigue reproduce solo las columnas de dicromatismo y de duración del vínculo, porque la columna de cociente de pesos se ha leído con las filas desordenadas en la copia disponible y no se ha podido reasignar con seguridad.
| Grupo (agrupación de Johnsgard) | Dicromatismo sexual | Duración del vínculo (y sistema supuesto) |
|---|---|---|
| Monógamos de campo abierto o matorral: ensangrentado | Moderado | Toda la temporada |
| Orejudos | Leve | Toda la temporada |
| Wallich (Cheer) | Leve | Toda la temporada |
| Poligínicos de borde: gallos | Moderado | Toda la temporada (poliginia de harén) |
| Faisanes típicos (Phasianus) | Moderado | Hasta la incubación (¿poliginia de harén?) |
| Monales | Alto | Hasta la incubación (¿poliginia territorial?) |
| Faisanes de cola larga (Syrmaticus) | Moderado | Hasta la incubación (poliginia territorial) |
| Monógamos de bosque: pavo del Congo | Leve | Toda la temporada |
| Koklas | Moderado | Hasta la incubación (?) |
| Tragopanes (Ridley los considera poligínicos) | Moderado | Hasta la incubación (?) |
| Poligínicos o promiscuos de bosque: faisanes pavo | Variable | Hasta la incubación (?) |
| Faisanes del género Lophura («gallofaisanes») | Moderado | Hasta la incubación (?) |
| Faisanes con esclavina (Chrysolophus) | Alto | Solo el apareamiento (?) |
| Argus de Rheinard | Alto | Solo el apareamiento |
| Gran argus | Alto | Solo el apareamiento |
| Pavos reales | Alto | Solo el apareamiento |
Johnsgard (1986, tabla 14), con las filas asignadas por su orden en una lectura con ruido; los signos de interrogación son los de la tabla original.
Entre los poligínicos de borde de bosque el patrón es menos claro. El dicromatismo es en general alto, como cabría esperar tanto del sistema de pareja como de la ventaja de una coloración llamativa en terreno abierto, pero los cocientes de peso estimados entre machos y hembras oscilan entre 1,1 y 1,7 y, curiosamente, son mayores en las formas con menos dicromatismo y menores en las más dicromáticas. Johnsgard lo interpreta como que en algunas formas la selección sexual habría favorecido el gran tamaño del macho, asociado a la dominancia territorial o jerárquica, mientras que en otras, como el monal, la presión selectiva principal habría actuado sobre el desarrollo de señales y conductas atractivas (Johnsgard, 1986).
Los casos más extremos son los argus y los pavos reales, en los que se combinan un cociente de pesos extremo, un plumaje masculino muy elaborado y exhibiciones muy elaboradas, justo lo esperable en especies promiscuas; las hembras pesan en torno a dos tercios del peso del macho, es decir, se acercan a la proporción de 2 a 1 de algunos grandes urogallos de arena, como el urogallo de las artemisas o el gran urogallo. Del argus de Rheinard no había datos de peso adulto (Johnsgard, 1986). En cambio, los faisanes con esclavina (Chrysolophus) tienen una disparidad de pesos sorprendentemente pequeña, no mayor que la de las especies monógamas, aunque su grado real de poliginia y la duración del contacto con la hembra en libertad son inciertos (Johnsgard, 1986).
Los casos que no encajan
Entre los faisanes de bosque que se suponen monógamos, el pavo del Congo y el koklas plantean dudas. El Congo muestra poco dimorfismo y un plumaje en general oscuro, sin carúnculas faciales brillantes, crestas ni barbas, y no se cree que defienda ni anuncie grandes territorios; la duración del vínculo y el cociente de pesos adulto siguen siendo inciertos (Johnsgard, 1986). En el Wallich, Johnsgard relaciona la ausencia de iridiscencia con la reducción de la presión de selección sexual de una especie monógama y con un hábitat abierto de pastizal, donde el plumaje discreto ofrece el mejor camuflaje (Johnsgard, 1986). A propósito del faisán Swinhoe, de plumaje relativamente dimórfico, Johnsgard recuerda que el kalij, parecido, tiene casi tanto dimorfismo de plumaje y se le atribuye a menudo un sistema monógamo, lo que impide tomar el dimorfismo como prueba del sistema (Johnsgard, 1986). Por último, los faisanes pavo muestran una diversidad considerable de dicromatismo (leve en el pavo de cola bronceada, quizá máximo en el de Palawan) que bien podría reflejar variaciones del vínculo de pareja aún no determinadas en el campo (Johnsgard, 1986).
Otras lecturas: HBW y la vista de las aves
HBW recoge dos estudios sobre todo el orden de los galliformes. Sigurjónsdóttir encontró que cuanto mayor es la diferencia de tamaño entre los sexos, mayor es también la de color, y que los machos grandes y vistosos suelen ayudar poco en la cría, a diferencia de los de especies menos dimórficas. Ridley halló que tanto el dimorfismo de tamaño como el de color son menores en las monógamas, y que los habitantes del bosque son a la vez más grandes y más coloridos que los de hábitats abiertos como el pastizal (del Hoyo et al., 1994). HBW concluye, con Sigurjónsdóttir, que en los galliformes el dimorfismo es resultado de la selección sexual: en las especies poligínicas y promiscuas, donde el macho no participa en la cría, la presión sobre los machos para acceder a las hembras es mayor, y un macho sin vínculo duradero puede aparearse con varias, de modo que la competencia entre machos puede ser feroz (del Hoyo et al., 1994).
La coloración tiene sentido como señal porque las aves la ven bien. Johnsgard resume, a partir de estudios con la gallina doméstica, que la visión es aguda por la gran cantidad de conos de la retina, que el color es muy importante en el comportamiento (y probablemente en el de la mayoría de los faisanes), y que el intervalo de colores percibidos se parece al humano; a los pollitos les atraen innatamente el violeta y el naranja y rechazan el verde (Johnsgard, 1986). Todo ello se ha medido en gallos domésticos y se supone aplicable a los faisanes.
Los adornos del macho
Colas, trenes, ocelos, crestas, collares, carúnculas, cuernos, espolones y plumas de las alas: qué son, cuándo se ven y para qué se muestran.
Los adornos de los faisanes macho no son decoración permanente. Muchos permanecen ocultos casi todo el año y solo se muestran un instante, en el momento álgido de la exhibición. Johnsgard destaca que el grupo explota relativamente pocos tipos de señal, y que estos se parecen mucho de un género a otro; lo que cambia es su desarrollo y su combinación (Johnsgard, 1986). Este apartado los repasa uno a uno y el siguiente los sitúa en la secuencia de cada cortejo.
- Colas, trenes y coberteras
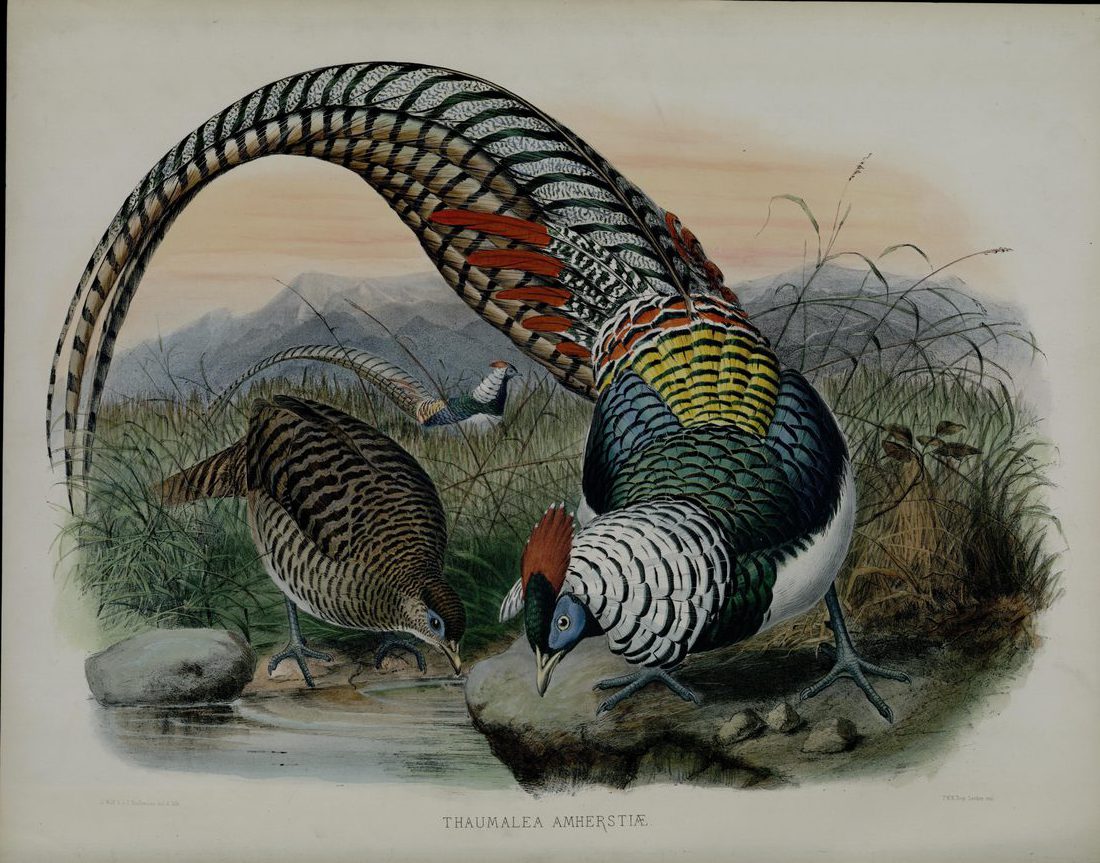
- La cola ladeada o abierta es una señal casi universal en los faisanes. Un caso especial es el tren del pavo real: HBW recuerda que, al contrario de lo que parece, no lo forman las rectrices, apagadas y de tamaño moderado, sino de 100 a 150 plumas coberteras supracaudales, cada una con barbas largas y disgregadas y un gran ocelo subterminal; en total la cola del pavo real azul mide unos 160 cm de unos 230 cm de longitud total (del Hoyo et al., 1994). En el faisán de Lady Amherst las plumas de la cola miden al menos 100 cm, a veces más del doble de la cabeza y el cuerpo (del Hoyo et al., 1994). En los pavos reales, Johnsgard destaca que son las coberteras las que forman la rueda y que el papel de las alas lo asume la cola (Johnsgard, 1986). En el pavo del Congo, según la Wikipedia citada por la ficha, los machos abren las timoneras, y no las coberteras como el resto de los pavos (Fichas de la web, 2026).
- Ocelos
- Los «ojos» aparecen en tres lugares: en la cola y las coberteras (pavos reales, faisanes pavo), en el dorso y las alas (faisanes pavo) y en las secundarias del gran argus, cada una con una cadena de hasta 20 grandes ocelos dorados que solo se ven bien durante la danza y que, ocultos, hacen que el plumaje parezca mucho más apagado y casi críptico sobre el suelo del bosque (del Hoyo et al., 1994). Johnsgard cuenta que, en el pavo gris y el pavo de Germain, todo el dorso, las coberteras y la cola van salpicados de ocelos iridiscentes; en el pavo de cola bronceada, en cambio, la iridiscencia falta en el dorso y es pobre en la cola (Johnsgard, 1986).
- Cresta, cuernos y «orejas»
- HBW distingue estructuras de plumas (crestas, «cuernos», collares) de las de piel (carúnculas, lóbulos). Hay crestas en el kalij y los pavos reales, entre otros; los «cuernos» de plumas aparecen en Pucrasia y Tragopan, y las «orejas» de los orejudos son plumas alargadas. En el pavo real azul la cresta se ve siempre, mientras que en el faisán pavo malayo solo se erige durante la exhibición (del Hoyo et al., 1994). En el koklas, según la ficha, los mechones se yerguen como orejas de conejo en la postura lateral del cortejo (Fichas de la web, 2026).
- Esclavinas y golillas
- Solo el género Chrysolophus tiene la esclavina de plumas redondeadas que, plegada, parece un amasijo de plumas rayadas y, extendida durante la exhibición, forma un semicírculo alrededor y bajo el ojo, mientras la pequeña carúncula bajo el ojo se hincha hasta cubrir la parte baja de la mejilla (del Hoyo et al., 1994; Fichas de la web, 2026). Elliot ya observó en 1872 que el macho la lleva sobre la cara del lado vuelto hacia la hembra (Fichas de la web, 2026). En los gallos silvestres son las plumas del cuello (esclavinas) las que se erizan hacia el lado de la hembra (Fichas de la web, 2026).
- Carúnculas, barbas y lóbulos
- En muchos faisanes un parche de piel facial se congestiona durante la exhibición. Johnsgard lo considera señal casi universal, con su culminación en el Bulwer y su manifestación mínima en el ensangrentado (Johnsgard, 1986). HBW detalla los extremos: las barbas del faisán Bulwer, azul claro, cubren casi todo el lado de la cara y, congestionadas, se extienden por el cuello hasta llegar al dorso y por debajo de la cabeza en forma de arco, unos 18 cm de longitud; en los tragopanes el lóbulo gular, reducido e inconspicuo en reposo, cuelga y se despliega en la exhibición frontal revelando piel de dibujo brillante; barbas y lóbulos se ven poco o nada cuando el macho no exhibe (del Hoyo et al., 1994). Los cuernos erectos de los tragopanes miden unos 5–7 cm y el lóbulo, de 10 a 15 cm de largo por 5–7 de ancho (Gerrits); en el satyr el lóbulo llega a 100 mm y los cuernos a 75 mm (Delacour) (Fichas de la web, 2026).
- Espolones
- Los espolones están presentes en los machos (y en las hembras de algunos géneros, como Galloperdix) de muchos fásidos y ausentes en los demás galliformes. La mayoría tiene uno por pata, aunque en el faisán pavo malayo suele haber dos y se ha registrado un total de siete (tres en una pata y cuatro en la otra), y de ahí el nombre del género, «de muchos espolones». HBW los considera, razonablemente, armas de combate entre machos terrestres, y recoge también la afirmación, discutida, de que no tienen que ver con la competencia entre machos y que la hembra elegiría pareja por la longitud del espolón (del Hoyo et al., 1994). Beebe vio también en la presencia de espolones agudos en las hembras del faisán cola rosa una razón para dudar de su poliginia (Johnsgard, 1986).
- Alas y plumas de vuelo
- Johnsgard señala que los faisanes tienden a una exhibición con la cola abierta de lado, y que el color brillante se concentra en las coberteras alares más que en las remeras propiamente dichas, porque normalmente solo las primarias del lado opuesto al ave «blanco» caen hasta el suelo y no ofrecen buena superficie de señal (Johnsgard, 1986). En cambio, el colorido del dorso y de la rabadilla es de la máxima importancia visual, porque es lo que queda expuesto durante el vals; el gran argus y el pavo real llevan esa lógica al extremo, el primero con grandes secundarias ocelladas y el segundo con las coberteras de la cola (Johnsgard, 1986). En el tragopán de Temminck, al batir las alas, se ven las coberteras alares anaranjadas (Fichas de la web, 2026).
Johnsgard recuerda además que, en la gallina doméstica, el tamaño de la cresta se relaciona positivamente con la posición en la jerarquía, de modo que un adorno puede ser a la vez señal sexual y de dominancia (Johnsgard, 1986). En el gallo verde, Beebe notó que el macho exhibe la cabeza, aplanando el cuerpo y extendiendo la barbilla hasta que parece un simple eslabón entre dos grandes láminas de piel multicolores, cresta y barbilla (Fichas de la web, 2026).
Las voces del macho y de la hembra
Canto territorial, llamadas de cortejo y de comida, aleteos sonoros, alarmas y llamadas de la hembra: lo que se ha descrito y lo que se sabe de su función.
Para quien camina por un bosque de montaña o de llanura asiática, la voz es casi siempre la primera señal de que hay faisanes: HBW recuerda que el lamento a distancia del gran argus es uno de los sonidos más característicos de las selvas de colinas de Malasia e Indonesia, y que la llamada áspera del koklas es la marca de las mañanas frescas de primavera en los bosques de media altura del Himalaya occidental (del Hoyo et al., 1994). Los repertorios están bien descritos solo para unas pocas especies, y la función de las llamadas rara vez se ha demostrado; HBW lo recalca (del Hoyo et al., 1994). Este capítulo no reproduce sonogramas: solo se cita lo que los autores han medido con ellos.
El canto del macho: anunciar el territorio y atraer a la hembra
En las especies solitarias, la comunicación vocal se concentra en los machos durante la época de cría, con llamadas fuertes de anuncio y sonidos suaves a corta distancia en el cortejo o en los enfrentamientos; las hembras de esas especies hablan mucho menos. Las especies gregarias, en cambio, tienen repertorios mucho más amplios, porque necesitan mantener unida la bandada, avisar de peligros y recomponer el grupo (del Hoyo et al., 1994). La llamada de anuncio se describe como «territorial», «de canto» o «de atracción de hembras», y en espacios abiertos el macho suele ir a un lugar conspicuo para emitirla; Johnsgard resume, para los faisanes de bosque, que el canto fuerte y el uso de áreas de exhibición tradicionales son las claves con las que las hembras localizan a los machos sexualmente activos (del Hoyo et al., 1994; Johnsgard, 1986).
| Especie | Llamada del macho (según las fuentes) | Cuándo y dónde | Fuente |
|---|---|---|---|
| Faisán común | Grito fuerte, brusco y áspero de dos o tres sílabas, transcrito «korrk-kok» y de otras maneras; en condiciones favorables se oye hasta a una milla; suele seguirlo un aleteo | Amanecer y atardecer, sobre todo en primavera; puede oírse todo el año | (Johnsgard, 1986) |
| Gallo rojo | El «quiquiriquí» de cuatro notas, con la tercera más sostenida y de mayor amplitud; las diferencias individuales podrían permitir el reconocimiento acústico | Máximo poco después del alba, con un segundo pico antes de salir el sol y otro antes de dormir | (Johnsgard, 1986) |
| Gallo de Sonnerat | Cuatro notas más discretas que las del rojo, precedidas de un aleteo sonoro, tipo aplauso | De octubre o noviembre a mayo; desde árboles, a veces de noche con luna | (Johnsgard, 1986) |
| Gallo verde | Tres notas (cha-aw-awk), también cacareo lento | — | (Madge y McGowan, 2002) |
| Kalij | Silbido-risita fuerte; el tamborileo del aleteo es quizá igual de importante | En el norte de la India, de marzo a mayo | (Johnsgard, 1986) |
| Koklas | Un «kok-kok-kok… kokras» distintivo; Severinghaus reunió 14 transcripciones, con probables variantes geográficas | Empieza 30–45 min antes del amanecer, con máximo en los primeros 20–30 min; de noviembre a mayo como mínimo | (Johnsgard, 1986) |
| Faisán Wallich | Llamada fuerte y compleja, emitida por ambos sexos con la cabeza apuntando hacia arriba, que acaba en un crescendo de silbidos; se oye a más de una milla | Al amanecer y al atardecer | (Johnsgard, 1986) |
| Orejudo blanco | Llamada muy fuerte, con el cuello y la cabeza estirados en vertical; se oye hasta a 3500 m; las parejas a veces cantan al unísono | Primera hora de la mañana y última de la tarde | (Johnsgard, 1986) |
| Tragopán satyr | Un lamento profundo repetido de 12 a 14 veces, cada vez más fuerte; desde una percha elevada | Máximo en abril, sobre todo antes del amanecer y durante unos 30 min | (del Hoyo et al., 1994; Madge y McGowan, 2002) |
| Temminck y Blyth | Quejidos que crecen en volumen; el Temminck termina en una especie de gruñido o graznido; el periodo de canto del Blyth es breve, quizá de menos de un mes | Temporada de cría | (Madge y McGowan, 2002) |
| Monal del Himalaya | Silbido estridente y fuerte, como el del zarapito; además un «crescendo del alba» de dos a cinco notas, emitido por ambos sexos | En Himachal Pradesh, de marzo a junio | (Johnsgard, 1986) |
| Faisán pavo gris | Un «phee-hoo» muy fuerte y penetrante, cada 10–15 s o cada minuto o más; es llamada de desafío a otros machos y de atracción | Durante buena parte del año, no solo en la cría | (Johnsgard, 1986) |
| Faisán pavo malayo | Llamada corta (silbido de dos notas, una por minuto, hasta 30 min seguidos) y larga (serie de notas ásperas con intervalos que bajan de unos 5 a 1,5 s; hasta 117 notas en una serie de hasta 3 min) | Sobre todo por la mañana; a veces de noche | (Johnsgard, 1986) |
| Gran argus | Llamada larga de 15 a 72 notas y llamada corta de dos notas, en tandas de hasta 12; se oyen a cerca de un kilómetro | De enero o febrero a junio o septiembre; mañana | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Argus de Rheinard | Llamada corta de tres sílabas (oo-kia-wau), de una a ocho veces seguidas y luego una pausa de unos 15 min; llamada larga de 8 a 17 notas | Marzo y abril en Annam; marzo o mayo en Malasia | (Johnsgard, 1986) |
| Pavo real azul | Johnsingh y Murali enumeraron 11 llamadas posibles; el macho repite una «may-awe», sobre todo en cría, mañana y tarde | Antes y después de dormir | (Johnsgard, 1986) |
Los transcritos fonéticos son los de cada autor y no se han unificado. «—» indica que la fuente consultada no da dato.
Sonidos que no son la voz: el aleteo
Muchos machos producen ruido con las alas. HBW dice que el aleteo sonoro («wing-whirring») está claramente diseñado para crear sonido y lo usan en el cortejo los machos del género Lophura; en el faisán cola rosa de Borneo, el nivel de sonido varía, y puede ser casi inaudible a cinco metros o llegar a 30 (del Hoyo et al., 1994). Johnsgard lo describe en el kalij (con un tamborileo comparable al de sacudir un trapo al viento), el plateado, el Swinhoe, el Salvadori, el prelado, el noble, el Hume, el Elliot, el Mikado, el cobrizo y el venerado, y en el faisán común antes y después del grito (Johnsgard, 1986). En el tragopán de Cabot el zumbido continuo «chi-chi-chi» de la época de cría se produce con las alas, no con la voz (Madge y McGowan, 2002). El gallo de Sonnerat y el de Lafayette preceden el canto de un fuerte golpe de alas (Fichas de la web, 2026). En el pavo real el estremecimiento del macho hace crujir las plumas de las alas (Johnsgard, 1986).
La llamada de comida
El «tidbitting» (la llamada de comida con la que el macho invita a la hembra a recoger un bocado) es uno de los pocos sonidos de los que existen medidas acústicas comparables. Johnsgard recoge los sonogramas de Stokes y Williams (1972): en el faisán común son notas graves a razón de unas tres por segundo; en el plateado, notas graves rápidas, de unas cinco por segundo; en el prelado, una serie de notas igualmente espaciadas a unas tres por segundo; y en el faisán pavo gris, una serie muy rápida de notas más agudas, de unas nueve por segundo (Johnsgard, 1986). HBW añade que la estructura de esta llamada varía poco entre las especies de faisanes y mucho más entre perdices, codornices y francolines; las pocas diferencias existentes se atribuyen a la presión de selección derivada del tamaño del cuerpo y del hábitat (del Hoyo et al., 1994).
Hembras, polluelos y alarmas
El repertorio mejor conocido es el del faisán común, y el de Heinz y Gysel (1970) describe unas 15 llamadas distintas: tres propias de los polluelos, seis de las hembras, tres de los machos adultos y dos (el siseo y la llamada de picoteo) comunes a ambos sexos; en el gallo doméstico se han descrito 19 tipos de llamada de adulto, incluidas las de las hembras en puesta o incubación (Johnsgard, 1986). En el faisán común, el macho da una llamada de alarma fuerte, parecida a su canto pero con un número variable de sílabas, una llamada «antagonista» ronca y prolongada que dirige a los subordinados, y una llamada de vuelo; la hembra con pollos, una «llamada de precaución de la nidada» y, tras alzar el vuelo, una llamada de reunión de los pollos; también emite una llamada precopulatoria cuando se agacha (Johnsgard, 1986). Kozlowa (1947) concluyó que las hembras reconocen la llamada del macho con el que se aparean (Johnsgard, 1986). Las llamadas de las hembras no se limitan al cortejo: en el gallo rojo, la hembra que acaba de poner emite un cacareo que, según HBW, incitaría la competencia entre los machos y favorecería que fecunde los huevos el más dominante (del Hoyo et al., 1994).
En las especies monógamas la voz de la hembra cuenta más que en las demás. En el Wallich, según Johnsgard, cantan ambos sexos, y los machos cautivos suelen cantar a dúo con los orejudos (Johnsgard, 1986); HBW añade que en esa especie la pareja canta junta, de manera que parece una sola ave, durante el coro del amanecer y del atardecer, y que el koklas canta un coro de unos 30 minutos en las mañanas de noviembre a junio (del Hoyo et al., 1994). En el faisán de Elliot, el sonido principal es un chasquido o un chuckle apagado, que Johnsgard describe como «relativamente primitivo y sencillo» (Johnsgard, 1986). En fin, los sonidos de alarma de los faisanes en general son fuertes y ásperos, y están descritos, entre otros, para el faisán pavo malayo y el pavo de Palawan (del Hoyo et al., 1994).
El repertorio de posturas: vals, aleteo, bocado y exhibición frontal
Las diez conductas con las que Johnsgard describe el cortejo de casi todos los faisanes, y la tendencia, del vals lateral a la exhibición frontal, que explica los adornos de los argus y los pavos reales.
Antes de ir género por género conviene conocer el vocabulario común. Johnsgard enumera diez posturas que aparecen, con variaciones, en el gallo doméstico, en el gallo rojo y en la mayoría de los faisanes, y las describe a partir de estudios de la gallina y de aves cautivas (Johnsgard, 1986).
- Vals (waltzing)
- El macho baja un ala (en gallos, la más alejada de la hembra) y avanza junto a ella o alrededor de ella; a menudo las primarias rozan el suelo y la pata exterior rasca contra ellas. Una versión más suave, sin ala baja, es el «giro» (circling) (Johnsgard, 1986). Casi todos los faisanes estudiados tienen un equivalente, con formas muy distintas según el género; podría faltar en los pavos reales, el pavo del Congo y algunos faisanes pavo, o estar tan modificado que ya no se reconoce (Johnsgard, 1986).
- Aleteo
- Muy variable: puede ser silencioso o sonoro, con el choque de las alas por encima del cuerpo; en muchas especies se llama «aleteo zumbante» (wing-whirring) (Johnsgard, 1986).
- Ofrecimiento de bocados (tidbitting)
- El macho picotea o rasca el suelo emitiendo llamadas de comida; en algunas especies recoge y suelta trozos de alimento o lo sostiene en el pico mientras llama (Johnsgard, 1986). Schenkel (1956–1958) señaló que en la mayoría de los faisanes esta misma conducta sirve a las hembras para mostrar comida a los pollos, mientras que en los adultos una versión ritualizada se convierte en desencadenante de la conducta sexual de la hembra o dirige su atención hacia los machos que la ejecutan; en el género Pavo la función original ha desaparecido por completo, y la conducta aparece sin comida, como un modo de «atraer» a la hembra a la posición en la que el efecto visual de la postura del macho llega al máximo (Johnsgard, 1986). El ofrecimiento de bocados es frecuente en los galliformes (Johnsgard, 1986).
- Erizar las plumas
- En los gallos, sobre todo las esclavinas del cuello; en muchos faisanes, la cresta, las plumas del pecho o las del cuerpo en general; en los faisanes pavo, todo el plumaje dorsal (Johnsgard, 1986).
- Sacudidas de cabeza
- En el gallo doméstico y el rojo se sacude con movimientos circulares y vigorosos; en otras especies cambia la intensidad o la forma (Johnsgard, 1986).
- Exhibición de la cola
- Inclinar, abrir o sacudir la cola (o las coberteras especializadas, como en los pavos reales) es una señal visual común, que suele combinarse con el vals o con la exhibición lateral o frontal (Johnsgard, 1986).
- Exhibición frontal con las dos alas bajas
- No muy desarrollada en los gallos, pero principal en muchos faisanes, con su máximo en los pavos reales y los faisanes pavo; en el pavo real ha sustituido por completo la postura lateral (Johnsgard, 1986).
- Hinchazón de carúnculas, cresta o cara
- La usan casi todos los faisanes como señal sexual o agresiva; el Bulwer es la culminación de la tendencia, y en el ensangrentado apenas se nota (Johnsgard, 1986).
- Rodeo (cornering)
- Propia de Gallus: precopulatoria y, en el gallo rojo, también en parte una invitación a anidar (Johnsgard, 1986). La «aproximación por detrás» es una conducta relacionada, con el macho dirigiéndose por detrás a la hembra con la cabeza alta y el cuello erizado (Johnsgard, 1986).
- Agachamiento de la hembra
- Postura sumisa que también es la invitación a copular: reposa sobre los tarsos, con las alas ligeramente abiertas y la cabeza algo levantada, y es igual en todos los faisanes (Johnsgard, 1986). No parece haber conductas copulatorias ni poscopulatorias específicas, salvo el arreglo de plumas y el aleteo habituales tras la cópula, sobre todo en las hembras (Johnsgard, 1986).
Algunos faisanes tienen además conductas ausentes, o no reconocidas, en el gallo doméstico. Los tragopanes hacen cortos vuelos de exhibición hasta una percha alta y tienen las elaboradas posturas asociadas a sus lóbulos gulares y «cuernos»; casi todos los machos, quizá todos, emiten llamadas fuertes de anuncio, a veces con aleteo sonoro (Johnsgard, 1986).
De la exhibición lateral a la frontal
Johnsgard detecta una tendencia general. En los gallofaisanes, los faisanes con esclavina, los típicos y los de cola larga, la orientación dominante durante la exhibición intensa es lateral; en los faisanes pavo se aprecia un giro hacia la orientación frontal, que alcanza su máximo desarrollo en el gran argus y en el pavo real. El vals da por sí solo cuenta de algunas características del plumaje del macho: la gran importancia visual del dorso y de la rabadilla, que se exponen durante el vals; la inclinación lateral de la cola, pero sin el extremo levantamiento que sí ocurre en los urogallos con la exhibición frontal; y que el color brillante de las partes inferiores sea poco frecuente (Johnsgard, 1986).
| Especie (faisanes pavo, argus y pavos) | Orientación de la exhibición según Johnsgard (1986) |
|---|---|
| Pavo de Sumatra (cola bronceada) | Exhibición lateral estática con fuerte caída del ala próxima y casi sin inclinar la cola ni el dorso; iridiscencia nula en el dorso y escasa en la cola |
| Pavo de Rothschild | Mucha más inclinación del dorso y despliegue de cola, con más iridiscencia en dorso, coberteras y cola |
| Pavo gris y de Germain | Giro hacia la orientación frontal en la exhibición intensa; cola más redondeada y todo el dorso y las coberteras alares cubiertos de ocelos iridiscentes |
| Pavo de Borneo y de Palawan | Colas redondeadas y tendencias intermedias; el de Borneo, con exhibición lateral muy desarrollada y exhibición frontal completa solo rara vez; el de Palawan, con una exhibición lateral espectacular que combina extensión y inclinación de la cola y mantiene visible el lado de la cabeza y el ojo |
| Gran argus | Totalmente frontal, con la cabeza orientada de lado y el ojo visible en el centro óptico de una serie de «ojos» radiantes a lo largo de las secundarias |
| Pavo real | Frontal; el papel de las alas lo asumen las coberteras de la cola, que forman una disposición radiante de «ojos» desde la cabeza y el manto iridiscente; remeras y rectrices quedan ocultas entre las coberteras |
Johnsgard (1986, cap. 6). En el pavo real, la vibración periódica de las rectrices produce un efecto óptico brillante en el tren y las primarias se bajan rítmicamente al suelo, a veces arrastrándolas.
Cortejo I: tragopanes, ensangrentado, koklas, monales, orejudos y Wallich
Los faisanes de montaña del Himalaya y de China: lóbulos y cuernos de colores que aparecen un instante, parejas casi monógamas y una exhibición silenciosa y sencilla.
Los géneros de montaña reúnen los dos extremos de la sencillez y de la sorpresa. Los tragopanes tienen la exhibición más extravagante de todos los faisanes, y los orejudos y el Wallich, una de las más sencillas. Lo poco que se conoce de la conducta en libertad de casi todos viene de una observación aislada y de aves cautivas, de modo que cada descripción de este apartado lleva el nombre de quien la hizo.
Tragopanes: cuernos, babero y un instante de color
En reposo, los cuernos de un tragopán están contraídos y ocultos bajo las plumas largas de la corona, y el lóbulo es una piel arrugada y casi escondida en la garganta; durante el despliegue los cuernos se erigen y se hinchan y el lóbulo se extiende sobre el pecho como un pañuelo de seda de dibujo complejo, y se repliega con la misma rapidez (Fichas de la web, 2026). Cada especie tiene su propio dibujo (el del Blyth es amarillo bordeado de azul; el del satyr, azul con franjas rosadas), y Beebe dedicó una lámina a las papadas de las cinco especies (Fichas de la web, 2026). En la ficha del tragopán occidental se hace notar que casi no hay información detallada de su despliegue real y que Beebe, Delacour y Johnsgard discrepan sobre a qué especie se parecerá (Fichas de la web, 2026).

La secuencia clásica es la que Delacour atribuye a todo el género, con tres fases de intensidad creciente: un paseo majestuoso alrededor de la hembra, con el ala del lado de ella bajada y entreabierta y el hombro opuesto elevado, de modo que el cuerpo se aplana y muestra gran parte del plumaje superior (la exhibición lateral común a todos los faisanes); una carrera repentina con las alas medio abiertas, con o sin erección de cuernos o del lóbulo; y una parada brusca con el plumaje de las partes inferiores hinchado y las alas medio abiertas moviéndose despacio hacia arriba y abajo, mientras cabeza y cuello se sacuden con espasmos hasta que cuernos y lóbulo se despliegan del todo (Fichas de la web, 2026). Johnsgard advierte que esa descripción de tres fases, muy citada, no concuerda bien con las observaciones más recientes, suyas y de David Rimlinger, que distinguen dos tipos de exhibición (lateral y frontal) y una secuencia frontal con sonidos y movimientos muy precisos (Fichas de la web, 2026).
| Especie | Lo que se ha descrito del cortejo | Observador (según las fichas) |
|---|---|---|
| Tragopán de Temminck | Exhibición frontal estereotipada, normalmente detrás de una roca: sacudidas verticales de cabeza (unos 19 s), llamadas y aleteo con el cuerpo casi quieto (unos 14 s) hasta unos cinco aleteos por segundo, y fase final de unos 3 s con el babero y los cuernos al máximo; en 10 de 35 secuencias remató corriendo por encima de la roca | Rimlinger, en Johnsgard |
| Tragopán satyr | Exhibición frontal poco frecuente (tres o cuatro veces por temporada en cautividad): se agacha, abre las alas y las bate contra el suelo, sacude la cabeza con velocidad creciente mientras cuernos y babero se despliegan, con un ruido como de dos huesos entrechocando; todo dura menos de medio minuto | Barnby Smith, en Beebe y Johnsgard |
| Tragopán de Cabot | Erguido, con el copete alzado, baja las primarias del ala más próxima y recorre la hembra en círculo; en el clímax sacude cabeza y cuello hasta extender cuernos y babero, unos segundos | Wayre (1969), en Johnsgard |
| Tragopán de Blyth | Reverencias con las alas ligeramente alzadas y los cuernos proyectados; si ella no responde, se planta ante ella con el pecho casi en el suelo y las alas abiertas, «una llamarada de carmesí» | Baker, en Beebe |
| Tragopán occidental | Sin descripción de exhibición real; Beebe supone que es igual a la del Temminck y Johnsgard que se parece más a la del satyr | Beebe; Johnsgard |
Todas las descripciones, salvo la del Blyth (una observación de campo), proceden de aves cautivas. Las cifras de tiempo son las de Rimlinger, medidas sobre 35 secuencias del tragopán de Temminck. Fuente: apartado «Cortejo y exhibición» de cada ficha (Fichas de la web, 2026).

Las hembras no parecen impresionadas. Barnby Smith consideraba que su conducta era aún más curiosa e inexplicable que la del macho, porque parecía carecer por completo de interés por el espectáculo, y Beebe nunca vio que las hembras de Temminck hicieran caso al pretendiente más perseverante, salvo para detenerse casi siempre un instante ante el «heliógrafo de azur y escarlata» del babero (Fichas de la web, 2026). Del Cabot se dice que el macho permanece con una hembra al comienzo de la temporada y después se agrupa con otros machos o se aparea con hembras adicionales, un sistema que se considera mixto (Fichas de la web, 2026; Madge y McGowan, 2002). En China, según Beebe, se hacía exhibirse a un tragopán de Temminck solitario poniendo un espejo delante de su jaula (Fichas de la web, 2026).
Faisán ensangrentado: erguir la cresta y dar vueltas
El cortejo del ensangrentado es, en palabras de la ficha, un tema casi virgen. Los datos de libertad proceden de lo que contaron a Beebe cazadores lepchas y tibetanos: el macho abre la cola y deja caer las alas, levanta la cresta, hincha las plumas del pecho y se pavonea ante la hembra dando vueltas y vueltas; Johnsgard cree que corresponde al vals típico de los faisanes, pero no está seguro (Fichas de la web, 2026). Grahame, con aves cautivas, vio una exhibición parecida a la del koklas pero con más urgencia y menos ruido; el único sonido era un «purrrh» al abrir las plumas de la cola. Lelliott, en plena época de cría, no vio ningún cortejo, pero sí una cópula: la hembra subió a una roca y emitió el trino antes de agacharse; la cópula duró de 10 a 15 segundos y ambos emitían llamadas suaves (Fichas de la web, 2026). Entre machos, el cortejo provoca peleas feroces (Fichas de la web, 2026).

Koklas: mechones como orejas y silencio
Johnsgard describe, a partir de observaciones de Wayre y de Harrison y Wayre con aves cautivas, una postura frontal de amenaza y otra lateral de cortejo. En la amenaza el macho se encara con el rival con los mechones de las «orejas» aplanados y el cuello y la cabeza extendidos hacia delante, y emite un cloqueo suave y algo melodioso. La postura lateral es casi la antítesis: el ave erguida, en ángulo recto con el objeto de su atención, con los mechones verticales como orejas de conejo y los parches blancos de las mejillas esponjados, el cuello inflado, las plumas erizadas, el ala del lado exhibido algo caída y la cola abierta en abanico y torcida hacia el destinatario. Así gira en torno a su pareja y a veces corre unos metros con el ala más lejana muy caída y las primarias rozando el suelo, lo que produce un rumor. La exhibición es silenciosa, aunque el macho puede erguirse y lanzar el canto fuerte. La hembra puede ignorarlo, quedarse quieta con el cuello estirado paralelo al suelo, o agacharse de repente, y entonces el macho la monta de inmediato (Fichas de la web, 2026). Johnsgard recuerda que se han señalado semejanzas entre este género y el ensangrentado tanto en las exhibiciones como en el sistema de apareamiento monógamo (Fichas de la web, 2026; Johnsgard, 1986).
Monales: la reverencia de la cola rufa
La exhibición del monal es esencialmente frontal: tras pasear en círculos con un ala baja que le oculta las patas, el macho se coloca frente a la hembra con el cuerpo inclinado, la cresta erguida y la cola abierta, y hace reverencias rítmicas. Beebe observó solo de lejos dos exhibiciones en libertad y la comparó con la del pavo real, aunque con las alas siempre a los costados (Fichas de la web, 2026). Johnsgard resume la descripción más completa, de Catlow (1982), con aves cautivas: entre machos, las primeras fases establecen la dominancia, con los machos muy erguidos, el cuello y el manto esponjados y pasos lentos y elaborados; dirigida a una hembra, la ceremonia incluye arquear el cuello para llevar la cresta hacia delante, bajar el ala próxima mientras las primarias rozan el suelo y rodear a la hembra, y por fin la exhibición frontal, con las alas semiabiertas, la cola alta y abierta, y el parche blanco del dorso visible, con la cresta apuntando a la hembra; esa fase puede durar hasta dos minutos y suele ser el clímax, normalmente en silencio (Fichas de la web, 2026). Gerrits observa que el macho mantiene un ala baja durante todo el ritual para ocultar las patas, algo que le parece un modo de esconder los aspectos menos atractivos (Fichas de la web, 2026). En libertad, se ha descrito además un vuelo de exhibición, un planeo prolongado con la cola abierta, las alas muy por encima del cuerpo y un silbido repetido (Fichas de la web, 2026). Del monal chino y del de Sclater casi no hay descripciones: en el de Sclater, un estudio de Gaoligong registró en 2016 un total de 16 exhibiciones de cortejo, a las que las hembras no respondieron, junto a 45 interacciones agresivas entre machos, y no vio ninguna cópula (Fichas de la web, 2026).
Orejudos y Wallich: la exhibición más sencilla
Johnsgard dice que todos los observadores coinciden en que los orejudos son monógamos y que esa impresión se refuerza por la ausencia de dimorfismo de plumaje y por lo simple de sus exhibiciones: un desfile lateral (vals) con la cola alzada, el ala próxima a la hembra bajada hasta rozar el suelo, la cola inclinada con una mitad baja y otra alta, la carúncula facial distendida y el cuello algo arqueado. El macho atrae a la hembra con una nota «kak» repetida, presumiblemente la llamada de comida, y la hembra puede responder con notas parecidas. El ofrecimiento de bocados es característico de aves que forman pareja por primera vez, y el aleteo durante la exhibición es aparentemente desconocido (Johnsgard, 1986). Thompson (1976) encontró posturas de cortejo idénticas en el orejudo marrón y en el azul, y ninguna diferencia acústica evidente en los sonogramas, y Johnsgard echa en falta una comparación detallada de las voces y las posturas de los orejudos (Johnsgard, 1986).
El Wallich tiene una exhibición lateral, según Wayre, algo semejante a la de Phasianus, con la larga cola muy extendida e inclinada hacia la hembra, como en Syrmaticus; la cresta occipital no se eriza como en el koklas y las carúnculas faciales se hinchan solo moderadamente; Delacour le atribuye menos vibración de alas abiertas y menos posturas erguidas que a otros faisanes (Fichas de la web, 2026; Johnsgard, 1986). Beebe vio dos veces esa postura en aves silvestres, pero como desafío (a un cuervo y a unas perdices cerca del nido), y no como cortejo, con el macho acercándose en curva y abriendo de pronto la cola (Fichas de la web, 2026). No hay descripción publicada del ofrecimiento de bocados ni de la cópula (Johnsgard, 1986).
Cortejo II: gallos, Lophura, faisán común, Syrmaticus y faisanes con esclavina
El baile lateral con el ala caída, el aleteo sonoro de los gallofaisanes y las grandes colas: los géneros de borde de bosque y de bosque templado.
La mayoría de los géneros de este apartado practica la exhibición lateral, esa en la que el macho se coloca de costado ante la hembra, baja el ala próxima, inclina la cola y le muestra el dorso. Cambian los detalles: quién llama, quién aletea, quién ofrece comida y qué parte del cuerpo se ve.
Gallos: la danza lateral de corral y de selva
Según Beebe, la parada del gallo rojo silvestre es el origen de la «danza lateral» del corral. El macho se esfuerza por colocarse casi enfrente de la hembra y en hacerse lo más asimétrico posible: baja casi hasta el suelo el ala y el lado de la cola más próximos a ella, inclina el dorso, abre un poco las esclavinas, que cuelgan hacia el lado de la hembra, y da pasitos rápidos en semicírculo; tras unos segundos de pausa puede volver sobre sus pasos y mostrar el otro flanco, o rodearla por detrás. Lo que se exhibe es lo que más brilla (el dorso, las alas y la cola), mientras las partes inferiores, apagadas, quedan ocultas. Beebe subraya que la exhibición lateral no tiene nada que ver con la postura de lucha, que es siempre frontal (Fichas de la web, 2026). Además, a diferencia del gallo del corral, el cortejo silvestre es silencioso: solo se oye algún cloqueo entre exhibición y exhibición (Fichas de la web, 2026).

La llamada de comida es una pieza central: el macho encuentra comida delante de una hembra, la llama con una serie de cloqueos, mueve la cabeza arriba y abajo y coge y suelta el bocado; la hembra puede tomarlo del suelo o del pico. Johnsgard señala que los gallos atraen así a su harén y que esa conducta y la cópula son iguales en los gallos silvestres y en los domésticos (Fichas de la web, 2026; Johnsgard, 1986). Morejohn (1968) vio que también el gallo de Sonnerat ofrece bocados, con una llamada muy distinta, parecida a un maullido nasal, y que una hembra de gallo rojo, tras cuatro o cinco meses de contacto con un macho de Sonnerat, acabó respondiendo a su llamada y probablemente a su cortejo (Johnsgard, 1986). En el gallo verde, la cabeza es la protagonista: Beebe lo resume diciendo que no difiere del gallo rojo salvo en que la cabeza se pone mucho más en evidencia, y Rimlinger describe un «vals lateral», una exhibición frontal y un chasquido de alas en la última nota del canto (Fichas de la web, 2026; Johnsgard, 1986). De los gallos de Sonnerat y de Lafayette hay muy pocas descripciones: los machos anuncian el territorio con el canto, precedido de un fuerte aleteo con chasquido, y en cautividad el macho de Lafayette atiende siempre a las gallinas y las alimenta (Fichas de la web, 2026).
Gallofaisanes (Lophura): aleteo, barbas y colas
Los gallofaisanes comparten una exhibición con aleteo zumbante y, en la mayoría, una postura lateral más o menos sencilla. Johnsgard describe lo siguiente: en el plateado (Beebe), el macho se acerca de lado, se detiene, se encara con ella erguido, emite una nota de dos sílabas, «ohr-chac», aletea de inmediato y corre o camina alrededor de la hembra extendiendo cola y alas, de lado o de frente; el aleteo breve y rápido seguido de un largo redoble sirve también como señal de sospecha o alarma, y las hembras también aletean, con una función poco conocida; en el Swinhoe, la exhibición típica incluye un engrosamiento extremo de las barbas faciales, de modo que el lóbulo superior sobrepasa la cresta, saltitos rígidos alrededor de la hembra, cabeceo y mucho aleteo; en el noble (Lophura ignita), un engrosamiento grande de las barbas, un alto grado de esponjamiento del plumaje y un vals lento y mesurado alrededor de la hembra; en el cola rosa, el macho baja el ala próxima, sube la lejana, agranda las barbas y abre y inclina la cola en vertical hacia el objeto de la exhibición (Johnsgard, 1986). En el Salvadori, la exhibición es un aleteo zumbante en postura rígida y de puntillas, con el anillo ocular y la barba amarillos muy visibles; en el Edwards y el imperial, un aleteo «sencillo» al modo de los kalij, con la cresta alzada y el dorso esponjado (Johnsgard, 1986).

El Bulwer es un caso aparte, y Johnsgard lo considera una de las exhibiciones más notables de todos los faisanes. El macho levanta las plumas blancas de la cola en un disco estrecho y casi circular; engrosa las barbas hasta formar una doble estructura, como las púas de un martillo, que se extiende varios centímetros por encima y por debajo de la cabeza y la oculta casi del todo, salvo el ojo rojo, que destaca aún más por el ensanchamiento del anillo ocular; y camina en silencio, con el único ruido del arrastre de los raquis de las timoneras exteriores contra el suelo, o bien gira sobre sí mismo con un siseo. La intensidad varía con la cercanía de la hembra; no se ha descrito vals ni cópula (Johnsgard, 1986). HBW recoge la dimensión de las barbas congestionadas (unos 18 cm en arco) (del Hoyo et al., 1994).
Faisán común y faisán verde: canto, aleteo y postura lateral
Los machos del faisán común no ejecutan una danza compleja; la ficha de la web la resume como «pequeños bailes alrededor de la hembra», y Johnsgard, Delacour y BOW la describen con tres componentes: el canto seguido de aleteo, la exhibición lateral y el ofrecimiento de bocados (Fichas de la web, 2026).
| Exhibición del macho | Descripción | Cuándo |
|---|---|---|
| Canto y aleteo | En un lugar prominente, el macho se yergue, hace una pausa, lanza su canto y casi enseguida un breve y vigoroso batir de alas; la cola algo levantada o apoyada; congestión de la carúncula y erección de los penachos auriculares | Cada 10–15 minutos en el máximo; sobre todo al amanecer y al final de la tarde (Johnsgard, 1986) |
| Exhibición lateral | Se acerca a la hembra y pasa despacio por delante en semicírculos, con la cola y el ala más cercana (bajada) hacia ella, la cabeza baja, el cuerpo esponjado y la carúncula congestionada; a menudo con un silbido; las plumas de la cola pueden vibrar y producir un sonido de aleteo | Sobre todo con hembras solitarias (Fichas de la web, 2026; Johnsgard, 1986) |
| Ofrecimiento de bocados | Cabeza baja, cola plegada en alto, llamadas bajas a unas tres por segundo, mientras picotea el suelo | Con hembras emparejadas, al principio de la temporada (Fichas de la web, 2026; Johnsgard, 1986) |
| Exhibición lateral posterior a la cópula | Gira despacio alrededor de la hembra, con silbido; no hay otra exhibición poscopulatoria específica | Tras la cópula (Fichas de la web, 2026; Johnsgard, 1986) |
Johnsgard (1986), con las precisiones de BOW y Delacour recogidas en la ficha del faisán común.
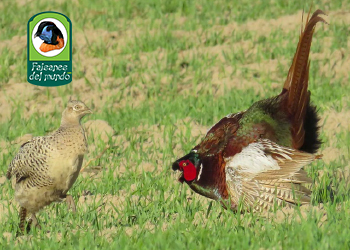
La hembra puede responder con «media sentadilla», «saltos de coqueteo» o estiramiento de alas en marzo y abril; al principio de la temporada puede huir y el macho seguirla, con exhibiciones y carreras de hasta 150 m (Fichas de la web, 2026). Más tarde, o con muchas hembras, el macho puede forzar la cópula con la hembra que se resiste, y los machos no territoriales parecen conseguirla solo por coerción (Fichas de la web, 2026). En el faisán verde no hay descripción específica: Beebe, Johnsgard y BOW coinciden en que su cortejo no difiere del del común, y la ficha lo da por análogo salvo lo que se confirme (Fichas de la web, 2026).
Faisanes de cola larga (Syrmaticus)
El faisán de Hume es el mejor descrito, por Davison (1979), con aves cautivas. El macho anuncia su presencia con un aleteo zumbante audible a más de 30 m, sin llamada fuerte asociada, sobre todo en primavera y en la primera hora tras dejar el dormidero. En el cortejo recoge y suelta un objeto pequeño mientras cloquea, lo que suele traer a la hembra corriendo; luego ejecuta dos exhibiciones, la lateral (igual que su amenaza lateral hacia otros machos, pero con la cabeza más baja) y la frontal, muy parecida a su amenaza frontal intensa. Antes de la cópula se acerca a la hembra agachada, en postura erguida, con las barbas distendidas y las plumas de la nuca erizadas en pico. Johnsgard recoge que exhibiciones frontales semejantes se dan en el Mikado y el de Elliot, pero no, aparentemente, en los faisanes típicos ni en los de esclavina (Johnsgard, 1986).
En el Mikado, Sahin (1984) halló que la exhibición lateral (vals) se da en ambos sexos más o menos durante todo el año, mientras que la exhibición frontal erguida, con la cola hacia abajo y no levantada como en el Hume, se da solo en machos y solo en el periodo de apareamiento; el aleteo parece servir al territorio, y el ofrecimiento de bocados, con comida real, forma parte del cortejo (Johnsgard, 1986). El Elliot ejecuta un aleteo rápido y casi silencioso, seguido a menudo de una llamada «geke», y una exhibición lateral con el cuello extendido y la cola abierta e inclinada (Johnsgard, 1986). En el cobrizo casi no se han escrito exhibiciones; se supone como las del Hume (Johnsgard, 1986).
El faisán venerado se acerca a la hembra despacio y en círculos concéntricos, con las plumas del contorno erizadas y los andares rígidos; a unos 6 pies hace una exhibición lateral, con la cola erguida y abierta, que puede mantener hasta que la hembra se mueva; entonces pasa a una exhibición más frontal, con una serie de saltos rígidos hacia ella, hasta quedar a un pie, y durante los saltos el ala plegada lejana se inclina algo hacia arriba, aumentando la superficie visible (Johnsgard, 1986). Antes aletea y emite una serie de llamadas agudas audibles a unas 200 yardas (Johnsgard, 1986).


Faisanes con esclavina (Chrysolophus): un abanico a un palmo del ojo
El cortejo del faisán dorado es íntegramente lateral, y en eso Beebe, Delacour y Johnsgard coinciden. El macho se acerca de costado o, más a menudo, corriendo en círculos amplios para colocarse delante de la hembra y bloquear sus movimientos; se detiene de pronto en una postura de exhibición con el ojo lo más cerca posible de la cabeza de ella; la esclavina se tensa alrededor del cuello, por el lado más próximo a la hembra, en series concéntricas, y la pupila se contrae hasta un punto; el ala próxima desciende, el cuerpo se inclina hacia ella mostrando espalda y obispillo, la cola se ladea y las supracaudales se abren al máximo; en ese momento emite un silbido agudo, parecido al de una serpiente, con el pico abierto pero oculto tras la esclavina; mantiene la postura inmóvil hasta que la hembra se mueve y entonces repite con el lado contrario (Fichas de la web, 2026). A diferencia de Syrmaticus y Phasianus, el dorado no tiene aleteo ruidoso, y casi no hay ingurgitación de la carúncula, quizá porque la esclavina oculta toda la cabeza por debajo de los ojos; casi nunca ofrece bocados (Fichas de la web, 2026; Johnsgard, 1986).


Beebe calculó que, para llegar a mostrarse con toda su belleza y simetría, la esclavina se extiende quizá de cuarenta a cincuenta veces durante unos pocos días, de uno a dos segundos cada vez, y señaló que, al contrario de lo que pasa en muchos urogallos, no hay un instante de ceguera en el punto álgido: la pupila se contrae, pero el macho vigila a la hembra y retuerce el cuerpo si ella gira la cabeza (Fichas de la web, 2026). En la hembra, sobre todo la vieja, la indiferencia puede ser total al comienzo de la temporada; tras una larga serie de exhibiciones se aleja cada vez menos, el macho intenta ponerle un pie sobre el lomo y a veces ella se agacha; durante la cópula él picotea su cabeza y, en cuanto hay contacto cloacal, la hembra se libera y vuela a una percha (Fichas de la web, 2026).
El cortejo del faisán de Lady Amherst es, según Johnsgard, prácticamente idéntico al del dorado, aunque con diferencias: se ha registrado en sonograma la llamada de comida (ofrecimiento de bocados), mientras que en el dorado el bocado rara vez se ha visto, y el halo es blanco y negro y no naranja y negro (Fichas de la web, 2026). El estudio de Yang y colaboradores (1992), con aves libres y cautivas, añade que el cortejo y la cópula se hacen sobre todo en el suelo, en claros poco frecuentados de laderas, de madrugada y al atardecer; que el macho corre en arcos y círculos a 40–50 cm de la hembra emitiendo un «hu-hu» rítmico, y que la exhibición dura entre 7 y 45 minutos. Distinguen en cautividad un «celo superficial» (el macho canta, se le hinchan las carúnculas, abre la esclavina y pasea sin perseguir a la hembra) y un «celo profundo» (danzas intensas, persecución y cópula, de larga duración), con un máximo de frecuencia entre las 6 y las 7 de la mañana; la cópula dura de 2 a 3 segundos (Fichas de la web, 2026). Estas cifras son del libro de Yang y colaboradores, que aquí solo se conoce a través de la ficha.
Cortejo III: faisanes pavo, argus, pavos reales y pavo del Congo
Los ocelos, las pistas de baile y la exhibición frontal: los faisanes del bosque tropical y los pavos reales.
Los faisanes del bosque tropical y los pavos reales son los que han llevado la exhibición al extremo: abanicos de «ojos», pistas despejadas con esmero y machos que, en el caso de los argus, ocultan su propia cabeza tras las plumas de las alas. También son, en su mayoría, los menos observados en libertad, y casi todo lo que se cuenta procede de aves cautivas o de un puñado de observaciones.
Faisanes pavo (Polyplectron)
El faisán pavo gris tiene dos exhibiciones, según Pocock (1911) y Beebe, que recoge Johnsgard. La lateral no es la típica de los faisanes: el ala próxima apenas se baja, mientras que la lejana se alza, se abre al máximo y se estira hacia delante, con la punta por delante de la cabeza; la cola se abre y se tuerce hacia la hembra formando un abanico casi vertical, de modo que expone al máximo los ocelos de la cola y de la parte alta del ala; es silenciosa. La frontal, más característica, la precede un silbido musical que sirve de llamada de comida: la hembra suele acudir corriendo; el macho se encara con ella, levanta y abre cola y alas e inclina el cuerpo hasta la vertical mientras baja cabeza y pecho al suelo, y forma así un escudo pardo y redondeado, con bandas transversales de ocelos iridiscentes. Pocock hizo notar que esta postura se acerca a la exhibición frontal del argus, con las plumas alares llevadas hacia arriba hasta encontrarse en el centro; para Johnsgard el pavo gris es un buen eslabón de conducta entre la exhibición lateral del Rothschild y la clara exhibición frontal del gran argus y de los pavos reales (Johnsgard, 1986). La hembra puede responder con una postura similar pero menos desarrollada, o, más a menudo, no prestar atención (Johnsgard, 1986).

En los demás faisanes pavo cambian los detalles. En el Germain, el macho exhibe menos intensamente que el gris, ofrece comida y se retira cuando la hembra se acerca, en una postura intermedia entre lateral y frontal (Johnsgard, 1986). En el Palawan, la exhibición empieza con el macho caminando alrededor de la hembra con un pequeño «capote» de plumas del cuello y el manto, sosteniendo un bocado y cabeceando; cuando ella se acerca, lo deja caer y adopta la postura lateral completa, con la cola extendida y casi de perfil, el ala lejana alzada en vertical y la próxima caída hasta que las primarias tocan el suelo; la cabeza se retrae tras el «capote», de modo que solo se ven el ojo y el área blanca que lo rodea, y el ave entera parece, en palabras de Lewis (1939), un plato circular apoyado de canto (Johnsgard, 1986). El Borneo, en cambio, es muy agresivo en cautividad y hace una exhibición lateral breve; el macho adopta la postura frontal solo para ofrecer un bocado a la hembra, con la cabeza casi tocando el suelo (Johnsgard, 1986). El Rothschild hace una exhibición lateral «parcial» o «completa» (Denton), y Johnsgard lo vio salir de detrás de un arbusto y adoptar de golpe la postura lateral, una «entrada dramática» ante una hembra que parecía ignorarlo (Johnsgard, 1986).
El pavo malayo es el único del que se ha descrito la conducta en el campo: los machos mantienen zonas de exhibición despejadas, y de 92 observadas, 88 estaban en senderos viejos. Davison vio solo dos visitas de hembras; al acercarse una, el macho dejó de llamar, erizó el plumaje de cabeza y cuello e hizo un picoteo ritual, ofrecimiento de comida y posturas erguida y lateral, pero no llegó a la exhibición frontal, que sí se ha visto en cautividad (Johnsgard, 1986). En esas exhibiciones el pavo malayo tiene un rasgo propio: movimientos ritualizados de arreglo de plumas (flagging en la terminología de Davison) y, en cautividad, saltos con silbido al aterrizar (Johnsgard, 1986). En los encuentros entre machos, se vio a dos en los límites de sus territorios girar uno alrededor del otro, llamando, en postura lateral con ocelos expuestos y, de vez en cuando, frente a frente con las colas abiertas, hasta que se separaron a unos 40 m (Johnsgard, 1986).
Gran argus: la pista y el abanico
La parada nupcial del gran argus se entiende, según la ficha, como el último eslabón de una cadena: la voz que reúne, la pista despejada que se mantiene durante meses y, solo entonces, la exhibición frontal (Fichas de la web, 2026). El macho prepara y limpia una «pista de baile» en el suelo del bosque, retirando hojas, piedras y semillas; vuelve a ella temporada tras temporada, lanza sus potentes llamadas desde allí y defiende el espacio. Los tamaños que dan las fuentes difieren por unidades y por el momento de medición: Beebe, de unas tres a seis yardas de ancho; Delacour, cuatro o cinco yardas; Gerrits, de tres a cinco; Roles, hasta unos 15 pies; Johnsgard (según Davison), más de 12 m² al final de la temporada y hasta 72 m²; y Birds of the World (BOW), hasta 72 m², con pistas situadas en crestas en Borneo y separadas 375–435 m en la península (Fichas de la web, 2026). De la pista parte una senda de escape (Fichas de la web, 2026).

La secuencia, según Davison y Johnsgard: el macho eriza el plumón de la cabeza, el cuello y el pecho; patea la pista con la cabeza baja y el cuello arqueado, con pisotones audibles a unos 25 m y casi tres por segundo; con la hembra presente, se pone de lado con la cola casi vertical y picotea rituales, a veces lanzando hojarasca hacia ella; trota en arcos alrededor de ella; hace una exhibición lateral con el ala próxima baja y la lejana alzada, y a menudo silba; y, por fin, da un giro brusco para encararla y abre del todo ambas alas en vertical formando un abanico oval radiante, con las dos plumas largas de la cola visibles detrás; la cabeza, tras un ala, deja ver un ojo en el codo del ala. En el clímax, la cola sube y baja unas tres veces cada cinco segundos (Fichas de la web, 2026). Beebe describe lo mismo con otras palabras: la hembra, a su juicio, no muestra el menor interés, a veces retrocede unos pasos y a veces sigue comiendo; y el efecto, para él, no es estético sino subjetivo (Fichas de la web, 2026). La cópula casi no se ha descrito: Johnsgard presenció una el 28 de febrero de 1983, de solo unos segundos, sin exhibición especial después (Fichas de la web, 2026).
Argus de Rheinard: lateral y sin pista conocida
La exhibición del argus de Rheinard se ha visto en cautividad y tiene dos fases según Delacour (basado en J. Huxley): una preliminar, con el macho inmóvil, el cuello estirado, la cresta como una borla blanca y la cola parcialmente abierta en vertical, con pasos rápidos y llamadas con la cabeza echada atrás; y otra plena, en la que abre ambas alas hacia abajo y despliega la cola hacia arriba mientras todo el plumaje tiembla. Para Delacour es de tipo lateral porque la cola en tejado no permite una exhibición frontal (Fichas de la web, 2026). En libertad, Davison vio una exhibición limitada: el macho lanzaba fragmentos de vegetación con el pico y luego se quedaba inmóvil, con la cresta blanca desplegada, que fue bajando poco a poco durante 45 minutos (Fichas de la web, 2026). Los terrenos de exhibición son pequeños, de menos de uno a cuatro metros de largo y ancho, y se reutilizan durante varios años (Johnsgard, 1986). No se ha encontrado ningún nido silvestre (Fichas de la web, 2026).
Pavos reales: un tren de coberteras que vibra
El macho levanta el tren con las 20 rectrices que lo arrastran y las coberteras laterales se extienden en horizontal o incluso hacia abajo, ocultando las alas, que caen medio abiertas. El cuerpo se inclina hacia delante y la cabeza y el cuello se mantienen erguidos en el centro de la rueda de ocelos. Ante la hembra el macho se estremece de pronto, el tren brilla y las plumas de las alas crujen (Fichas de la web, 2026; Johnsgard, 1986). Johnsgard describe que, cuando la hembra se acerca, el macho puede incluso darse la vuelta, y ella, para volver a verlo, se mueve alrededor de él; esto se repite varias veces hasta que ella se agacha y se completa la cópula, con el tren bajado (Johnsgard, 1986). Petrie y colaboradores (1992) describieron la secuencia con detalle: el macho enseña a la hembra la cara posterior, blanca, del tren si ella se acerca; la encara de nuevo y sacude el tren; intenta copular con el movimiento llamado «hoot-dash»; y si ella se detiene y se agacha, monta y copula en unos 10 s, sujetándola por el cuello (Fichas de la web, 2026).

Los dos pavos reales exhiben de modo casi idéntico: Johnsgard anota que el despliegue postural del pavo verde es casi igual al del azul, y la ficha del verde habla de un abanico de ojos «azules, turquesa y cobre» sostenido por rectrices duras (Fichas de la web, 2026; Johnsgard, 1986). Según Johnsgard, la exhibición del pavo real ya no incluye ofrecimiento de comida ni baja el pico hacia el suelo, como hace el gran argus; Schenkel la consideró una forma muy ritualizada del ofrecimiento de bocados, y Heinroth, un anuncio sexual general, visible desde lejos (Johnsgard, 1986). Las pavas y los jóvenes también se exhiben cuando están excitados (Delacour, según las fichas), y los machos exhiben ante personas, otros animales y hasta media hora seguida sin hembra a la vista; en parques zoológicos lo hacen más cuando hay público (Beebe) (Fichas de la web, 2026).

Pavo del Congo: dos posturas y un bocado
La descripción más completa es la de Jeggo (1972), resumida por Johnsgard: el macho tiene dos posturas, frontal y lateral. En la frontal levanta la cabeza, emite una nota baja y larga, infla ligeramente la garganta y se inclina mientras lanza notas cortas y rápidas; la cola se alza y se abre en abanico, y las alas caen y se inclinan hacia fuera, de modo que se ven las primarias. En la lateral, empieza con la misma llamada, pero con la cabeza baja, y gira alrededor de la hembra con la cola abierta hacia el lado más próximo, el ala de ese lado abierta y baja y la otra plegada y arqueada. También hay ofrecimiento de bocados: el macho sostiene un trozo en el pico y llama a la hembra; ambos sexos lo hacen con las crías. Johnsgard destaca que esta conducta y la exhibición lateral se han perdido en Pavo, lo que sugiere que los pavos reales son el grupo más especializado (Fichas de la web, 2026; Johnsgard, 1986). No se ha observado en libertad (Fichas de la web, 2026).
Elección de pareja, competencia entre machos y papel de las señales
Qué sabemos de lo que elige la hembra, cómo compiten los machos y qué dicen los estudios de campo y de cautividad, con sus discrepancias.
Que los faisanes son el ejemplo clásico de la selección sexual se dice desde hace más de un siglo, y HBW recuerda que, sin embargo, no hubo pruebas firmes hasta hace poco (del Hoyo et al., 1994). Casi todo lo que sigue es una colección de estudios sueltos, con pocas especies, y con respuestas que no coinciden entre sí.
La hembra: lo que se ha medido en el pavo real
El estudio más citado es el de la población asilvestrada de Whipsnade (sur de Inglaterra). Según HBW, las hembras pueden visitar a varios machos en una arena y volver una y otra vez al preferido, posiblemente muchas veces, antes de copular con él; de once ocasiones en que se siguió con detalle el recorrido de una hembra, copuló diez veces con el macho que tenía más ocelos en el tren. Otro estudio indica que el tren gana esplendor con la edad, lo que sugeriría que las hembras pueden elegir machos mayores, que han demostrado su capacidad de sobrevivir; HBW añade que explicaciones alternativas abundan (del Hoyo et al., 1994). La ficha del pavo real azul recoge además que, en un estudio del Reino Unido, los machos a los que se quitaron ocelos tuvieron menos éxito de apareamiento y que los pollos de los machos con trenes más elaborados pesaron más y sobrevivieron mejor; otros estudios, en cambio, no hallaron en aves silvestres una preferencia clara por los machos con más ocelos, trenes más largos o más simétricos; Birds of the World indica que no hay pruebas de que las hembras prefieran siempre a los machos más viejos; Hale y colaboradores (2009) hallaron que la longitud del tren se correlaciona con la diversidad del complejo MHC, aunque las hembras parecen no usarla para elegir; y Yorzinski y colaboradores (2013) observaron que miran la parte alta del tren a larga distancia y las plumas bajas de cerca (Fichas de la web, 2026).
Otras especies: indiferencia aparente y elección encubierta
En casi todos los faisanes la hembra parece ignorar al macho que se exhibe. Beebe lo anotó en el gran argus (a veces la súbita apertura de las alas la hace retroceder unos pasos, pero lo habitual es que siga comiendo o dé la espalda al exhibidor), en el dorado (sobre todo si es vieja, mira a través de los machos sin prestarles atención) y en el tragopán de Temminck (Fichas de la web, 2026). En el gran argus, Beebe recordaba el argumento de Darwin, que no admitía que las posturas extraordinarias del macho fueran inútiles, y comparte su rechazo al mecanicismo; hallaba, sin embargo, ocelos parecidos en las alas de una chinche, y concluía que lo honesto era reconocer que no se sabe la respuesta y que probablemente sea un conjunto de factores. Davison, por su parte, concluye que la elección de la hembra entre machos que compiten, con o sin pista, basada en las diferencias de plumaje asociadas a la edad o en las diferencias de exhibición entre individuos, explica mejor la evolución del plumaje y la conducta masculinos que la comparación de pequeñas diferencias de plumaje o de voz (Fichas de la web, 2026). Para el dorado, Beebe desarrolló una hipótesis personal: la exhibición deslumbrante tendría sobre la hembra un efecto lento y calmante en los nervios, que estimula la secuencia de instintos que concluye en el nido, los huevos y el cuidado de los pollos. No negaba la selección sexual: se aparearía el macho que venciera a sus rivales o exhibiera con más constancia (Fichas de la web, 2026).
Cuando la hembra no responde, eso no quiere decir que no elija. En el gallo rojo, según la ficha (que cita a la Wikipedia), estudios con poblaciones semisalvajes muestran que las hembras ejercen una elección real de pareja y se aparean con machos subordinados en torno al 40 % de las ocasiones, aunque el dominante intente monopolizar el acceso (Fichas de la web, 2026). HBW añade que el cacareo de la hembra tras poner un huevo, dentro de la hora siguiente y coincidiendo con la ovulación, parece incitar la competencia entre machos y favorecería que fecunde los huevos el macho dominante (del Hoyo et al., 1994). Y Johnsgard cita que, en gallinas domésticas, las hembras de las líneas leghorn blanca y marrón mostraron preferencias por machos de su propia línea, aparentemente basadas en el plumaje y no en las diferencias de exhibición, y que los machos criados con hembras de su línea prefirieron a hembras de su línea (Lill y Wood-Gush; Wood-Gush), lo que sugiere que la impronta puede influir en las preferencias de apareamiento al menos en los machos (Johnsgard, 1986).
Los machos: competir con la voz, con el aleteo y con los espolones
Entre machos, la exhibición se parece a la de cortejo, y la diferencia suele estar en la postura de la cabeza y en el contexto. En el faisán común, dos machos que se encuentran pueden enfrentarse o caminar paralelos, con la cabeza alta, las carúnculas hinchadas y el plumaje de la nuca erizado, emitiendo una llamada ronca «krrrah»; pueden hacer una exhibición lateral de intimidación, con el ala próxima caída y la cola inclinada pero con la cabeza alta y no baja como en el cortejo, o enfrentarse con las cabezas bajas y las colas rectas, hasta llegar a pelear mordiendo y dando patadas; el perdedor se retira con el plumaje alisado y las carúnculas retraídas (Johnsgard, 1986). En el Hume, una amenaza lateral muy parecida a la del cortejo la usan tanto los machos entre sí como las hembras que intentan escapar de un macho que las corteja (Johnsgard, 1986).

Otros ejemplos recogidos por las fuentes: los machos del gallo verde dirimen la jerarquía con golpes de ala y combates con espolones (Fichas de la web, 2026); en el gallo de Sonnerat, Beebe cuenta que un perro encontró muertos, uno junto a otro, a dos machos que peleaban, tan ocupados en picotearse la cabeza que no vieron al perro (Fichas de la web, 2026); entre ensangrentados, el cortejo provoca peleas feroces, con vuelo pecho contra pecho, mordisco de carúnculas y patadas dirigidas al pico del rival (Fichas de la web, 2026); y entre monales de Sclater, el estudio de Gaoligong registró 45 interacciones agresivas frente a 16 exhibiciones de cortejo (Fichas de la web, 2026). En el gran argus, la llamada larga parece servir en parte de duelo vocal por las pistas de baile, y los machos jóvenes pueden llamar de vez en cuando e intentar hacer una pista, pero nunca logran el gran espacio limpio de los adultos (Johnsgard, 1986). En el dorado, Beebe calificó el ardor de los machos de «excelente termómetro» de la primavera: decae en los días fríos y crece con el sol (Fichas de la web, 2026).
Resumen comparado de las señales
| Grupo | Exhibición principal | Adorno que se muestra | Señal sonora | Sistema atribuido |
|---|---|---|---|---|
| Tragopanes | Lateral y frontal (con bocado y salto en alguna especie) | Cuernos y lóbulo gular | Lamento de anuncio; aleteo; chasquidos en la exhibición | Desconocido o mixto |
| Ensangrentado, koklas, orejudos, Wallich | Lateral sencilla; en el koklas, silenciosa | Mechones de plumas («orejas»), carúnculas moderadas | Koklas, orejudos y Wallich: canto fuerte (a dúo en Wallich y orejudos); ensangrentado: llamadas suaves y de contacto | Monogamia |
| Monales | Frontal con reverencias; vuelo de exhibición | Cresta, cola rufa, dorso blanco | Silbido; casi silenciosa en la exhibición | Incierto, poliginia sospechada |
| Gallos | Lateral (vals) con bocado | Esclavinas, cresta, barbas | Canto; aleteo con chasquido | Poliginia o monogamia, según especie |
| Lophura | Aleteo zumbante y lateral | Barbas congestionadas, cresta, cola | Aleteo audible; llamadas de bocado | Variable; mayoritariamente incierto |
| Phasianus | Canto y aleteo; lateral; bocado | Carúnculas, penachos | Canto fuerte, aleteo, siseo | Poliginia de harén |
| Syrmaticus | Lateral y frontal | Larga cola, barbas | Aleteo; llamadas agudas | Poliginia al menos facultativa |
| Chrysolophus | Lateral, sin aleteo ruidoso | Esclavina, cola | Silbido agudo; reclamo metálico | Poco claro; poligínico en cautividad |
| Faisanes pavo | Lateral y frontal, con tendencia a la frontal | Ocelos en cola y alas | Llamada fuerte; silbido de bocado | Variable; ver tabla del apartado 1 |
| Argus | Frontal con pista despejada (gran argus); lateral (Rheinard) | Ocelos de las secundarias; cola larga | Llamadas fuertes; pateo audible | Promiscuidad con machos dispersos |
| Pavos reales | Frontal con tren de coberteras | Ocelos del tren | Llamada; crujido de plumas | Poliginia, machos agrupados |
| Pavo del Congo | Frontal y lateral, con bocado | Cola y primarias | Notas bajas y rápidas | Monogamia |
Síntesis de los apartados anteriores; las fuentes de cada celda son las citadas en ellos.
Qué falta por saber
Hay tres lagunas que se repiten. La primera es la libertad: la mayor parte de las descripciones de cortejo procede de aves cautivas, y para muchas especies (tragopanes, monales, gallos de Lafayette, la mayoría de los gallofaisanes) no hay ninguna observación de campo. La segunda es el sistema de apareamiento, que se infiere a menudo del dimorfismo o de parejas cautivas, cuando la correspondencia entre ambos no es fiable. La tercera es la elección de la hembra, que se ha medido casi solo en el pavo real azul, en el gallo rojo y en alguna especie de cautividad (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986).
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions. Introducción de la familia Phasianidae (Pheasants and Partridges), por P. J. K. McGowan.
- Hernández García, I. (2026). Fichas monográficas de especie de Faisanes del Mundo (apartado «Cortejo y exhibición» de las del gran argus, el argus de Rheinard, los tragopanes, el ensangrentado, el koklas, los monales, los gallos, los faisanes común, verde, dorado, de Lady Amherst y Wallich, los pavos reales y el pavo del Congo), cada una con sus fuentes. Fundación Zoo Koki, faisanesdelmundo.com. Se citan cuando el dato procede de una ficha, que a su vez recoge a Beebe (1918–1922), Delacour (1977), Gerrits (1974), Roles (1976), Green-Armytage (2002), Birds of the World y otros trabajos que aquí no se han consultado directamente; se indica el autor original en el texto.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
Cómo citar este capítulo: Hernández García, I. (2026). Sistemas de apareamiento y señales sociales de los faisanes. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/apareamiento.php.