Qué se clasifica: los faisanes dentro de los galliformes
Rangos, tribus y subfamilias: dónde empieza y dónde acaba el grupo de los faisanes según cada autor.
Clasificar a los faisanes obliga a responder tres preguntas que las fuentes contestan de forma distinta según la época: qué aves son faisanes, cómo se agrupan entre sí y qué nombre lleva cada grupo. Este capítulo recorre las tres, de Linneo a los estudios genéticos, y enlaza cada paso con la taxonomía completa de la web y con las fichas de las especies.
La taxonomía, explica Hernández García en su guía práctica, ordena a los seres vivos en una estructura de ramas que se subdividen; cada rama, grande o pequeña, es un taxón, y las categorías principales son dominio, reino, filo, clase, orden, familia, género y especie, a las que se añaden niveles intermedios cuando hace falta (Hernández García, 2013). El mismo libro distingue la clasificación artificial, que agrupa por semejanzas o por utilidad sin ninguna hipótesis de parentesco, de la natural, basada en relaciones genealógicas y formada solo por grupos monofiléticos, es decir, por un antepasado y todos sus descendientes (Hernández García, 2013). Esa distinción recorre todo el capítulo: durante siglo y medio los faisanes se agruparon sobre todo por el aspecto, y solo en las últimas décadas se ha intentado comprobar si esos grupos son naturales.
La guía recoge los faisanes dentro de la familia Phasianidae y la subfamilia Phasianinae, con 16 géneros, 53 especies y 127 subespecies catalogadas; el apéndice sitúa además esa subfamilia en el orden Galliformes, el parvorden Phasianida y la superfamilia Phasianoidea (Apéndice de la web, 2026; Hernández García, 2013). Es la clasificación tradicional, que sigue en lo esencial la secuencia de Delacour; las notas del propio apéndice y las fichas de cada especie señalan dónde los autores discrepan (Apéndice de la web, 2026).
Qué es un faisán
Delacour advertía de que, en sentido estrictamente científico, «faisán» designa un grupo de aves cinegéticas que no se distingue de las demás por rasgos bien definidos ni importantes. Llamaba faisanes a los miembros de la subfamilia Phasianinae cuyo macho reúne un plumaje ornamental muy especializado y un tamaño grande; los que carecen de una de las dos cosas o de ambas son perdices y codornices, incluidas las francolines, los gallos de espolones y las codornices americanas (Delacour, 1977). Aun así, como esas aves llevaban mucho tiempo consideradas una unidad aparte, le parecía justificado reservarles una tribu especial, la de los Phasianini, dentro de una subfamilia Phasianinae que incluía también perdices y codornices (Delacour, 1977).
Johnsgard (1986) formaliza la idea con una clave: los Phasianini tienen la cola normalmente más larga que el ala (al menos 150 mm), a veces abovedada y escalonada, y los machos suelen diferir de las hembras, ser más o menos iridiscentes y llevar casi siempre piel desnuda alrededor del ojo; los Perdicini, en cambio, tienen la cola mucho más corta que el ala (como máximo 200 mm), plana y redondeada, y los sexos parecidos (Johnsgard, 1986). En su recuento, los Phasianini son 49 especies, frente a 103 de perdicinos del Viejo Mundo y 30 de codornices del Nuevo Mundo (Johnsgard, 1986). Con todo, concluía que los rasgos que se solapan entre faisanes y perdices del Viejo Mundo son tantos que solo deberían separarse como tribus, y que, además, se han documentado sorprendentemente pocos cruces entre ambos grupos (Johnsgard, 1986).
Madge y McGowan escriben desde la misma convención: los faisanes se tratan hoy dentro de la misma familia que las perdices y las codornices, pero se distinguen bastante bien, pues los machos tienden a ser grandes, de cola larga y plumaje iridiscente; las perdices mudan la cola de forma centrífuga (de dentro afuera) y los faisanes al revés, aunque géneros como los gallos de espolones, el faisán ensangrentado y los tragopanes hacen de puente entre los dos grupos (Madge y McGowan, 2002). El Handbook of the Birds of the World divide la familia en dos subfamilias, Perdicinae (106 especies en 22 géneros) y Phasianinae (49 especies en 16 géneros), y atribuye la inestabilidad de los esquemas a que la apariencia externa y el comportamiento han divergido mucho entre especies mientras que la anatomía del esqueleto varía de forma sutil y casi continua, de modo que la familia consta de muchos géneros con pocas especies cuyas relaciones no están claras (del Hoyo et al., 1994).
Los vecinos de los faisanes: un rango que ha cambiado de mano
La otra gran fuente de desacuerdo es qué rango se da a los grupos vecinos: pintadas, pavos, urogallos y codornices americanas. Para Elliot (1872) pertenecían todos a la familia Phasianidae, y su monografía incluye con los faisanes a los pavos (subfamilia Meleagrinae) y a las pintadas (Numidinae) (Elliot, 1872 (vol. I)). Un siglo después, la tendencia era la contraria: Johnsgard recordaba que los urogallos se consideraban, como mucho, una subfamilia de los faisanes, que pavos y codornices americanas se habían tratado de manera muy variable y que las pintadas solían tener rango de familia o de subfamilia (Johnsgard, 1986). La tabla resume las posiciones que recogen las fuentes del capítulo.
| Autor o fuente | Cómo trata a faisanes, perdices y grupos vecinos |
|---|---|
| Elliot (1872) | Una familia Phasianidae con ocho subfamilias que incluye pavos (Meleagrinae) y pintadas (Numidinae) junto a los faisanes (Elliot, 1872 (vol. I)) |
| Peters (1934), según Johnsgard | Una subfamilia Phasianinae que reúne perdices del Viejo Mundo y faisanes típicos (Johnsgard, 1986) |
| Delacour (1977) | Subfamilia Phasianinae con faisanes, perdices y codornices (también las del Nuevo Mundo), y tribu Phasianini para los faisanes; urogallos (Tetraoninae) y pintadas (Numidinae) como parientes cercanos; pavos y megápodos, familias aparte (Delacour, 1977; Johnsgard, 1986) |
| Johnsgard (1986) | Tribus Phasianini (49 especies) y Perdicini (103), con rango no superior al de tribu; urogallos como subfamilia; pintadas como familia o subfamilia (Johnsgard, 1986) |
| Sibley y Monroe (1990, 1993), según Fuller y Garson (2000) | Una familia Phasianidae con los faisanes y las perdices, codornices y francolines del Viejo Mundo, sin urogallos ni codornices americanas (Fuller y Garson, 2000) |
| Handbook of the Birds of the World (1994) | Familia Phasianidae con las subfamilias Perdicinae y Phasianinae; codornices americanas en una familia propia, pintadas restituidas al rango de familia, y urogallos y pavos con un rango que ha oscilado entre familia y subfamilia (del Hoyo et al., 1994) |
| Madge y McGowan (2002) | Elevación de las codornices americanas a familia (Odontophoridae) y rango de familia, en general, para urogallos, pintadas y pavos; subfamilias Perdicinae y Phasianinae dentro de Phasianidae (Madge y McGowan, 2002) |
Los autores se citan tal como los recogen las obras consultadas; el rango de cada grupo es una decisión de clasificación, no un dato medible.
Por qué es tan difícil
El Handbook (1994) resume el problema en una frase: al menos 17 filogenias diferentes se habían propuesto para los galliformes, con técnicas que iban de la osteología y la anatomía muscular a la hibridación de ADN, la inmunología y la cariología (del Hoyo et al., 1994). Hay además dos necesidades que no coinciden: la de comprender el parentesco evolutivo y la de disponer de una lista estándar de especies que todos entiendan igual, y esta segunda se ha resuelto, para los faisanes, siguiendo en la práctica la secuencia de Delacour (del Hoyo et al., 1994). De ahí que el capítulo separe con cuidado lo que es una propuesta de parentesco de lo que es una convención de nombres.
De Linneo a Sclater: los primeros sistemas
Siete especies en 1758 y más de sesenta géneros propuestos un siglo después: cómo se fue ordenando el grupo.
La historia de la clasificación de los faisanes empieza con muy pocas especies y una familia mal definida, y avanza durante el siglo XIX a base de descubrimientos, de errores (híbridos y hembras descritos como especies) y de una multiplicación de géneros que acabó provocando la reacción contraria.
Jobling recuerda que la décima edición del Systema Naturae de Linneo (1758) es el comienzo aceptado de la nomenclatura zoológica y que describía 63 géneros y 556 especies de aves; desde entonces se han propuesto más de 50.000 nombres científicos de aves, entre géneros, especies y subespecies (Jobling, 2010). De todo ese conjunto, Delacour cuenta para los faisanes 3 géneros y 7 especies en la obra de Linneo de 1758 (Delacour, 1977). Beebe, que escribía en 1918, daba el mismo número por otra vía: las Gallinae de Linneo tenían cinco géneros y 25 especies, y siete de ellas entran en el campo de su monografía (Beebe, 1918). La tabla las enumera con los nombres que reciben hoy.
| Nombre de Linneo (según Beebe) | Nombre actual | Ficha |
|---|---|---|
| Pavo cristatus | Pavo cristatus, pavo real azul (Beebe, 1918) | pavo real azul |
| Pavo bicalcaratus | Polyplectron bicalcaratum, faisán pavo gris (Beebe, 1918; Elliot, 1872 (vol. I)) | faisán pavo gris |
| Meleagris satyra | Tragopan satyra, tragopán satyr (Beebe, 1918; Jobling, 2010) | tragopán satyr |
| Phasianus gallus | Gallus gallus, gallo rojo (Beebe, 1918; Jobling, 2010) | gallo rojo |
| Phasianus colchicus | Phasianus colchicus, faisán común (Beebe, 1918; Jobling, 2010) | faisán común |
| Phasianus pictus | Chrysolophus pictus, faisán dorado (Beebe, 1918; Jobling, 2010) | faisán dorado |
| Phasianus nycthemerus | Lophura nycthemera, faisán plateado (Beebe, 1918; Jobling, 2010) | faisán plateado |
Solo dos de los siete, el pavo real azul y el faisán común, conservan hoy el género con que Linneo los describió; los otros cinco (el faisán pavo gris, el tragopán, el gallo, el dorado y el plateado) han pasado a géneros distintos.
Linneo agrupó a esas aves en géneros que nos resultan extraños: en la edición de 1766, que es de la que parte Elliot, la familia de los faisanes contenía los géneros Pavo, Meleagris, Phasianus y Numida, y bajo Pavo figuraban tanto los pavos reales como un faisán pavo, Polyplectron bicalcaratum; Elliot cuenta solo diez especies de las que hoy pertenecen a la familia (Elliot, 1872 (vol. I)). Un tragopán estaba entre los Meleagris, y los faisanes verdaderos, el gallo y el plateado compartían el género Phasianus (Beebe, 1918; Elliot, 1872 (vol. I)). Elliot explica por qué no remonta su revisión más allá de esa edición: hasta mucho después de Linneo los miembros de la familia no se entendieron bien ni se agruparon en géneros apropiados (Elliot, 1872 (vol. I)).
Un siglo de listas
La cronología que sigue se apoya en la revisión histórica que Elliot incluyó en su monografía de 1872, completada con los recuentos de Delacour (Delacour, 1977; Elliot, 1872 (vol. I)). Elliot juzga las obras con una dureza que hoy sorprende (llama plagiario a Gmelin y descarta algunos sistemas como inviables); esos juicios son suyos y se recogen aquí solo como parte del contexto.
- Décima edición del Systema Naturae de Linneo: siete especies de faisanes, repartidas en tres géneros según Delacour (Delacour, 1977; Jobling, 2010).
- Duodécima edición: Linneo reúne Pavo, Meleagris, Phasianus y Numida, con diez especies de las que hoy son fasiánidos (Elliot, 1872 (vol. I)). La nomenclatura se fija en 1758, pero muchos autores, sobre todo británicos, tomaron la edición de 1766 como punto de partida hasta 1901 (Jobling, 2010).
- Gmelin amplía la lista a cinco géneros (el género Phasianus pasa a incluir el faisán común, el de collar, el argus, el dorado, el plateado y el gallo) y Latham añade el monal, Phasianus impeyanus (Elliot, 1872 (vol. I)).
- Temminck, en su historia natural de las palomas y los gallináceos, reconoce 6 géneros y 15 especies de faisanes según el recuento de Delacour (Elliot data sus géneros en 1815) (Delacour, 1977; Elliot, 1872 (vol. I)).
- G. R. Gray publica una larga lista, confusa según Elliot, con híbridos y hembras tratados como especies; Temminck da una lista de 10 formas de Phasianus (Elliot, 1872 (vol. I)).
- Wagler crea Thaumalea e Ithaginis (1832), Hodgson Crossoptilon (1838) y G. R. Gray Pucrasia (1841) (Elliot, 1872 (vol. I)).
- G. R. Gray, en Genera of Birds, divide la familia en cinco subfamilias (Pavoninae, Phasianinae, Gallinae, Meleagrinae y Lophophorinae) (Elliot, 1872 (vol. I)).
- Bonaparte propone dos familias, Pavonidae y Phasianidae, con subfamilias y secciones; Elliot opinaba que era una clasificación poco probable de ser adoptada y que su lista de especies estaba exagerada (Elliot, 1872 (vol. I)).
- Sclater publica la mejor lista hasta entonces, con 56 especies, un arreglo de géneros y una tabla de distribución geográfica (Elliot, 1872 (vol. I)).
- Huxley, a partir del esqueleto, divide los gallináceos en dos grupos: Peristeropodes (megápodos y crácidos) y Alecteropodes (fasiánidos y tetraónidos) (Elliot, 1872 (vol. I)).
- Elliot publica su monografía: ocho subfamilias y 18 géneros (Elliot, 1872 (vol. I)).
- Ogilvie-Grant, en el catálogo del Museo Británico, reconoce 17 géneros y 77 especies (Delacour da 1892 y Johnsgard 1893 para la obra) (Delacour, 1977; Johnsgard, 1986).
Híbridos, hembras y la multiplicación de especies
Una parte de la confusión del siglo XIX tiene una causa que Elliot señala con insistencia: no saber reconocer a un híbrido. En su introducción sostiene que en los fasiánidos la hibridación llega quizá más lejos que en ningún otro grupo conocido, que muchos individuos nacidos del cruce de dos especies se describieron como especies nuevas y que buena parte del desorden de la nomenclatura procede de esa incapacidad (Elliot, 1872 (vol. I)). Su propia lista de la literatura da ejemplos: un híbrido entre Euplocamus albocristatus y E. horsfieldi se bautizó como un monal (Lophophorus cuvieri), otro entre E. albocristatus y E. melanotis como Phasianus hamiltoni, y la hembra del faisán ensangrentado se describió como una especie aparte, Phasianus gardneri, y la del faisán cola rosa malayo (Euplocamus erythrophthalmus en su nomenclatura) como Phasianus purpureus (Elliot, 1872 (vol. I)).
La consecuencia fue una inflación de géneros. Para las 76 especies que Elliot daba por conocidas se habían propuesto, según él, más de sesenta géneros diferentes, es decir, casi uno por cada especie, lo que mostraba hasta dónde habían llegado los sistemáticos en su afán de multiplicar nombres (Elliot, 1872 (vol. I)). Beebe, cuarenta y seis años después, lo expresó con la misma ironía: bastaría buscar en la literatura para encontrar un género sugerido para cada especie hoy reconocida, y cada uno reflejaría el sesgo personal de un autor sincero pero sin perspectiva general (Beebe, 1918). Ambos autores, y después Delacour, reaccionaron en la dirección contraria: menos géneros, más amplios, definidos por caracteres estructurales y no por el simple color del plumaje (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I)).
Elliot (1872): ocho subfamilias y los géneros de la monografía
El primer sistema completo de la familia, con géneros que hoy suenan a museo: Ceriornis, Thaumalea, Euplocamus, Argus.
La monografía de Daniel Giraud Elliot, publicada en Nueva York en 1872, es el primer tratamiento de toda la familia con láminas a la altura de su asunto, y su introducción contiene el sistema de clasificación más detallado de su tiempo. Muchos de los nombres que figuran en sus láminas (Thaumalea, Ceriornis, Euplocamus, Argus) ya no se usan, pero son los que hay que conocer para leer la literatura antigua.
Elliot reparte los fasiánidos en ocho subfamilias y 18 géneros, a los que añade subgéneros cuando quiere señalar peculiaridades que no merecen rango de género (Elliot, 1872 (vol. I)). Su recuento de la familia, 76 especies, incluye aves que hoy no se consideran faisanes: los pavos, las pintadas y Tetraophasis, que Elliot dudó en incluir (Elliot, 1872 (vol. I)). La tabla muestra su sistema y lo que reúne cada grupo con los nombres actuales.
| Subfamilia de Elliot | Géneros y subgéneros en su monografía | Equivalencia actual |
|---|---|---|
| Pavoninae | Pavo, Polyplectron (con Chalcurum como subgrupo), Argus, Crossoptilon | Pavo, Polyplectron, Argusianus y Rheinardia (su Argus ocellatus), Crossoptilon (Delacour, 1977; Elliot, 1872 (vol. I)) |
| Lophophorinae | Lophophorus (con Chalcophasis para el monal de Sclater), Tetraophasis, Ceriornis, Pucrasia | Lophophorus; Tetraophasis, hoy entre las perdices; Tragopan; Pucrasia (Elliot, 1872 (vol. I); Madge y McGowan, 2002) |
| Meleagrinae | Meleagris | Pavos, hoy fuera de los faisanes (Elliot, 1872 (vol. I); Madge y McGowan, 2002) |
| Phasianinae | Phasianus (subgéneros Catreus, Syrmaticus y Graphephasianus) y Thaumalea | Phasianus, Catreus, Syrmaticus y Chrysolophus (Elliot, 1872 (vol. I); Jobling, 2010) |
| Euplocaminae | Euplocamus (subgéneros como Gallophasis, Grammatoptilus, Diardigallus, Hierophasis, Lophura y Houppiferus) e Ithaginis | Lophura; Ithaginis (Elliot, 1872 (vol. I); Jobling, 2010) |
| Gallinae | Gallus | Gallus (Elliot, 1872 (vol. I)) |
| Agelastinae | Phasidus, Agelastes | Pintadas del bosque africano (Elliot, 1872 (vol. I); Madge y McGowan, 2002) |
| Numidinae | Acryllium, Numida (con Guttera como subgrupo) | Pintadas (Elliot, 1872 (vol. I); Madge y McGowan, 2002) |
Elliot da en su texto el número de especies solo de algunos grupos: cuatro géneros y catorce especies en los Pavoninae, dos géneros y quince especies en los Phasianinae, dos géneros y catorce en los Euplocaminae y un género con cuatro especies en los Gallinae (Elliot, 1872 (vol. I)).
Criterios: estructura, no color
Elliot sostiene que el rango de género debe apoyarse en un carácter peculiar de la estructura anatómica y nunca en el simple color del plumaje, y que la costumbre de multiplicar géneros y especies sin base suficiente confunde más de lo que ordena (Elliot, 1872 (vol. I)). Su apoyo anatómico procede sobre todo de Huxley (1868): la forma de la pelvis, del esternón y de la fúrcula. En los Phasianinae propiamente dichos (Phasianus, Thaumalea) y en Pucrasia, por ejemplo, la pelvis le parecía intermedia, ni especialmente tetraonina ni especialmente galina; la de los monales se inclinaba más hacia el tipo galino, y la de los pavos reales era la más aberrante de la serie (Elliot, 1872 (vol. I)).
Con esa base, su arreglo es honradamente provisional. Admite que cualquier sistema de la familia es en parte artificial, porque faltan muchos eslabones que quizá nunca existieron y porque algunos géneros se parecen a otros entre los que media una separación amplia; por eso empieza por los Pavoninae, no por ningún privilegio de rango, sino porque Pavo se relaciona a la vez con Lophophorus y con las pintadas, y quería que, si las subfamilias se dispusieran en círculo, esas aves quedaran lo más cerca posible (Elliot, 1872 (vol. I)).
Géneros grandes con subgéneros
Es en el tratamiento de los géneros donde Elliot resulta más moderno. Agrupa bajo Phasianus a los faisanes verdaderos, al faisán Wallich (subgénero Catreus), a los faisanes de cola larga (Syrmaticus) y al cobrizo (Graphephasianus), y bajo Euplocamus a los kalij, plateados y firebacks, que divide en un grupo de faisanes plateados y otro de faisanes de lomo de fuego (Elliot, 1872 (vol. I)). El conjunto de Euplocamus coincide en lo esencial con el género Lophura de Delacour (Delacour, 1977; Elliot, 1872 (vol. I)). En ambos casos, advierte, las subdivisiones señalan las variaciones que las especies han sufrido por influencias distintas y no justifican por sí solas géneros separados (Elliot, 1872 (vol. I)).
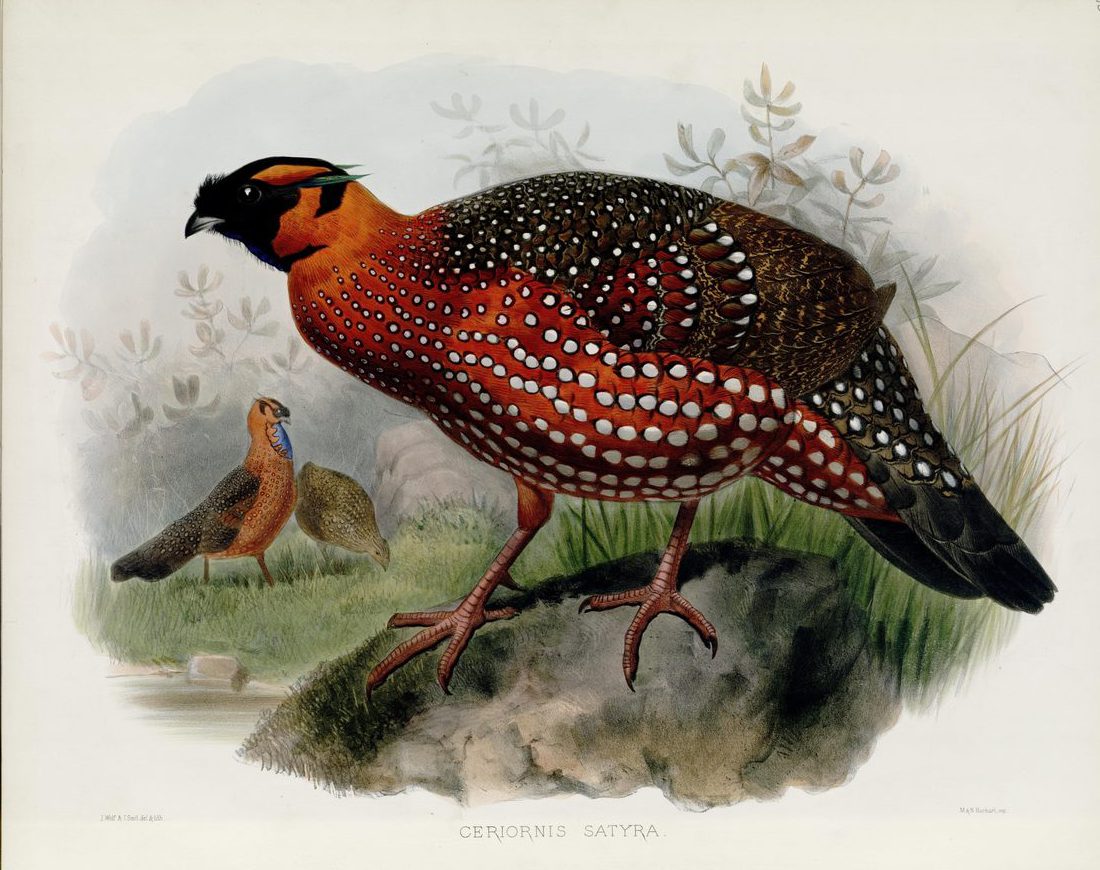
La lámina del tragopán satyr, rotulada «Ceriornis satyra», ilustra el primer caso. Ceriornis era el nombre de género de Swainson (1837) para los tragopanes, que Elliot situaba en los Lophophorinae junto a los monales y los koklass, y que Beebe sustituyó después por Tragopan (Cuvier, 1829) por razón de prioridad (Beebe, 1918; Elliot, 1872 (vol. I)). Elliot describe el rasgo que caracteriza al género, un cuerno carnoso a cada lado de la cabeza, rígido y erecto en los momentos de excitación; y señala que quizá quedara por describir alguna especie de tragopán en el sur de China (Elliot, 1872 (vol. I)). Es la ficha del tragopán satyr la que desarrolla la historia de esas denominaciones.
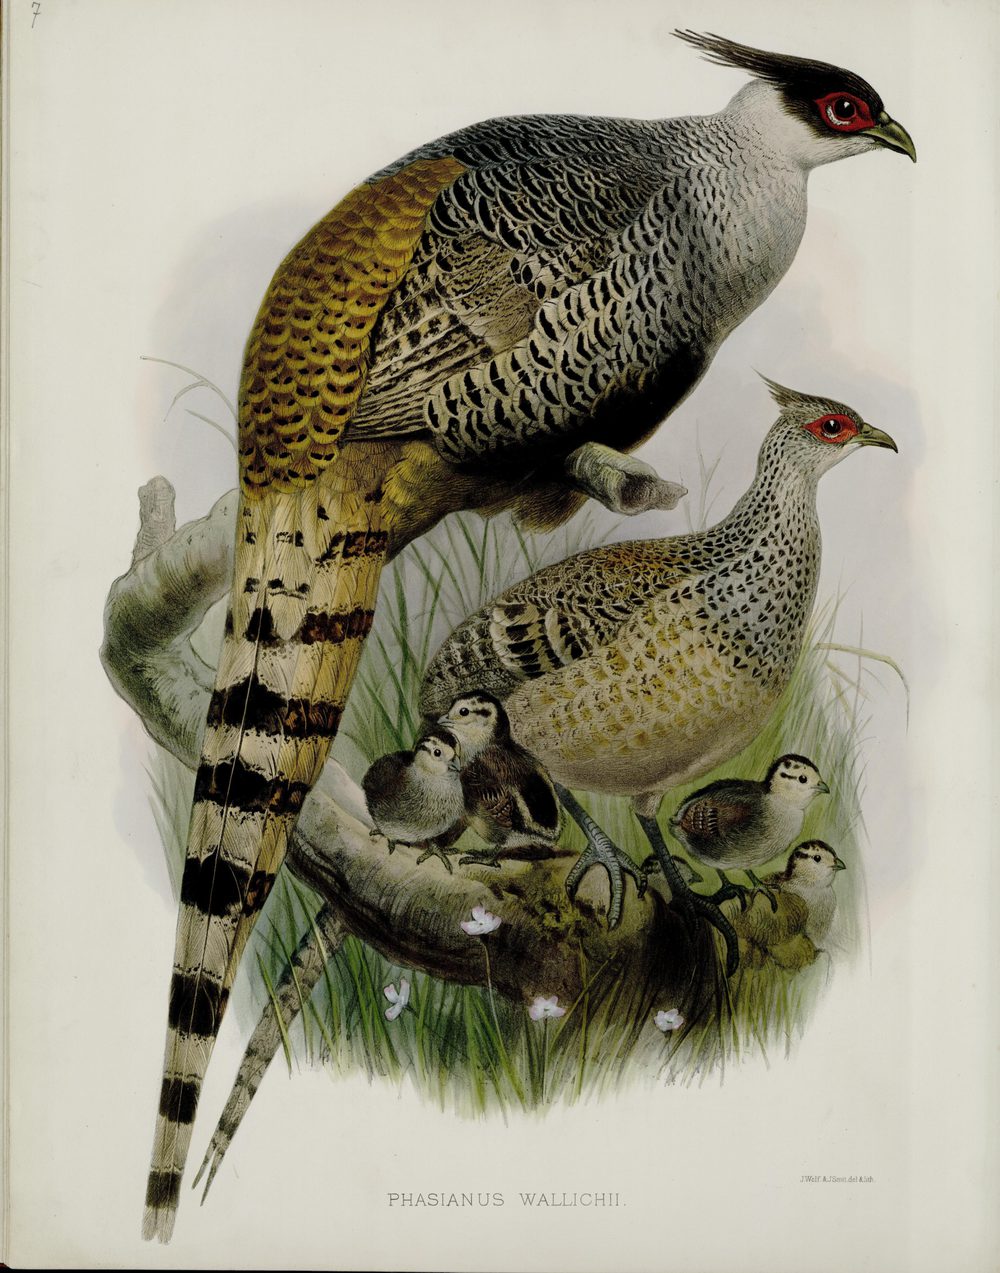
El segundo caso es el del faisán Wallich, que figura en la lámina como «Phasianus wallichii», con el género Catreus reducido a subgénero de Phasianus. Cabanis había creado Catreus en 1851, y Beebe y Delacour lo mantienen como género propio, aislado entre los faisanes del Himalaya, como cuenta la ficha del faisán Wallich (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I)).
Dos casos de nombres que perdieron la batalla
Elliot prefirió Thaumalea (Wagler, 1832) a Chrysolophus (Gray) para el faisán dorado y el de Lady Amherst, argumentando que no es necesario rechazar el nombre de Wagler por haber sido empleado también en entomología y que el de Gray es inapropiado, porque no todas las especies del género tienen cresta dorada (Elliot, 1872 (vol. I)). En el género de los argus mantuvo Argus (Temminck) en lugar de Argusianus (Rafinesque, 1815) o Argusanus (Bonaparte, 1856), con el mismo razonamiento (Elliot, 1872 (vol. I)). En los dos casos el uso posterior le quitó la razón: hoy se usan Chrysolophus y Argusianus (Apéndice de la web, 2026; Delacour, 1977). El último apartado del capítulo explica cómo funciona la regla de prioridad y la de homonimia que gobiernan esas decisiones.
Los rótulos antiguos y su equivalente actual
| Nombre en Elliot (1872) | Nombre actual | Observaciones |
|---|---|---|
| Thaumalea picta, T. amherstiae | Chrysolophus pictus, C. amherstiae | Jobling anota Thaumalea como sinónimo de Chrysolophus (Jobling, 2010) |
| Ceriornis satyra, melanocephala, temmincki, caboti, blythi | Tragopan (cinco especies) | Ceriornis, sinónimo de Tragopan (Elliot, 1872 (vol. I); Jobling, 2010) |
| Euplocamus y sus subgéneros | Lophura | Gallophasis, Grammatoptilus, Diardigallus, Hierophasis, Houppifer y Euplocomus figuran como sinónimos de Lophura en Jobling (Jobling, 2010) |
| Phasianus wallichii | Catreus wallichii | Subgénero Catreus en Elliot, género propio hoy (Delacour, 1977; Elliot, 1872 (vol. I)) |
| Phasianus reevesi, P. soemmerringi, Calophasis ellioti | Syrmaticus reevesii, S. soemmerringii, S. ellioti | Calophasis (Elliot, 1872) y Graphephasianus son sinónimos de Syrmaticus (Elliot, 1872 (vol. I); Jobling, 2010) |
| Phasianus shawi, insignis, mongolicus, torquatus, formosanus, decollatus, elegans | Subespecies de Phasianus colchicus | Elliot las trata como especies; hoy son subespecies (véase el apartado de especies) (Delacour, 1977; Elliot, 1872 (vol. I)) |
| Argus giganteus, A. ocellatus | Argusianus argus, Rheinardia ocellata | Argus, sinónimo de Argusianus (Elliot, 1872 (vol. I); Jobling, 2010) |
| Lophophorus l’huysi, L. sclateri | Lophophorus lhuysii, L. sclateri | Chalcophasis, subgénero para el monal de Sclater (Elliot, 1872 (vol. I)) |
La lista no es exhaustiva: recoge los casos que más se encuentran en la literatura antigua y en las láminas.
Beebe, Delacour y Johnsgard: la clasificación clásica del siglo XX
La muda de la cola como criterio, dieciséis géneros como solución y el dendrograma de 1986.
Entre 1914 y 1986 tres autores fijaron el marco que aún usan casi todos los libros: Beebe, que propuso las subfamilias por la muda de la cola; Delacour, que redujo los géneros a dieciséis; y Johnsgard, que los ordenó en un dendrograma.
Beebe (1914–1922): la muda de la cola
Según Johnsgard, casi todas las clasificaciones posteriores dependen en alguna medida de los estudios que Beebe hizo en 1914, cuando, preparando su monografía, pasó varios meses estudiando ejemplares en los grandes museos del mundo (Johnsgard, 1986). Tras examinar varias decenas de caracteres anatómicos, Beebe eligió como criterio principal de los grupos genéricos la secuencia en que se mudan las plumas de la cola (rectrices) (Beebe, 1918; Johnsgard, 1986). En las perdices del Viejo Mundo la muda empieza por las rectrices centrales y avanza hacia los lados (centrífuga); en la mayoría de los faisanes típicos va al revés, de fuera adentro (centrípeta) (Johnsgard, 1986). Beebe se apoyaba en que ese carácter coincidía con las relaciones que ya se daban por supuestas y mantenía en toda la vida de un ave, en todos los individuos de la especie y en todos los miembros del género (Beebe, 1918).
| Subfamilia de Beebe (1918) | Muda de la cola | Géneros incluidos |
|---|---|---|
| Perdicinae | Centrífuga (desde las rectrices centrales) | Ithagenes (= Ithaginis), Tragopan (Beebe, 1918; Johnsgard, 1986) |
| Phasianinae | Centrípeta (desde las rectrices externas) | Lophophorus, Pucrasia, Catreus, Syrmaticus, Phasianus, Chrysolophus, Gallus, Acomus, Gennaeus, Lophura, Crossoptilon, Lobiophasis (Beebe, 1918) |
| Argusianinae | Desde el tercer par contado desde el central, hacia fuera y hacia dentro | Chalcurus, Polyplectron, Rheinardius, Argusianus (Beebe, 1918; Johnsgard, 1986) |
| Pavoninae | Desde el sexto par contado desde el central, hacia fuera (según su clave) | Pavo (Beebe, 1918) |
De los 51 géneros que Sharpe reconocía en la familia, Beebe incluyó 22 en su monografía y los redujo a 19; el pavo del Congo era aún desconocido (Beebe, 1918; Johnsgard, 1986).
El criterio tiene, sin embargo, límites. Johnsgard recuerda que Stresemann (1965) confirmó las observaciones, pero que en el faisán Reeves los jóvenes mudan la cola de forma centrífuga y los adultos de forma centrípeta (Mueller y Seibert, 1966), y que Marien (1951) halló en dos géneros de perdices (Perdix y Ammoperdix) una muda postjuvenil que empieza por el tercer o el cuarto par y sigue por ambos lados, el patrón que Beebe atribuía a las Argusianinae (Johnsgard, 1986). Peters (1934) no siguió esa convención y reunió en las Phasianinae a las perdices del Viejo Mundo y a los faisanes típicos (Johnsgard, 1986). El propio Beebe lo veía así: tras buscar sin éxito diferencias consistentes en huesos, músculos y plumas, halló por fin un carácter externo y pasajero, pero que se repite con ritmo regular y de forma constante: la muda de la cola (Beebe, 1918).
Beebe (1918): un segundo criterio y una evolución radial
Para decidir los límites de los géneros, Beebe recurrió a un factor que él mismo consideraba más novedoso que la muda: la distribución geográfica. Su regla era no incluir en un mismo género especies cuyas áreas coincidan o se solapen, y con ella reordenó, de forma conservadora, géneros que llevaban años en disputa (Beebe, 1918). Reconocía, no obstante, que ningún árbol genealógico definido había sido posible y que la evolución de los faisanes parece haber sido radial: las variaciones se produjeron en todas las direcciones, no en una línea de grupo tras grupo (Beebe, 1918). Por eso propone solo un esquema en el espacio, en el que se ve que los kalij y plateados, los firebacks y el faisán de Bulwer guardan un parentesco evidente, que los koklass son un grupo aparte y que los dorados y los de Lady Amherst son una pareja magnífica del oeste de China cuyo parentesco con los demás es un misterio (Beebe, 1918).
Delacour (1951, 1977): dieciséis géneros
Jean Delacour publicó The Pheasants of the World en 1951 y lo revisó en 1977; la web usa la tercera impresión de 1964 de la primera edición (Delacour, 1977). Su propuesta consiste en reunir las aves en géneros grandes, en los que las diferencias de grado se expresan con especies y subespecies, y en reconocer dieciséis géneros naturales (Delacour, 1977). Para llegar a ellos pesaba conjuntamente la morfología (patrón de color, carúnculas, cresta, cola, alas, patas), los pollitos y los huevos, la biología (conducta, voz, cortejo, nido), la muda de la cola, la hibridación (Ghigi y Yamashina) y, con cautela, la citología y la serología (Delacour, 1977). Rechazaba, en cambio, un criterio único: la propuesta de Ghigi y Yamashina de definir géneros solo por la fertilidad de los híbridos le parecía tan inaceptable como cualquier otro sistema basado en un solo rasgo (Delacour, 1977).
El resultado más visible fue la fusión de todos los kalij, plateados, azules y firebacks en el género Lophura, tras una revisión en museos y con aves vivas publicada en Ibis (1949): géneros como Gennaeus, Hierophasis, Houppifer, Diardigallus y Lobiophasis dejaban de ser necesarios porque formas como el faisán de Edwards, el imperial y el de Salvadori hacían de eslabón (Delacour, 1977). Delacour aceptaba así 49 especies y 122 subespecies (124 en la edición de 1977, según Johnsgard) en 16 géneros, frente a los 19 de Beebe y los 21 de Peters (Delacour, 1977; Johnsgard, 1986). Quedaba una advertencia de fondo: para él los dieciséis grupos tenían entre sí conexiones lejanas o ninguna evidente y parecían de origen polifilético (Delacour, 1977).
Johnsgard (1986): el dendrograma
En The Pheasants of the World (1986), Johnsgard sigue de cerca a Delacour: acepta también 49 especies, mantiene su secuencia de géneros con la excepción de la posición de Crossoptilon y ofrece dos dendrogramas de elaboración propia (Johnsgard, 1986). El primero muestra los parentescos que supone entre géneros y especies de faisanes, con «antepasados perdicinos generalizados» en la base y, por encima, los tragopanes, el faisán ensangrentado, los monales, el koklass, los gallos, los faisanes de monte, los orejudos, los de cola larga, los comunes, los argus y los pavos; el segundo sitúa a los faisanes entre los demás galliformes, con la información ecológica y estructural superpuesta (Johnsgard, 1986). Johnsgard anota además dos diferencias con Delacour: considera que la pluma única del Argusianus bipunctatus no basta para una especie y la trata como subespecie, y reconoce como especie al faisán pavo de Borneo, que Delacour trataba como subespecie del malayo (Johnsgard, 1986). Dice, por último, que ha colocado a Gallus antes de lo que hizo Delacour (1977) para subrayar su aislamiento y no una afinidad concreta (Johnsgard, 1986). En la tabla de contenidos de la impresión de 1964 que se ha consultado, Gallus ya precede a Lophura, de modo que la diferencia debe de referirse a la edición de 1977, que no se ha podido consultar.
Cinco esquemas, dieciséis géneros: la comparación
Qué hacía cada autor con cada género actual, y cuántos géneros, especies y subespecies contaba.
La mejor forma de entender cómo han cambiado los sistemas es seguir a cada uno de los dieciséis géneros actuales a través de los esquemas de Elliot, Beebe, Delacour, Johnsgard y Madge y McGowan. La tabla recoge lo que dicen las obras; donde una fuente no lo trata expresamente, la casilla lo indica.
| Género actual | Elliot (1872) | Beebe (1918) | Delacour (1951, 1977) | Johnsgard (1986) | Madge y McGowan (2002) y HBW (1994) |
|---|---|---|---|---|---|
| Ithaginis | Euplocaminae: Ithaginis | Perdicinae: Ithagenes | Ithaginis, 1 especie | Ithaginis, 1 sp.; sin base clara para ponerlo con faisanes o con perdices | Phasianinae: Ithaginis (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopan | Lophophorinae: Ceriornis | Perdicinae: Tragopan | Tragopan, 5 sp. | Tragopan, 5 sp. | Tragopan, 5 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Pucrasia | Lophophorinae: Pucrasia | Phasianinae: Pucrasia | Pucrasia, 1 sp. | Pucrasia, 1 sp. | Pucrasia, 1 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Lophophorus | Lophophorinae: Lophophorus | Phasianinae: Lophophorus | Lophophorus, 3 sp. | Lophophorus, 3 sp. | Lophophorus, 3 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallus | Gallinae: Gallus | Phasianinae: Gallus | Gallus, 4 sp. | Gallus, 4 sp. | Gallus, 4 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Crossoptilon | Pavoninae: Crossoptilon, 4 formas | Phasianinae: Crossoptilon | Crossoptilon, 3 sp. | Crossoptilon, 3 sp. | Crossoptilon, 4 sp. en Madge y McGowan (separan a harmani) (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Lophura | Euplocaminae: Euplocamus, con varios subgéneros | Phasianinae: cuatro géneros (Gennaeus, Acomus, Lophura, Lobiophasis) | Lophura, 10 sp. | Lophura, 10 sp. | Lophura, 10 sp. numeradas y cinco subgéneros (Gennaeus, Hierophasis, Acomus, Euplocamus, Lobiophasis) en Madge y McGowan (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Catreus | Subgénero de Phasianus | Phasianinae: Catreus | Catreus, 1 sp. | Catreus, 1 sp. | Catreus, 1 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Syrmaticus | Subgéneros de Phasianus (Syrmaticus, Graphephasianus) y Calophasis | Phasianinae: Syrmaticus | Syrmaticus, 5 sp. | Syrmaticus, 5 sp. | Syrmaticus, 5 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Phasianus | Phasianinae: Phasianus en sentido estricto, con nueve especies (más tres subgéneros) | Phasianinae: Phasianus (según la ficha del faisán común, el verde aparte de las formas continentales) | Phasianus, 2 sp. | Phasianus, 2 sp. | Phasianus, 2 sp. (Delacour, 1977; Elliot, 1872 (vol. I); Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Chrysolophus | Phasianinae: Thaumalea | Phasianinae: Chrysolophus | Chrysolophus, 2 sp. | Chrysolophus, 2 sp. (superespecie) | Chrysolophus, 2 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Polyplectron | Pavoninae: Polyplectron, con Chalcurum como subgrupo | Argusianinae: Chalcurus y Polyplectron | Polyplectron, 6 sp. | Polyplectron, 7 sp. | Polyplectron, 8 sp. en Madge y McGowan (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Rheinardia | Pavoninae: dentro de Argus (A. ocellatus) | Argusianinae: Rheinardius | Rheinartia, 1 sp. | Rheinartia, 1 sp. | Rheinardia, 1 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Argusianus | Pavoninae: Argus | Argusianinae: Argusianus | Argusianus; bipunctatus como especie, según Johnsgard | Argusianus, 1 sp. (bipunctatus como subespecie) | Argusianus, 2 sp. en Madge y McGowan (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo | Pavoninae: Pavo | Pavoninae: Pavo | Pavo, 2 sp. | Pavo, 2 sp. | Pavo, 2 sp. (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I); Johnsgard, 1986; Madge y McGowan, 2002) |
| Afropavo | Aún desconocido | Aún desconocido | Afropavo, descubierto en el siglo XX | Afropavo, 1 sp. | Afropavo, 1 sp. (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002) |
Los dos últimos esquemas coinciden en la lista de géneros de Delacour. Las cifras de Madge y McGowan son las de sus especies numeradas; en los dos casos donde dan dos formas bajo un mismo número (Lophura edwardsi y L. inornata) se cuentan como una. HBW da solo los totales de la subfamilia: 49 especies en 16 géneros (del Hoyo et al., 1994).
Tres lecturas salen de la tabla. La primera es la de la tendencia a reunir: de los 18 géneros de Elliot y los 19 de Beebe se pasa a los 16 de Delacour, y casi todo el ahorro procede de dos grupos, los kalij, plateados y firebacks, que se funden en Lophura, y las aves de cola ocelada, donde Chalcurus y Polyplectron se reúnen en un solo género (Beebe, 1918; Delacour, 1977; Elliot, 1872 (vol. I)). La segunda es que los géneros que hoy parecen más aislados (Gallus, Lophophorus, Pucrasia, Catreus) lo parecen desde hace tiempo: Beebe, Delacour y Johnsgard los mantienen separados, aunque no se pongan de acuerdo en dónde situarlos (Beebe, 1918; Delacour, 1977; Johnsgard, 1986). La tercera es que las diferencias más grandes están en cómo se llega a las subfamilias, no en cómo se agrupan los géneros: Ithaginis y Tragopan están con las perdices para Beebe y entre los faisanes, aunque con reservas, para los demás (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Géneros, especies y subespecies según cada autor
| Autor y obra | Géneros | Especies | Subespecies |
|---|---|---|---|
| Linneo, 1758 | 3 | 7 | — |
| Temminck, 1813 | 6 | 15 | 0 |
| Elliot, 1872 | 12 (Delacour); 17 (Johnsgard); 18 (el propio Elliot, para toda la familia) | 63 (Delacour); 77 (Johnsgard); 76 (Elliot, toda la familia) | 1 (Delacour) |
| Ogilvie-Grant, 1892–1893 | 17 | 77 | 11 (Delacour) |
| Beebe, 1918–1922 | 19 | 63 (Delacour); 61 (Johnsgard) | 49 (Delacour) |
| Peters, 1934 | 21 | 50 (Delacour); 49 (Johnsgard) | 106 (Delacour) |
| Delacour, 1951 y 1977 | 16 | 49 | 122 (1951); 124 (1977, según Johnsgard) |
| Johnsgard, 1986 | 16 | 49 | — |
| HBW, 1994 | 16 | 49 | — |
| Fuller y Garson, 2000 | — | 51 | — |
| Madge y McGowan, 2002 | 16 | 52 numeradas | — |
| Esta guía (apéndice, 2026) | 16 | 53 | 127 |
Cifras tal como las dan Delacour, Johnsgard, Elliot, HBW, Fuller y Garson, Madge y McGowan y el apéndice de la web; las subespecies de Delacour excluyen las especies monotípicas (Apéndice de la web, 2026; del Hoyo et al., 1994; Delacour, 1977; Elliot, 1872 (vol. I); Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002).
Más allá del plumaje: huesos, proteínas, cromosomas y ADN
Un siglo de pruebas independientes sobre el parentesco, con resultados que a menudo no coinciden entre sí.
Desde mediados del siglo XX la clasificación de los faisanes se ha contrastado con pruebas que no dependen del aspecto: la forma de los huesos, la inmunología, las proteínas del huevo, los cromosomas y, por último, el ADN. El cuadro que resulta no es un árbol único, sino varios fragmentos que coinciden en algunos puntos y se contradicen en otros.
Huesos, sangre y proteínas del huevo (1939–1972)
Johnsgard repasa las propuestas anteriores a las secuencias de ADN. Von Boetticher (1939) dividió la familia en nueve subfamilias: Odontophorinae, Tetraoninae, Lerwinae, Perdicinae (con Ithaginis), Tragopaninae (solo Tragopan), Phasianinae (los demás géneros), Pavoninae (con Afropavo [sic], Chalcurus, Polyplectron, Rheinartia, Argusianus y Pavo), Numidinae y Meleagrinae (Johnsgard, 1986). Verheyen (1956), basándose sobre todo en las proporciones del esqueleto, separó a Afropavo en una subfamilia propia y a Pavo en otra, y reunió en las Phasianinae un conjunto de grupos de géneros en que Galloperdix e Ithaginis iban juntos, Tragopan solo, Pucrasia con Houppifer (= Lophura), y Crossoptilon, Catreus y Polyplectron en el mismo grupo (Johnsgard, 1986). Johnsgard consideraba cuestionable esa separación del pavo del Congo, porque los estudios osteológicos de Lowe (1939) sugerían que era un pavo real primitivo, bastante próximo a los Pavoninae y a las Argusianinae (Johnsgard, 1986).
La inmunología llegó con Mainardi (1963), que propuso que Gallus procede de un tronco parecido a Phasianus, que Pavo y Afropavo se relacionan con un tronco primitivo no muy distinto de las pintadas actuales y que fasiánidos, crácidos y megápodos están emparentados (Johnsgard, 1986). Sibley y Ahlquist (1972), con la electroforesis de las proteínas de la clara de huevo, hallaron un patrón muy parecido entre Coturnix y Phasianus y otros géneros de faisanes, en contra de las pruebas bioquímicas y anatómicas anteriores, que los alejaban, y un patrón comprimido en Perdix; propusieron separar los faisanes típicos (se estudiaron 11 géneros y 20 especies) y las perdices del Viejo Mundo como subfamilias distintas (Johnsgard, 1986). Johnsgard menciona además, para Gallus, distancias inmunológicas relativamente cortas con Phasianus colchicus y con Lophura nycthemera (Johnsgard, 1986).
Cromosomas y ADN-ADN (1981–1994)
Los cromosomas dieron resultados sueltos. Stock y Bunch (1982) comprobaron que Gallus conserva el cariotipo fasiánido ancestral, relativamente cerca del de Coturnix y más lejos del de Phasianus, y que Numida y Pavo son primitivos en su estructura cromosómica; de Boer y van Bocxstaele (1981) confirmaron por el cariotipo la cercanía entre Afropavo y Pavo, aunque observaron también una semejanza de ambos con las pintadas (Johnsgard, 1986). En el género Chrysolophus, el estudio de Yang y colaboradores recoge el mismo número de cromosomas (2n = 82) en el dorado y en el de Lady Amherst (Yang et al., 1992).
Con la hibridación de ADN, Sibley y Monroe (1990, 1993) clasificaron a los faisanes y a las perdices, codornices y francolines del Viejo Mundo como una familia Phasianidae sin los urogallos ni las codornices americanas, y es su lista la que sigue el plan de acción de la UICN de 2000 (Fuller y Garson, 2000). Madge y McGowan señalan que esos estudios aclararon las relaciones entre subfamilias y llevaron a elevar las codornices americanas al rango de familia (Odontophoridae) (Madge y McGowan, 2002). El Handbook recuerda otro estudio, de electroforesis de proteínas de 12 especies de galliformes, que sugirió que los pavos reales están más cerca de las pintadas que de los demás faisanes y que la perdiz gris (Perdix perdix) podía ser en realidad un pequeño faisán (del Hoyo et al., 1994).
Las secuencias de ADN: Kimball y los demás
El trabajo que cambió la discusión fue el de Kimball y colaboradores (1999), cuyo título, tal como lo cita el plan de acción de Fuller y Garson, sostiene que en la filogenia molecular de faisanes y perdices ninguno de los dos linajes es monofilético (Fuller y Garson, 2000). El plan lo resume diciendo que faisanes y perdices quizá no se representen bien como grupos naturales separados (Fuller y Garson, 2000). El informe del Wildlife Institute of India, que reproduce ese árbol, añade que el linaje formado por los tragopanes, el faisán ensangrentado, los monales y el koklass es el más basal de los faisanes, es decir, el que antes se separó; que los análisis cladísticos de la morfología (Dyke y colaboradores, 2003) y de los caracteres de comportamiento y ecología (Fuller, 2000) agrupan igualmente a los tragopanes, con dos excepciones (el monal resultaba morfológicamente más próximo a los urogallos y, por conducta y ecología, el faisán ensangrentado, con los gallos de espolones, quedaba en la base de todo el grupo); y que las relaciones dentro del género Tragopan apuntan a una especiación por barreras geográficas (Randi y colaboradores, 2000) (Sathyakumar y Sivakumar, 2007). No se ha podido consultar en el material del proyecto el artículo original de Kimball et al.; sus resultados se citan solo a través de esos dos informes.
Del lado de Birds of the World, las fichas de la web recogen dos precisiones. Para Phasianus, una filogenia molecular reciente lo sitúa más cerca de un clado que reúne a Catreus, Crossoptilon y Lophura, aunque se creía que sus parientes más próximos eran los faisanes de cola larga (Syrmaticus), sobre todo el de Reeves y el cobrizo (BOW, 2022 (faisán común); BOW, 2022 (faisán verde)). Y para Rheinardia, el argus crestado y el gran argus serían parientes muy próximos, aunque la relación no se ha confirmado genéticamente (BOW, 2021 (argus crestado)). En 2020 se publicó el primer borrador del genoma completo del faisán ensangrentado, orientado a estudiar su adaptación a la altitud y no a la filogenia, y la ficha de la web es la que recoge sus resultados (Fichas de la web, 2026; Zhou et al., 2020).
| Línea de evidencia | Quién y cuándo | Qué sugiere para los faisanes |
|---|---|---|
| Muda de la cola | Beebe, 1914–1922; Stresemann, 1965 | Separa Ithaginis y Tragopan (centrífuga) de los demás; agrupa los espoloneros y argus; con excepciones en el faisán Reeves y en algunas perdices (Beebe, 1918; Johnsgard, 1986) |
| Esqueleto | Verheyen, 1956; Lowe, 1939 | Pavo del Congo como pavo primitivo (Lowe) o forma de enlace con las pintadas (Verheyen) (Johnsgard, 1986) |
| Inmunología | Mainardi, 1963 | Gallus cerca de un tronco tipo Phasianus; pavos reales cerca de las pintadas (Johnsgard, 1986) |
| Proteínas del huevo | Sibley y Ahlquist, 1972; Baker, 1965 | Patrones similares entre Coturnix y faisanes; dorado y Lady Amherst sin distinguir (Johnsgard, 1986) |
| Cariotipo | Stock y Bunch, 1982; de Boer y van Bocxstaele, 1981 | Gallus con el cariotipo ancestral; Afropavo y Pavo próximos entre sí (Johnsgard, 1986) |
| Hibridación de ADN | Sibley y Monroe, 1990 y 1993 | Faisanes y perdices del Viejo Mundo en una sola familia (Fuller y Garson, 2000) |
| Electroforesis de proteínas | Estudio citado en el HBW (1994) | Pavos reales más próximos a las pintadas; Perdix como pequeño faisán (del Hoyo et al., 1994) |
| Secuencias de ADN | Kimball y colaboradores, 1999; Randi y colaboradores, 2000 | Faisanes y perdices no monofiléticos; linaje basal con Tragopan, Ithaginis, Lophophorus y Pucrasia (Fuller y Garson, 2000; Sathyakumar y Sivakumar, 2007) |
| Filogenia molecular reciente (BOW) | Citada en las fichas de BOW | Phasianus cerca del clado Catreus–Crossoptilon–Lophura (BOW, 2022 (faisán común); BOW, 2022 (faisán verde)) |
Las pruebas no son comparables entre sí: usan muestras y géneros distintos. Se resumen solo los resultados que recogen las obras consultadas.
Género por género: posición y parientes
Dieciséis géneros, agrupados por afinidades: lo que dicen Delacour, Johnsgard, Madge y los estudios genéticos de cada uno.
Delacour, Johnsgard, Madge y McGowan y el HBW reconocen los mismos dieciséis géneros, pero no los ordenan igual ni coinciden en qué se parece a qué. Este apartado los recorre en el orden de Delacour, agrupados por afinidades, con un enlace a su entrada en la taxonomía completa.
El linaje de montaña: Ithaginis, Tragopan, Pucrasia y Lophophorus
Ithaginis (faisán ensangrentado) es el género que más cuesta clasificar. Johnsgard no ve buenas razones para ponerlo ni entre los Phasianini ni entre los Perdicini, aunque tampoco para suponerlo más cerca de los faisanes que de las perdices: su monogamia, su vida en bandadas y buena parte de su plumaje son propios de perdices (Johnsgard, 1986). Delacour señalaba que las plumas lanceoladas, la cresta y el pico corto lo acercan al koklass, y Madge y McGowan lo consideran un faisán por su fuerte dimorfismo y como perdiz por la muda centrífuga de la cola (Delacour, 1977; Madge y McGowan, 2002). Beebe lo puso en las Perdicinae junto a los tragopanes (Beebe, 1918).
Tragopan comparte esa muda centrífuga y esa posición de puente (Beebe, 1918; Madge y McGowan, 2002). Johnsgard cree que el satyr y el de Temminck son parientes muy próximos, que el satyr ocupa una posición intermedia entre el de Temminck y el occidental, y que esos tres forman un grupo de especies (una superespecie), distinto del que forman los tragopanes de Blyth y de Cabot (Johnsgard, 1986). El informe del Wildlife Institute of India lee las cosas de otro modo: un análisis de conglomerados con el peso y las medidas reúne al satyr con el occidental y el de Blyth, y al de Temminck con el de Cabot, mientras que el ADN mitocondrial (Randi y colaboradores, 2000) separa al de Blyth del de Cabot, aunque ambos se parezcan en el plumaje y no resuelva de forma consistente la posición del occidental (Sathyakumar y Sivakumar, 2007). Es un ejemplo claro de cómo distintos criterios dan agrupaciones distintas. Las fichas del satyr, el occidental, el de Blyth, el de Temminck y el de Cabot desarrollan cada pareja, y la del de Blyth recoge un estudio genético de 2021 que propone tratar como unidad distinta a las aves de las colinas Chin, en Myanmar (Fichas de la web, 2026; Zou et al., 2021).
Pucrasia (koklass) aparece como un género relativamente aislado, sin parientes próximos. Delacour lo colocó entre Tragopan y Lophophorus por los híbridos que se conocen con ellos y con Catreus, aunque hacía notar que su plumaje lanceolado se parece al de Ithaginis; Johnsgard cree que está bastante cerca del grupo de las perdices y lo deja en esa posición lineal (Johnsgard, 1986). Las fuentes discrepan en la muda de su cola: Delacour la da como centrípeta, de fuera adentro, y Madge y McGowan, como centrífuga, igual que el faisán ensangrentado y los tragopanes (Delacour, 1977; Madge y McGowan, 2002).
Lophophorus (monales: del Himalaya, de Sclater y chino) es, para Delacour, un género antiguo y bien asentado sin vínculos filéticos aparentes con otros, y Johnsgard coincide; las tres especies forman una serie geográfica que refleja su origen (Johnsgard, 1986). Beebe abrió su monografía con los monales porque comparten algo con ciertas perdices y porque unos huesos fósiles se parecen un poco a los suyos, pero reconoció que, por lo demás, no tienen parientes claros (Beebe, 1918). Johnsgard sitúa la separación de los monales de Sclater y del Himalaya, muy cercanos, en el Pleistoceno, según Davison (Johnsgard, 1986).
Gallus y Lophura
Gallus (gallo rojo, gallo verde y compañía) es otro género aislado: Delacour no veía ni cercanía clara con Phasianus ni con Lophura, y Madge y McGowan opinan que casi forma un subgrupo propio y que no tiene parientes próximos (Delacour, 1977; Madge y McGowan, 2002). Johnsgard destaca que no se citan híbridos fértiles con otros géneros de faisanes y que, aun así, las distancias inmunológicas más cortas son con Phasianus colchicus y con Lophura nycthemera; añade que quizá géneros de perdices como Galloperdix estén más cerca de Gallus que cualquier faisán típico (Johnsgard, 1986).
Lophura es el género que más ha crecido con el tiempo: en 1949 Delacour reunió en él a kalij, plateados, azules y firebacks, y el HBW calcula que las formas del kalij y del plateado se habían descrito originalmente como al menos 49 taxones en 28 especies de cuatro géneros (del Hoyo et al., 1994; Delacour, 1977). Johnsgard considera que la especiación del conjunto kalij–plateado es la más compleja de todo el grupo, y que el faisán de Bulwer es la forma más distinta y remota, aunque los firebacks son sus parientes más próximos (Johnsgard, 1986). Madge y McGowan ordenan el género en cinco subgéneros y advierten de que se parece superficialmente a Gallus sin estar probablemente muy emparentado con él (Madge y McGowan, 2002). El apartado de especies vuelve sobre los problemas del género, como el trío vietnamita.
Orejudos, Wallich y el grupo de cola larga
Crossoptilon (orejudos: blanco, marrón, azul y del Tíbet) es un género de especies que se sustituyen geográficamente y que, para Johnsgard, forman claramente una superespecie; la especiación habría empezado con una separación temprana del tronco de crossoptilon y una más reciente entre mantchuricum y auritum (Cheng y colaboradores, 1978) (Johnsgard, 1986). Delacour lo emparentaba con Lophura por las carúnculas de la cara y las colas comprimidas y por los híbridos de fertilidad limitada, y consideraba que el parecido con los monales en el pico curvo y en la costumbre de cavar es probablemente un paralelismo funcional (Delacour, 1977). Delacour pensaba que Catreus podía estar también emparentado, lo que a Johnsgard le parece menos probable que la afinidad con Lophura (Johnsgard, 1986).
Catreus (faisán Wallich) es, para Delacour, un género aislado; Johnsgard lo describe como bastante aislado, con semejanzas con Syrmaticus, Phasianus, Lophura y Crossoptilon y sin opinión firme; y Madge y McGowan, por su comportamiento y su cresta pilosa, lo acercan a los orejudos (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). La ficha del faisán Wallich contrasta las opiniones de cada autor (Fichas de la web, 2026).
Syrmaticus (de cola larga: de Elliot, de Hume, mikado, cobrizo y venerado) y Phasianus son los géneros que más cerca están uno de otro. Johnsgard cree que podrían fundirse, pero Delacour hacía notar que las cinco especies de Syrmaticus forman un grupo natural distinto del de Phasianus y que los pollitos de ambos son distintos; el cobrizo, por su parte, es el menos típico de los Syrmaticus y algunos autores (Yamashina, 1976) lo incluyen en Phasianus (Delacour, 1977; Johnsgard, 1986). Johnsgard, que no ve ventaja en fundirlos, apunta además que los híbridos entre ambos géneros tienen una fertilidad reducida (Johnsgard, 1986). Delacour reconocía en Syrmaticus una superespecie, la de ellioti y humiae (Delacour, 1977; Johnsgard, 1986). La novedad de los datos moleculares, según las fichas de BOW, es que Phasianus estaría en realidad más cerca del clado Catreus–Crossoptilon–Lophura (BOW, 2022 (faisán común); BOW, 2022 (faisán verde)).
Los dorados: Chrysolophus
Chrysolophus (faisán dorado y de Lady Amherst) es un género de dos especies tan semejantes en los rasgos del género que casi nadie ha dudado de su afinidad (Madge y McGowan, 2002). Con quién están emparentadas es más discutido. Delacour veía afinidades con Phasianus, por el modo de cantar, y con Polyplectron, por las notas de llamada, y por eso lo situaba entre los dos (Delacour, 1977). Johnsgard no considera que sean un eslabón y, por los pollitos y la conducta, cree que los grupos más próximos son Lophura y el conjunto Syrmaticus–Phasianus; recuerda que los híbridos con el faisán cheer son estériles, que los cruces con el plateado dan machos fértiles y hembras estériles y que, con el común, el verde y el de Reeves, solo algunos machos son fértiles (Johnsgard, 1986). El libro de Yang y colaboradores estima, con ADN mitocondrial, que los dos géneros Phasianus y Chrysolophus se separaron hace unos 3,6 millones de años y las dos especies de Chrysolophus hace unos 0,6 millones, con la salvedad de que esas cifras dependen de la tasa de cambio que se suponga (Yang et al., 1992).
Espoloneros, argus, pavos y pavo del Congo
Polyplectron (faisán pavo de Sumatra y compañía) es el género de los faisanes pavo o espoloneros, y su relación con los argus es relativamente clara: Delacour los une con Rheinartia y Argusianus por la muda de las rectrices desde el tercer par y por la puesta de dos huevos, un rasgo especial entre los faisanes (Delacour, 1977). Johnsgard considera al faisán pavo de Sumatra (chalcurum) la forma más generalizada y a inopinatum su pariente próximo, y prefiere mantener un único género Polyplectron, en lugar de separar Chalcurus como hacía Beebe, porque inopinatum es transicional y los híbridos con el pavo gris son fértiles (Johnsgard, 1986). Delacour hace notar también que la hembra del faisán dorado se parece en forma y en voz a la del faisán pavo de Sumatra, lo que sugiere un enlace entre los grupos (Delacour, 1977).
Rheinardia (argus crestado) y Argusianus (gran argus) se consideran parientes próximos desde Beebe. Davison propone que ambos descienden de un antepasado común, y que el crestado perdió el cortejo frontal mientras el gran argus lo elaboraba, tras convivir largo tiempo en la península malaya (Johnsgard, 1986). Johnsgard los deriva de un tronco compartido con los espoloneros típicos, Delacour los da por ciertamente emparentados con ellos, y Birds of the World considera que ambas formas son parientes próximos, aunque sin confirmación genética (BOW, 2021 (argus crestado); Delacour, 1977; Johnsgard, 1986).
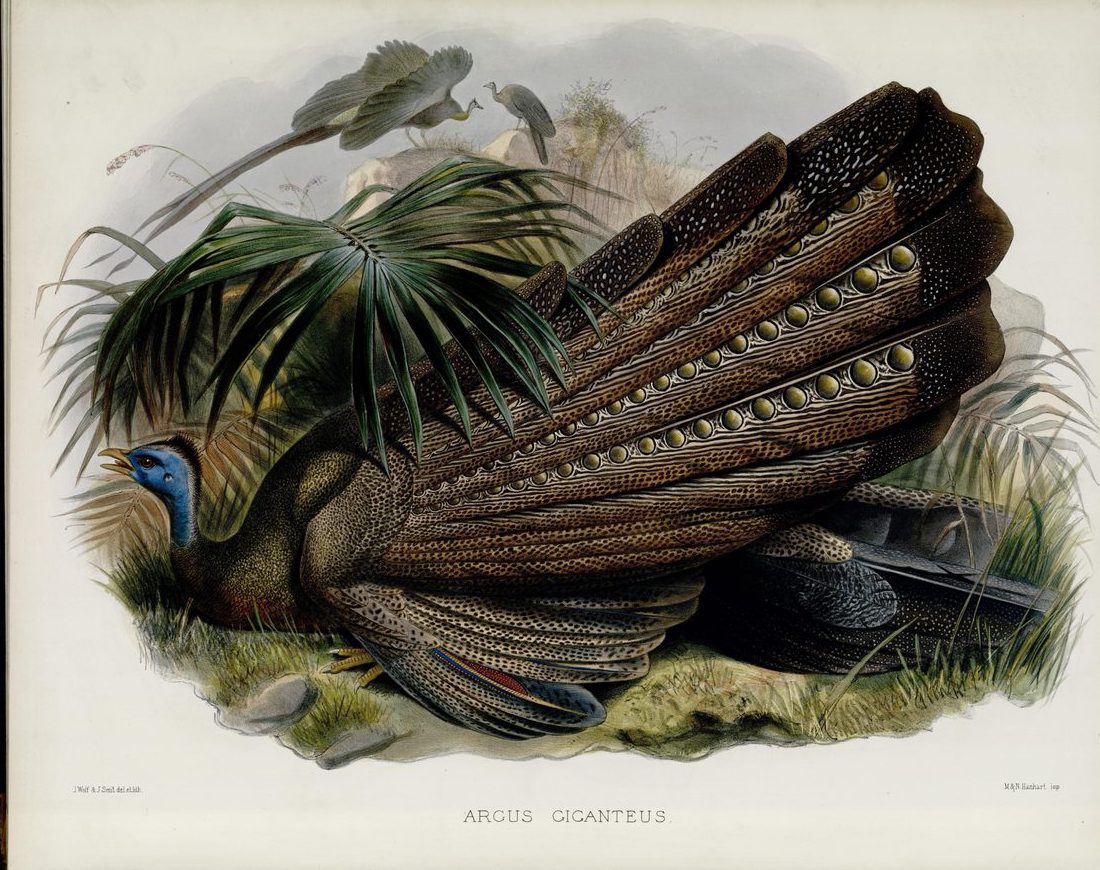
La lámina de Elliot para el gran argus lleva el rótulo «Argus giganteus»; el género de este ave, hoy Argusianus, procede de Rafinesque (1815), nombre que Elliot descartó en favor del Argus de Temminck (Apéndice de la web, 2026; Elliot, 1872 (vol. I)).
Pavo (azul y verde) y Afropavo (pavo del Congo) cierran la secuencia. Para Delacour los pavos reales son «únicos», con ocelos muy distintos de los de los argus, y el pavo del Congo está seguramente emparentado, aunque a distancia, con ellos (Delacour, 1977). Johnsgard piensa que los dos pavos son una superespecie, buenas especies cuyos híbridos son totalmente fértiles, y que el pavo del Congo es probablemente el pariente más próximo de Pavo, un pavo primitivo que, a su juicio, no llegó a adquirir los ocelos del macho (en vez de perderlos) y que conserva el cortejo generalizado de los demás faisanes (Johnsgard, 1986). El descubrimiento de la especie, en 1936 (Chapin), obligó a revisar las clasificaciones: Beebe no pudo incluirla porque no se conocía, y la discusión sobre su lugar, que recoge el apartado anterior, sigue abierta (Apéndice de la web, 2026; Beebe, 1918; Johnsgard, 1986).
Especies y superespecies: dónde termina una especie
Pares y grupos de especies hermanas, subespecies que ascienden a especie y especies que descienden a subespecie: las decisiones de rango y los estudios que las sostienen.
Entre un género y una subespecie hay decisiones de rango que cambian el recuento de especies sin cambiar un solo ave. En los faisanes abundan los pares de formas casi iguales que se sustituyen en el mapa, y cada autor decide si son una especie, dos o un conjunto intermedio.
Jobling define la superespecie como un grupo de taxones muy próximos, que ya no se consideran subespecies, derivados de un tronco común y que ocupan áreas contiguas, y llama alospecies a cada uno de sus miembros geográficamente separados; y recuerda que una misma población puede ser para un ornitólogo una subespecie y para otro una especie, una diferencia de opinión sobre las mismas pruebas, y que, en 2010, todos los autores coincidían en que la ciencia no gana nada discutiendo los matices subjetivos de esos límites (Jobling, 2010). Madge y McGowan añaden que la tendencia actual es reconocer más formas como especies (Madge y McGowan, 2002). Las dos listas de superespecies que dan Delacour y Johnsgard coinciden en casi todo.
| Grupo de especies | Delacour (1964) | Johnsgard (1986) |
|---|---|---|
| Lophura leucomelanos y L. nycthemera | Superespecie | Parientes más próximos: el kalij y el plateado (Delacour, 1977; Johnsgard, 1986) |
| Lophura imperialis, L. edwardsi y L. swinhoii | Superespecie | El imperial y el de Edwards apenas han alcanzado el nivel de especie (Delacour, 1977; Johnsgard, 1986) |
| Crossoptilon mantchuricum y C. auritum | Superespecie | Los tres orejudos forman una superespecie; el marrón y el azul, una alospecie (Delacour, 1977; Johnsgard, 1986) |
| Syrmaticus ellioti y S. humiae | Superespecie | Probablemente una superespecie (Delacour, 1977; Johnsgard, 1986) |
| Phasianus colchicus y P. versicolor | Superespecie | Alospecies, quizá solo subespecies (Delacour, 1977; Johnsgard, 1986) |
| Chrysolophus pictus y C. amherstiae | Superespecie | Superespecie (Delacour, 1977; Johnsgard, 1986) |
| Polyplectron germaini y P. bicalcaratum | Superespecie | Superespecie (Delacour, 1977; Johnsgard, 1986) |
| Polyplectron malacense y P. emphanum (Delacour); P. malacense y P. schleiermacheri (Johnsgard) | Superespecie con el faisán pavo de Palawan | Superespecie con el de Borneo (Delacour, 1977; Johnsgard, 1986) |
| Pavo cristatus y P. muticus | Superespecie | Superespecie evidente (Delacour, 1977; Johnsgard, 1986) |
| Tragopan: satyr, de Temminck y occidental / de Blyth y de Cabot | — | Dos grupos de especies dentro del género (Johnsgard, 1986) |
Delacour da las superespecies al final de su lista sistemática. En Polyplectron los dos autores forman pares distintos; el faisán de Borneo era subespecie del malayo para Delacour y especie para Johnsgard (Delacour, 1977; Johnsgard, 1986).
El faisán común y el verde
El caso que más veces ha cambiado de rango es el del par Phasianus colchicus y P. versicolor. Beebe (1922) reunió todas las formas continentales bajo colchicus y mantuvo el verde aparte como buena especie; Vaurie (1965), Delacour (1977), Madge y McGowan (2002) y el libro del autor lo tratan como especie; Johnsgard, como una alospecies que podría ser subespecie; Fuller y Garson (2000), como subespecie; y BirdLife lo reconoce como especie desde 2014, después de haberlo incluido en P. colchicus siguiendo a Sibley y Monroe (BirdLife, 2025; Delacour, 1977; Fichas de la web, 2026; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002). La ficha del faisán verde contiene la tabla completa por autor y fuente; y la del faisán común, la discusión de si el «común» oriental podría ser una especie distinta (BOW, 2022 (faisán común); Fichas de la web, 2026).
Dentro de una especie: la filogeografía del faisán común
El faisán común es la especie de faisán mejor estudiada con ADN, y sus resultados muestran hasta qué punto los grupos de subespecies basados en el plumaje de los machos pueden no coincidir con los genéticos. Los cinco grupos tradicionales que recoge Kayvanfar (colchicus, principalis–chrysomelas, tarimensis, mongolicus y torquatus) agrupan hasta 30 subespecies, definidas por la biogeografía y por rasgos del macho, como el tamaño, el dibujo del plumaje y la presencia o ausencia de collar blanco (Kayvanfar et al., 2017). El estudio de Kayvanfar y colaboradores (2017), con 85 individuos de 17 subespecies, dos genes mitocondriales y dos intrones nucleares, halló que la subespecie elegans, del noroeste de Yunnan, ocupa la posición basal, y que las subespecies del oeste de Eurasia quedan anidadas dentro del grupo torquatus, que por tanto no es un clado sino una gradación; concluyó que no existe concordancia entre la delimitación morfológica de las subespecies y sus relaciones genéticas (Kayvanfar et al., 2017).
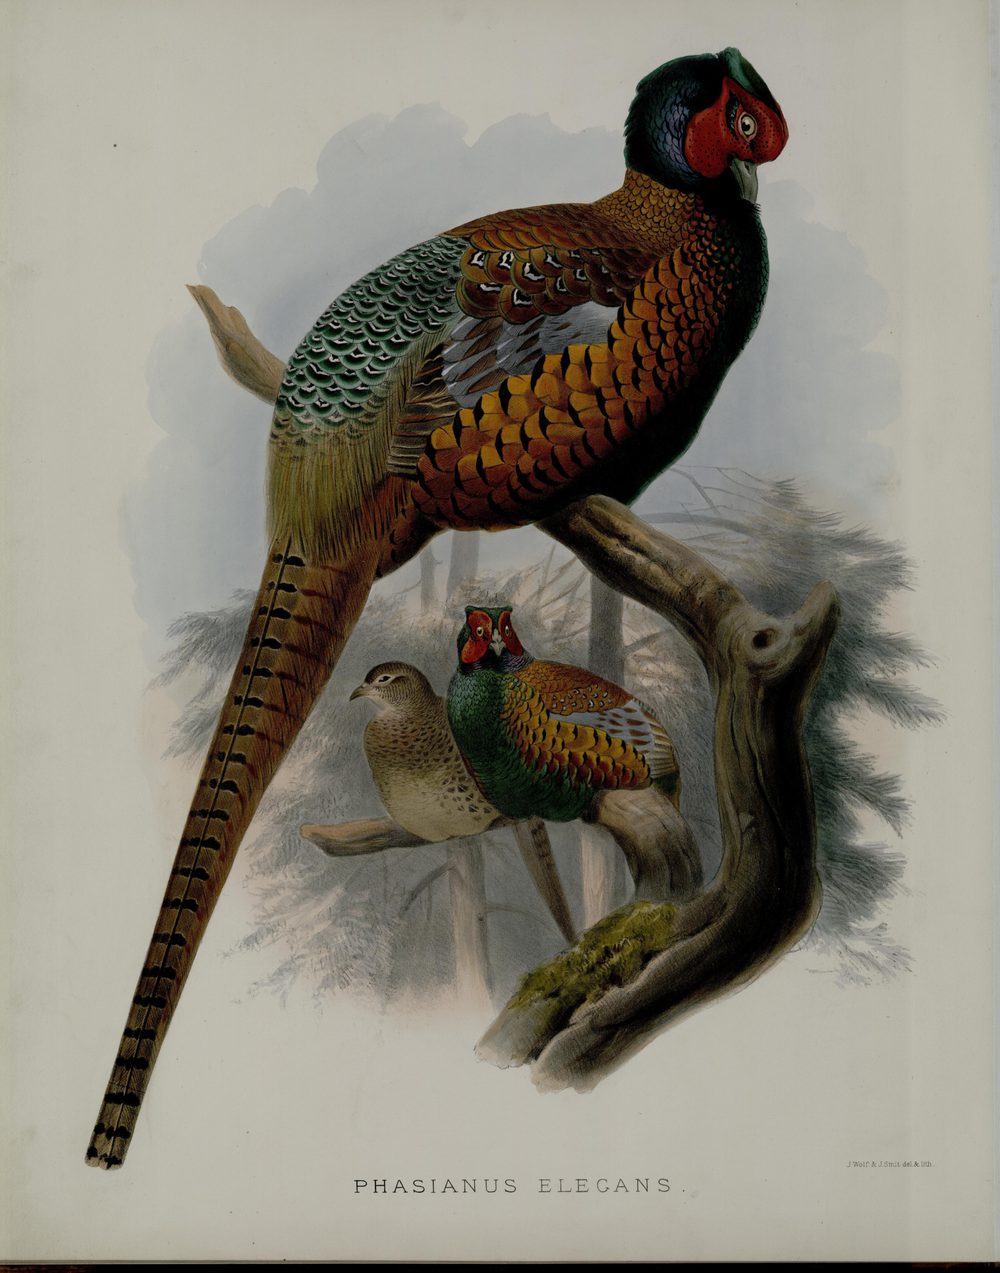
Elliot había descrito Phasianus elegans en 1870 como una especie válida, sin dudar de que no era un híbrido, porque vive en Yunnan, muy lejos de las especies a las que se parece (Elliot, 1872 (vol. I)). La genética le ha dado en parte la razón: sale como el taxón hermano de todos los demás, aunque con poco apoyo estadístico (Kayvanfar et al., 2017; Liu et al., 2020). Liu y colaboradores (2020), con 265 individuos, siete intrones y dos genes mitocondriales, encontraron ocho linajes que solo en parte corresponden a los grupos morfológicos, un origen de la especie en el borde de la meseta Qinghai–Tibet y una diversificación en el Pleistoceno tardío; propusieron dividir el faisán común en tres especies (el faisán de Yunnan, P. elegans; el chino, P. vlangalii; y el de Turkestán, P. colchicus), aunque se abstuvieron de dar rango de especie a los ocho linajes porque hallaron flujo genético entre ellos (Liu et al., 2020). Ashrafzadeh y colaboradores (2021) analizaron las poblaciones introducidas de Hungría y Serbia y hallaron que pertenecen a dos clados, B (grupo mongolicus, con torquatus y pallasi) y F (grupo colchicus), de acuerdo con la hipótesis de que el colchicus se introdujo en Europa mucho antes (hacia 500–800 d. C.) que el mongolicus y el torquatus (siglo XVIII) (Ashrafzadeh et al., 2021).
| Estudio | Muestra y marcadores | Resultado principal |
|---|---|---|
| Kayvanfar et al. (2017) | 85 individuos de 17 subespecies; 2 genes mitocondriales y 2 intrones nucleares (2.435 pares de bases) | elegans basal; el grupo torquatus no es un clado; primera divergencia hacia 3,4 millones de años; dispersión hacia el oeste hace 2,5–1,8 millones (Kayvanfar et al., 2017) |
| Liu et al. (2020) | 265 individuos; 7 intrones y 2 genes mitocondriales | Ocho linajes en el Pleistoceno tardío; origen en el borde de la meseta Qinghai–Tibet; propuesta de tres especies; flujo genético entre linajes (Liu et al., 2020) |
| Ashrafzadeh et al. (2021) | 69 aves de Hungría y Serbia; 825 pares de bases de la región control mitocondrial y microsatélites | Dos clados (B y F) en Europa centro-sudoriental; poca variación y expansión reciente; las sueltas de aves criadas no han creado otros linajes (Ashrafzadeh et al., 2021) |
Dos de los estudios (Kayvanfar, 2017, y Ashrafzadeh, 2021) se han leído completos; el de Liu y colaboradores, a través de las notas del preprint que usa la ficha del faisán común.
Otras decisiones de rango
La tabla reúne los casos en que el rango de una forma ha cambiado o sigue en discusión. Se indican las opciones que recogen las obras consultadas y, en la última columna, la que sigue el apéndice de la web, con la que el lector puede contrastar cada ficha.
| Forma | Opciones | En el apéndice de la web |
|---|---|---|
| Crossoptilon harmani (orejudo del Tíbet) | Subespecie de C. crossoptilon (Johnsgard, HBW); especie (Madge y McGowan); Fuller y Garson piden más estudios sobre el género, y mencionan también la forma dolani (del Hoyo et al., 1994; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002) | Especie, con una nota que recuerda que algunos autores la incluyen en C. crossoptilon (Apéndice de la web, 2026) |
| Polyplectron schleiermacheri (de Borneo) | Especie (Beebe, Johnsgard, Madge); subespecie de P. malacense (Delacour); el HBW dice que una investigación reciente sugiere especie distinta (Beebe, 1918; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002) | Especie, con nota (Apéndice de la web, 2026) |
| Polyplectron katsumatae (de Hainan) | Forma de Hainan de P. bicalcaratum, que algunos autores listan como especie (Fuller y Garson); especie numerada en Madge y McGowan (Fuller y Garson, 2000; Madge y McGowan, 2002) | Especie (Apéndice de la web, 2026) |
| Polyplectron emphanum / napoleonis | Jobling anota emphanum Temminck, 1831, como sinónimo de P. napoleonis; Delacour y Madge usan emphanum (Delacour, 1977; Jobling, 2010; Madge y McGowan, 2002) | Polyplectron napoleonis (Apéndice de la web, 2026) |
| Argusianus bipunctatus | Especie (Delacour, Madge y McGowan); subespecie (Johnsgard); la pluma única en el Museo Británico no basta para decidirlo (HBW) (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) | Una especie; el apéndice cuenta tres subespecies para el género, entre ellas bipunctatus (Apéndice de la web, 2026; Fichas de la web, 2026) |
| Lophura edwardsi, el faisán vietnamita y L. imperialis | Edwards, vietnamita (hatinhensis) e imperial como especies para algunos autores (Sibley y Monroe, 1990; Collar y colaboradores, 1994); ADN con diferencias de subespecie (Hennache y colaboradores, 1998); imperial como posible híbrido salvaje (Rasmussen, 1998) (del Hoyo et al., 1994; Fuller y Garson, 2000) | Edwards y vietnamita reunidos en una sola especie desde 2012; imperial no evaluada (híbrido natural) (Apéndice de la web, 2026) |
| Lophura inornata (Salvadori) y la forma hoogerwerfi | Especie para la mayoría de los autores; hoogerwerfi, del norte de Sumatra, se ha tratado a veces como especie, y el HBW no encuentra razones para ello (del Hoyo et al., 1994; Madge y McGowan, 2002) | Una especie (Apéndice de la web, 2026) |
| Lophura rufa y L. pyronota (firebacks) | Subespecies de L. ignita y L. erythrophthalma (Fuller y Garson, 2000; Johnsgard, 1986) | Especies separadas en 2014 (Apéndice de la web, 2026) |
| Rheinardia nigrescens (argus crestado malayo) | Subespecie de R. ocellata para la mayoría de los autores desde Delacour; especie para Beebe y desde 2020 (Davison y colaboradores) (Beebe, 1918; BOW, 2021 (argus crestado); Davison et al., 2020; Delacour, 1977) | Una sola especie, con la nota de la ficha (Apéndice de la web, 2026; Fichas de la web, 2026) |
| Pavo muticus (pavo verde) | Tres subespecies (BOW, BirdLife); propuesta no publicada de seis especies; al menos tres grupos genéticos (Patil y Vijay, 2023) (Fichas de la web, 2026; Patil y Vijay, 2023) | Una especie, con nota (Apéndice de la web, 2026) |
La tabla se limita a los casos que documentan las obras consultadas y las fichas de la web.
Dos de esos casos tienen historia reciente. El primero es el del faisán vietnamita: el plan de acción de Fuller y Garson (2000) señalaba que su validez como especie carecía de pruebas persuasivas, que el ADN mitocondrial de las tres formas vietnamitas solo difería en lo que suele bastar para distinguir subespecies y que el imperial podría ser un híbrido; el apéndice de la web da hoy la fusión de Edwards y vietnamita como hecho de 2012 (Apéndice de la web, 2026; Fuller y Garson, 2000). El segundo es el del argus crestado, que durante más de un siglo fue una sola especie con dos subespecies y que, desde 2020, Birds of the World y BirdLife tratan como dos especies, la de Indochina (Rheinardia ocellata) y la malaya (R. nigrescens), por diferencias morfológicas y de voz; la ficha del argus de Rheinard explica los dos tratamientos (BOW, 2021 (argus crestado); Davison et al., 2020; Fichas de la web, 2026).
- Sibley y Monroe reúnen faisanes y perdices del Viejo Mundo en una familia; su lista sirve de base al plan de acción de la UICN de 2000 (Fuller y Garson, 2000).
- Rasmussen propone que el faisán imperial es un híbrido; Hennache y colaboradores comparan el ADN mitocondrial de las formas vietnamitas; Kimball y colaboradores publican la filogenia molecular de faisanes y perdices (Fuller y Garson, 2000).
- Edwards y vietnamita se reconocen como una sola especie (Apéndice de la web, 2026).
- Se separan Lophura rufa de L. ignita y L. pyronota de L. erythrophthalma; BirdLife reconoce desde esa fecha al faisán verde como especie (Apéndice de la web, 2026; BirdLife, 2025).
- Davison y colaboradores proponen dar rango de especie a Rheinardia nigrescens; se publica el primer borrador del genoma del faisán ensangrentado (Davison et al., 2020; Zhou et al., 2020).
- BOW y BirdLife publican las fichas de las dos especies de argus crestado; Zou y colaboradores identifican una población genéticamente distinta de tragopán de Blyth (BOW, 2021 (argus crestado); Zou et al., 2021).
- Los estudios genómicos de pavos reales (Patil y Vijay, 2023; Wang y colaboradores, 2025) muestran estructura entre poblaciones del pavo verde y flujo genético con el azul en zoológicos (Patil y Vijay, 2023; Wang et al., 2025).
Cómo leer un nombre científico: autoría, etimología y cambios
Qué dicen las partes de un nombre, de dónde vienen los de los dieciséis géneros, por qué se escriben de varias formas y cuándo y por qué cambian.
Un nombre científico es una pequeña ficha técnica: dice a qué género se asigna una especie, quién la describió y cuándo. Saber leerlo ayuda a seguir la historia de la clasificación, porque los cambios de género, las enmiendas ortográficas y las discusiones de prioridad dejan huella en la escritura del nombre.
Las partes del nombre
Según Jobling, el nombre científico completo de una especie de ave tiene cuatro partes. Las dos primeras forman el binomen: el género, con mayúscula inicial, y el epíteto específico, con minúscula, que solo tiene sentido junto al género y puede repetirse en géneros distintos; las otras dos, el autor y el año, indican quién publicó el nombre por primera vez de forma válida y cuándo (Jobling, 2010). El autor se escribe entre paréntesis cuando la clasificación actual asigna la especie a un género distinto del que le dio su autor original (Jobling, 2010). El faisán común, Phasianus colchicus Linnaeus, 1758, conserva el género con que Linneo lo describió y por eso no lleva paréntesis; el faisán dorado, Chrysolophus pictus (Linnaeus, 1758), sí, porque Linneo lo describió como Phasianus pictus; y lo mismo vale para el gallo rojo, descrito como Phasianus gallus (hoy Gallus gallus), y para el tragopán satyr, descrito como Meleagris satyra (Beebe, 1918; Delacour, 1977; Jobling, 2010).
Las subespecies llevan un tercer nombre, y el conjunto se llama trinomen. La subespecie que repite el epíteto de la especie, como Phasianus colchicus colchicus, es la nominal, que no se distingue por ser la «típica» ni la original, sino por haberse descrito con el nombre al que se aplicó primero el epíteto (Jobling, 2010). Beebe lo expresó con insistencia: «colchicus colchicus» solo indica la adopción del nombre prioritario de Linneo, y no dice nada sobre la ascendencia ni los caracteres típicos de la especie (Fichas de la web, 2026).
Prioridad, homonimia y conservación de nombres
Tres principios rigen la elección entre nombres rivales (Jobling, 2010). El de prioridad dice que vale el nombre más antiguo aplicado correctamente a un taxón, y que la fecha de partida es el 1 de enero de 1758, la de la décima edición del Systema Naturae; cuando dos géneros se funden, queda el más antiguo, y cuando uno se divide, el nombre antiguo se queda con el tipo. El de conservación de nombres bien establecidos protege del retorno de sinónimos antiguos olvidados. El de homonimia exige que un nombre de género se use una sola vez en todo el reino animal; si un nombre ya estaba ocupado, el posterior debe sustituirse (Jobling, 2010). Jobling añade que antes de 1901 los británicos seguían tomando como punto de partida la edición de 1766, y que el primer código internacional se publicó en 1905 (Jobling, 2010).
Los faisanes ofrecen varios casos de manual. El del tragopán lo cuenta Beebe: Linneo aplicó a la especie el género Meleagris; más de sesenta años después Lesson propuso Satyra, adecuado por su significado pero ya empleado por los entomólogos y por tanto no disponible; Cuvier usó Tragopan en 1829, y Swainson Ceriornis en 1837; Beebe adoptó Tragopan por prioridad, con la esperanza de contribuir a la estabilidad (Beebe, 1918). En el caso de los dorados, Thaumalea (Wagler, 1832) es anterior a Chrysolophus (Gray, 1834), pero la ficha del faisán dorado lo recoge como «nombre preocupado», y Elliot, que sabía que el nombre se había empleado en entomología, opinaba que eso no obligaba a rechazarlo (Elliot, 1872 (vol. I); Fichas de la web, 2026). Jobling anota hoy Thaumalea como sinónimo de Chrysolophus (Jobling, 2010).
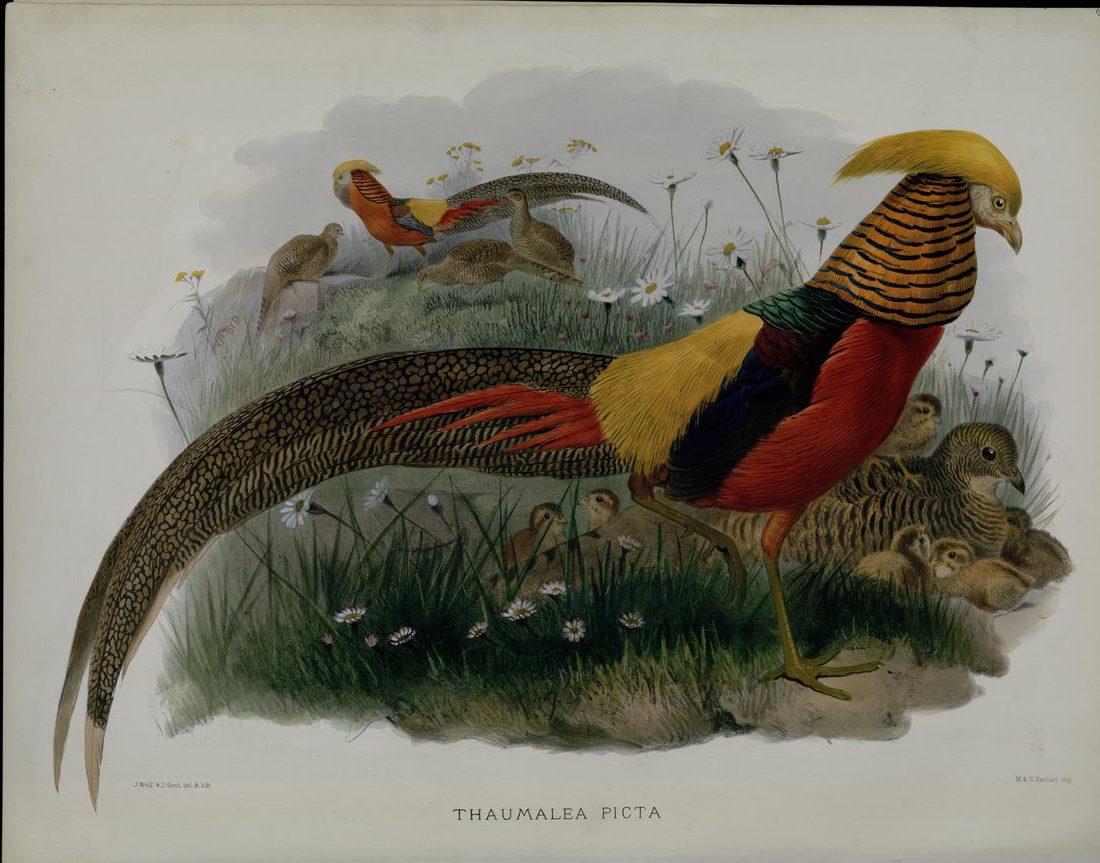
El rótulo de esta lámina, Thaumalea picta, es el nombre que daba al faisán dorado la literatura de 1872; la ficha del faisán dorado reúne su sinonimia completa. Un último detalle: el nombre de Hodgson para el género, de 1844, aparece como Epomia en Jobling y en Elliot, pero como Epornia en la sinonimia de Beebe que sigue la ficha, una diferencia que parece de impresión (Elliot, 1872 (vol. I); Fichas de la web, 2026; Jobling, 2010).
Ortografía: lo que cambia sin que cambie el ave
No todos los cambios de nombre son decisiones de clasificación. Una parte de las variantes que se encuentran en la literatura son simples cuestiones de escritura: enmiendas del nombre de un género, formas distintas del genitivo de un epónimo y concordancia de género gramatical. Jobling explica que el epíteto adjetivo debe concordar en género con el del género al que se asigna, de modo que, si una especie pasa de un género masculino a uno femenino, la terminación cambia, y que las formas del genitivo en -i y en -ii para una misma persona conviven, según las épocas, en toda la ornitología (Jobling, 2010).
| Nombre | Variantes y quién las usa | Comentario |
|---|---|---|
| Rheinardia | Rheinardia (Maingounat o Maingonnat, 1882); Rheinartia (enmienda de Delacour, que siguió Howman); Rheinardius, Rheinartius, Rheinhardius... (Jobling anota seis variantes) (Fichas de la web, 2026; Howman, 1996; Jobling, 2010) | El nombre honra a Pierre-Paul Rheinart (1840–1902) (Jobling, 2010) |
| Ithaginis | Ithaginis (Wagler, 1832) en Delacour, Johnsgard, Madge y la UICN; Ithagenes (enmienda de Agassiz) en Beebe (Beebe, 1918; Fichas de la web, 2026) | Una misma palabra griega transcrita de dos formas |
| Catreus wallichii | wallichii (Jobling, Madge, BOW, el apéndice); wallichi (Delacour, Johnsgard, Howman, Gerrits, Roles, Fuller) (Fichas de la web, 2026) | Dos íes o una: la grafía original de Hardwicke, la de dos íes (Fichas de la web, 2026) |
| Lophophorus impejanus | impejanus (Latham, 1790; Jobling, Madge, el apéndice); impeyanus (Delacour y Elliot, con mayúscula) (Delacour, 1977; Elliot, 1872 (vol. I); Jobling, 2010; Madge y McGowan, 2002) | Honra a Lady Mary Impey (Jobling, 2010) |
| Tragopan blythii | blythii (Jerdon, 1870; el apéndice); blythi (Beebe, Delacour, Johnsgard) (Fichas de la web, 2026) | Genitivo en -ii o en -i |
| Gallus sonneratii | sonneratii (Jobling, el apéndice); sonnerati (Delacour) (Delacour, 1977; Jobling, 2010) | Honra a Pierre Sonnerat (Jobling, 2010) |
| Lophura leucomelanos | leucomelanos (Madge, el apéndice); leucomelana (Delacour) (Delacour, 1977; Madge y McGowan, 2002) | Forma masculina y forma femenina del epíteto |
| Tragopan melanocephalus | melanocephalus (el apéndice); melanocephala (Madge) (Apéndice de la web, 2026; Madge y McGowan, 2002) | Concordancia de género del epíteto |
Se recoge cada forma tal como aparece en cada fuente; la mayoría se pueden consultar en las fichas de las especies.
Fechas y autorías que no coinciden
Hay también diferencias de fecha o de autor que no son de ortografía. El apéndice de la web y las fichas señalan varias (Apéndice de la web, 2026; Fichas de la web, 2026):
- Ithaginis cruentus
- Hardwicke lo describió en 1821 según la ficha original, BOW y Howman, y en 1822 según Beebe, Delacour y Johnsgard, que citan el volumen 13 de las Transactions de la Sociedad Linneana; el apéndice da hoy 1822 (Apéndice de la web, 2026; Fichas de la web, 2026).
- Gallus (el género)
- Brisson, 1760 según Johnsgard, 1766 según el libro del autor; Jobling cita las dos fechas en entradas distintas; el apéndice usa 1766 (Apéndice de la web, 2026; Jobling, 2010; Johnsgard, 1986).
- Gallus varius
- Linnaeus, 1758 en el apéndice; Shaw y Nodder, 1798, para Beebe, Delacour, Johnsgard, Howman, Madge y BOW (Apéndice de la web, 2026).
- Géneros de Temminck
- Elliot data Lophophorus, Polyplectron y Argus de Temminck en 1815; Johnsgard y el apéndice dan 1813 para Lophophorus y Polyplectron (Apéndice de la web, 2026; Elliot, 1872 (vol. I); Johnsgard, 1986).
- Especies de Linneo
- Elliot y Beebe citan las especies de Linneo en la edición de 1766; la fecha aceptada hoy es 1758 (Beebe, 1918; Elliot, 1872 (vol. I); Jobling, 2010).
Los géneros actuales: autor, etimología y sinónimos
Jobling dedica entradas a casi todos los nombres de los géneros. La tabla las resume: el autor y el año son los del apéndice de la web, y los sinónimos antiguos son los que aparecen en Jobling, Elliot y Beebe (Apéndice de la web, 2026; Beebe, 1918; Elliot, 1872 (vol. I); Jobling, 2010).
| Género | Autor y año | Etimología (Jobling) | Sinónimos antiguos |
|---|---|---|---|
| Ithaginis | Wagler, 1832 | Del griego ithagenes, «de nacimiento legítimo», «noble» | Ithagenes (Fichas de la web, 2026; Jobling, 2010) |
| Tragopan | Cuvier, 1829 | Del latín tragopan, un ave mítica con cuernos y cabeza púrpura que mencionan Plinio y Pomponio Mela | Satyra, Ceriornis (Beebe, 1918; Jobling, 2010) |
| Pucrasia | G. R. Gray, 1841 | De Phasianus pucrasia J. Gray, 1832, nombre garhwali del koklass, pukras | Gallophasis (en parte), Lophotetrax (Jobling, 2010) |
| Lophophorus | Temminck, 1813 | Del griego lophos, «cresta», y -phoros, «que lleva» | Chalcophasis (subgénero de Elliot) (Elliot, 1872 (vol. I); Jobling, 2010) |
| Gallus | Brisson, 1766 (1760 para otros) | De Phasianus gallus Linnaeus, 1758; gallus es el gallo de corral | — |
| Crossoptilon | Hodgson, 1838 | Del griego krossoi, «fleco», y ptilon, «pluma» | — |
| Lophura | J. Fleming, 1822 | Del griego lophos, «cresta», y oura, «cola» | Euplocamus, Gennaeus, Hierophasis, Acomus, Diardigallus, Houppifer, Lobiophasis, Alectrophasis, Gallophasis y otros (Delacour, 1977; Jobling, 2010) |
| Catreus | Cabanis, 1851 | Del griego katreus, un ave que cita Eliano, probablemente mítica | Lophophasianus (Jobling, 2010) |
| Syrmaticus | Wagler, 1832 | Del griego surma, surmatos, «túnica con larga cola» | Graphephasianus, Calophasis (Jobling, 2010) |
| Phasianus | Linnaeus, 1758 | Del latín y el griego «faisán», aves «del río Fasis», en la Cólquida | — |
| Chrysolophus | J. E. Gray, 1834 | Del griego khrusolophos, «de cresta dorada» | Thaumalea («prodigio»), Epomia (Jobling, 2010) |
| Polyplectron | Temminck, 1813 | Del griego polus, «muchos», y plektron, «espolón de gallo» | Chalcurus (Jobling, 2010) |
| Rheinardia | Maingounat, 1882 | Del coronel Pierre-Paul Rheinart (1840–1902), oficial y administrador francés en Annam | Argus ocellatus (Elliot) (Elliot, 1872 (vol. I); Jobling, 2010) |
| Argusianus | Rafinesque, 1815 | De Phasianus argus Linnaeus, 1766; Argos, el guardián de cien ojos de la mitología griega, cuyos ojos pasaron a la cola del pavo real | Argus (Jobling, 2010) |
| Pavo | Linnaeus, 1758 | Latín pavo, «pavo real» | — |
| Afropavo | Chapin, 1936 | Latín Afer, «africano», y pavo | — |
Jobling anota los nombres con su origen y su sentido; el apéndice, la autoría y el año.
A quién honran los nombres
Una parte de los epítetos son epónimos, nombres de personas, y la historia del grupo está en ellos. Jobling da los datos que resume la tabla (Jobling, 2010).
| Epíteto | Persona o título que honra (Jobling) | Especie |
|---|---|---|
| impejanus | Lady Mary Impey (1749–1818), esposa del presidente del tribunal supremo de Bengala y coleccionista de pinturas de aves, que tuvo monales en cautividad | Monal del Himalaya |
| wallichii | Nathaniel Wallich (1786–1854), cirujano y botánico danés, superintendente de los jardines botánicos de Calcuta | Faisán Wallich |
| amherstiae | Sarah, condesa Amherst (1762–1838), primera esposa del gobernador general de Bengala (1823–1828) | Faisán de Lady Amherst |
| humiae | Mary Ann Grindall Hume (fallecida en 1890), esposa del ornitólogo Allan Octavian Hume | Faisán de Hume |
| reevesii | John Reeves (1774–1856), inspector del té de la Compañía de las Indias Orientales en China | Faisán venerado |
| ellioti | Daniel Giraud Elliot (1835–1915), ornitólogo estadounidense (en Syrmaticus) | Faisán de Elliot |
| temminckii | Coenraad Jacob Temminck (1778–1858), ornitólogo holandés | Tragopán de Temminck |
| caboti | Samuel Cabot (1815–1885), médico y conservador de ornitología de la Sociedad de Historia Natural de Boston | Tragopán de Cabot |
| blythii | Edward Blyth (1810–1873), zoólogo inglés, conservador del museo de la Sociedad Asiática de Bengala | Tragopán de Blyth |
| swinhoii | Robert Swinhoe (1836–1877), diplomático y naturalista británico en China | Faisán de Swinhoe |
| bulweri | Sir Henry Ernest Gascoyne Bulwer (1836–1914), gobernador de Labuan y cónsul general en Borneo | Faisán de Bulwer |
| germaini | Louis Rodolphe Germain (nacido en 1827), veterinario militar francés en Indochina | Faisán pavo de Germain |
| harmani | Capitán H. J. Harman (1850–1881), ingeniero y topógrafo del ejército británico en la India y Sikkim | Orejudo del Tíbet |
| mikado | El emperador Meiji (Mutsuhito, 1852–1912) en la forma Syrmaticus mikado; mikado significa «augusta puerta», un título del emperador | Faisán mikado |
| imperialis | El emperador Khai Dinh (1885–1925) de Annam | Faisán imperial |
Jobling aplica la regla de que los nombres de mujer reciben el genitivo en -ae (amherstiae, humiae) y los de hombre, en -i o en -ii (Jobling, 2010).
Un nombre hecho de plumas: el argus crestado
El argus crestado resume bien por qué los nombres cambian. Verreaux examinó en París unas plumas de cola de origen desconocido y, hacia 1856, Bonaparte publicó su nombre sin descripción; Elliot las describió en 1871 como Argus ocellatus, en una lámina que muestra solo plumas; el género Rheinardia se creó en 1882, y se han usado después media docena de grafías (Fichas de la web, 2026; Jobling, 2010).
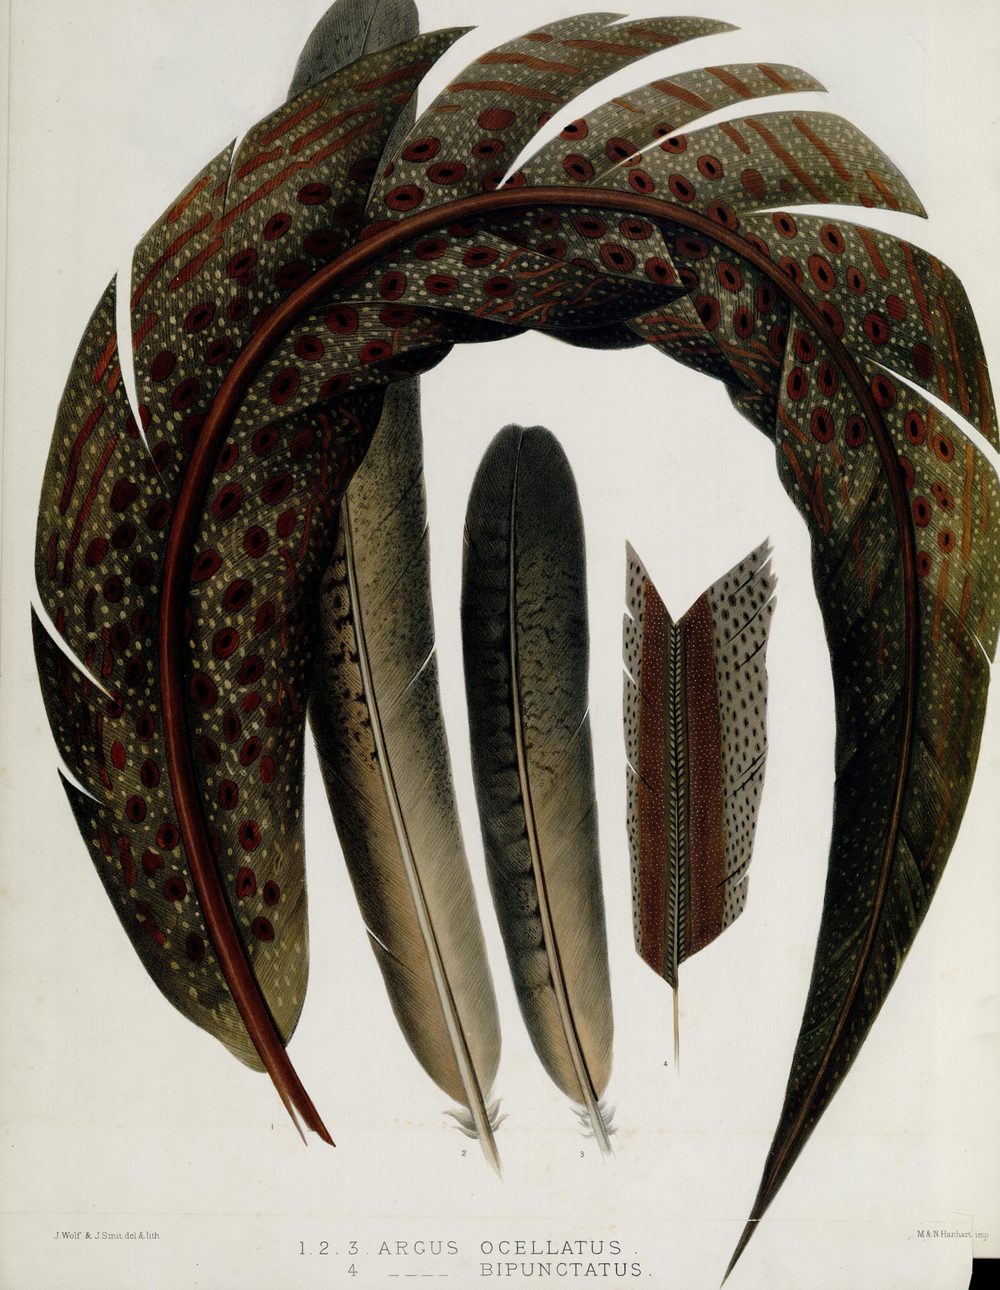
La lámina de Elliot muestra a la vez las plumas del argus crestado (figuras 1 a 3) y la única pluma conocida del bipunctatus del gran argus, que aún hoy se discute si es especie, subespecie o una forma aberrante (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986).
Cuándo y por qué cambian los nombres
- Porque cambia la clasificación
- Un género se divide o se reúne: en 1949 Delacour reunió en Lophura géneros como Gennaeus, Hierophasis, Houppifer, Diardigallus y Lobiophasis, y los kalij, plateados y firebacks dejaron de llevar esos nombres (Delacour, 1977).
- Porque se descubre un error
- Un híbrido o una hembra se habían descrito como especie nueva (los ejemplos de Elliot: Lophophorus cuvieri, Phasianus gardneri) y el nombre pasa a sinónimo (Elliot, 1872 (vol. I)).
- Porque rige la prioridad o la homonimia
- Un nombre más antiguo o ya ocupado obliga a sustituir otro (Satyra y Tragopan; Thaumalea y Chrysolophus) (Beebe, 1918; Jobling, 2010).
- Porque cambia el rango de una forma
- Una subespecie sube a especie o al revés: el faisán verde, el argus crestado malayo o los firebacks de 2014 (Apéndice de la web, 2026; BirdLife, 2025; Davison et al., 2020).
- Porque cambia el criterio de especie
- Madge y McGowan señalan que hoy se tiende a reconocer más formas como especies; Fuller y Garson sitúan en las nuevas ideas (unidades evolutivamente significativas, análisis de ADN) la necesidad de reevaluar la taxonomía de los faisanes (Fuller y Garson, 2000; Madge y McGowan, 2002).
- Porque se corrige una grafía o una fecha
- Enmiendas de la ortografía, formas distintas del genitivo y fechas de la publicación: son cambios de escritura y no de clasificación (Apéndice de la web, 2026; Jobling, 2010).
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- Ashrafzadeh, M. R., Khosravi, R., Fernandes, C., Aguayo, C., Bagi, Z., Lavadinović, V. M., Szendrei, L., Beuković, D., Mihalik, B. y Kusza, S. (2021). Assessing the origin, genetic structure and demographic history of the common pheasant (Phasianus colchicus) in the introduced European range. Scientific Reports, 11: 21721. doi:10.1038/s41598-021-00567-1.
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- BirdLife International (2025). Species factsheet: Green Pheasant Phasianus versicolor. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2025). Se cita a través de la ficha del faisán verde de esta web, que consultó la página.
- Davison, G. W. H., Boesman, P., Collar, N. J. y Puan, C. L. (2020). Species rank for Rheinardia ocellata nigrescens (Phasianidae). Bulletin of the British Ornithologists’ Club, 140: 182–194. doi:10.25226/bboc.v140i2.2020.a9. Se cita a través de la ficha del faisán argus de Rheinard de esta web.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vol. I. Nueva York: edición del autor (ejemplar digitalizado de la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas, por lo que se han contrastado las cifras y los nombres en la introducción y en la lista de especies).
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Giudice, J. H., Ratti, J. T. y Mlodinow, S. G. (2022). Ring-necked Pheasant (Phasianus colchicus), versión 1.1. En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe1. Se cita a través de la ficha del faisán común de esta web, que consultó la página.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2026). Fichas monográficas de especie de Faisanes del Mundo (en especial las del faisán común, el verde, el dorado, el de Lady Amherst, el Wallich, el argus de Rheinard, el gran argus, el ensangrentado, los tragopanes y los monales), cada una con sus fuentes. Fundación Zoo Koki, faisanesdelmundo.com. Se citan cuando el dato procede de una ficha y no se ha podido contrastar con la fuente que ella recoge.
- Hernández García, I. (2026). Taxonomía de los faisanes del mundo (Phasianidae: Phasianinae). Faisanes del Mundo, Fundación Zoo Koki (revisión del 21 de octubre de 2026). faisanesdelmundo.com/apendice.htm (y archivo taxonomia.csv del sitio).
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Kayvanfar, N., Aliabadian, M., Niu, X., Zhang, Z. y Liu, Y. (2017). Phylogeography of the Common Pheasant Phasianus colchicus. Ibis, 159: 430–442 (publicado en línea en 2016; doi:10.1111/ibi.12455). Se ha leído el artículo completo (PDF de la sección de documentos de esta web).
- Kirwan, G. M., McGowan, P. J. K. y Boesman, P. F. D. (2021). Vietnamese Crested Argus (Rheinardia ocellata), versión 1.1. En Birds of the World (G. M. Kirwan, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/crearg1. Se cita a través de la ficha del faisán argus de Rheinard de esta web, que consultó la página.
- Limparungpatthanakij, W. L. y Pyle, P. (2022). Green Pheasant (Phasianus versicolor), versión 1.0. En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe2. Se cita a través de la ficha del faisán verde de esta web, que consultó la página.
- Liu, S., Liu, Y., Jelen, E., Aliabadian, M., Yao, C.-T., Li, X., Kayvanfar, N., Wang, Y., Vahidi, F., Han, J., Sundev, G., Zhang, Z. y Schweizer, M. (2020). Regional drivers of diversification in the late Quaternary in a widely distributed generalist species, the common pheasant Phasianus colchicus. Journal of Biogeography, 47 (12): 2714–2727. doi:10.1111/jbi.13964. Los datos proceden de las notas de lectura de la versión preprint de bioRxiv (23 de diciembre de 2019, sin revisión por pares), la misma que usa la ficha del faisán común de esta web.
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Patil, A. B. y Vijay, N. (2023). Conservation implications of diverse demographic histories: the case study of green peafowl (Pavo muticus, Linnaeus 1766). bioRxiv (preprint no revisado por pares; resumen). doi:10.1101/2023.07.21.549982. Se cita a través de la ficha del pavo real verde de esta web.
- Sathyakumar, S. y Sivakumar, K. (eds.) (2007). Galliformes of India. ENVIS Bulletin: Wildlife and Protected Areas, vol. 10 (1). Dehradun: Wildlife Institute of India (capítulo sobre los tragopanes, que recoge la filogenia de Kimball et al., 1999, y los trabajos de Randi et al., 2000, de Dyke et al., 2003 y de Fuller, 2000).
- Wang, G. et al. (2025). Genomic evidence for hybridization and introgression between blue peafowl and endangered green peafowl and molecular foundation of leucistic plumage of blue peafowl. GigaScience, 14: giae124 (resumen). doi:10.1093/gigascience/giae124. Se cita a través de la ficha del pavo real azul de esta web.
- Yang Lan (杨岚) et al. (1992). 中国雉类 白腹锦鸡 [The Chinese Phasianids: Lady Amherst’s Pheasant]. Pekín: China Forestry Publishing House. Libro en chino con resumen en inglés; se cita solo a través de lo que recogen las fichas del faisán dorado y del faisán de Lady Amherst de esta web (datos de ADN mitocondrial).
- Zhou, Y. y colaboradores (2020). The draft genome of the blood pheasant (Ithaginis cruentus): phylogeny and high-altitude adaptation. PubMed Central, PMC7593199. Se cita a través de la ficha del faisán ensangrentado de esta web.
- Zou, J., Dong, L., Davison, G., Hlaing, W., Aung, M. M., Zhang, Y., Zhang, Z., Wang, N. y Chen, D. (2021). Identifying a new phylogeographic population of the Blyth’s tragopan (Tragopan blythii) through multi-locus analyses. Zoological Studies, 60: e40. PubMed Central, PMC8662318. Se cita a través de la ficha del tragopán de Blyth de esta web.
Cómo citar este capítulo: Hernández García, I. (2026). Parentesco y evolución sistemática de los faisanes. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/sistematica.php.