Qué es la hibridación y por qué importa en los faisanes
Tres circunstancias distintas, cuatro motivos de interés y una constatación: los faisanes se cruzan más de lo que sus listas de especies sugieren.
Un híbrido es la cría de dos aves de especies distintas. En los faisanes esos cruces interesan por cuatro razones: porque su fertilidad es un indicio del parentesco entre las especies, porque ayudan a decidir dónde termina una especie y empieza otra, porque en las zonas donde dos formas se encuentran en libertad dicen algo del aislamiento que las separa y porque, en cautividad, un cruce accidental puede estropear en una generación una línea que costó décadas formar.
Johnsgard abre su capítulo sobre el tema distinguiendo cómo se han producido los híbridos de faisán. En unos pocos casos han surgido en condiciones naturales, entre especies que coinciden en una zona, como el kalij y el faisán plateado. En la mayoría han sido «accidentes» de cautividad, sobre todo cuando faltaba una pareja de la propia especie. Y solo en contadas ocasiones se han planeado como experimento científico, para obtener datos genéticos, morfológicos o bioquímicos; algunos de esos estudios, advierte, interesan poco al ornitólogo general, porque comparan la hemoglobina, las transferrinas o el suero de sangre de los híbridos (Johnsgard, 1986). La literatura sobre el asunto es enorme y la resumió Gray (1958); Johnsgard la usa como base y la completa con Delacour (1977) y con Rutgers y Norris (1970), y descarta algunos supuestos híbridos que nunca se han documentado o que resultan inverosímiles, como el de gallina doméstica y ave lira (Johnsgard, 1986).
- 93cruces entre especies de faisanes registrados hasta 1982 según Johnsgard (1986)
- 8,0 %de las combinaciones posibles entre las 49 especies del grupo
- 36 de 49especies implicadas en algún cruce
- 43 %de esos cruces, con fertilidad al menos ocasional
- 3casos de hibridación natural, seguros o posibles, que Johnsgard conocía en 1986
Cuatro razones para ocuparse de los híbridos
- Parentesco
- Delacour sostenía que la esterilidad, la semifertilidad o la fertilidad completa de los híbridos indica afinidades más laxas o más estrechas, y recordaba que Ghigi y Yamashina habían demostrado su utilidad en numerosos estudios. Pero rechazaba la propuesta de ambos de definir géneros, especies y subespecies solo por el grado de fertilidad de sus híbridos: le parecía tan poco aceptable como cualquier sistema basado en un único carácter, y pedía sopesar todos los rasgos a la vez (Delacour, 1977). Cómo se ha usado ese criterio en la clasificación se cuenta en el capítulo de parentesco y evolución sistemática.
- Límite de especie
- Cuando dos formas se cruzan y dan descendencia fértil, sus autores discuten si son especies o subespecies; los casos del faisán imperial, de los orejudos, del kalij y el plateado, del dorado y el Lady Amherst o de los faisanes comunes se tratan más abajo.
- Aislamiento
- Lo que impide que dos especies que podrían cruzarse lo hagan en libertad es una suma de barreras: la geográfica, la de hábitat o altitud, la de plumaje y conducta y, cuando se pasan todas, la menor fertilidad o viabilidad de los híbridos. Morejohn lo resumió para los gallos silvestres: el aislamiento geográfico se refuerza con diferencias de plumaje, de comportamiento y de genes que reducen la fertilidad y la viabilidad de los híbridos (Johnsgard, 1986).
- Conservación
- En cautividad, un cruce entre especies o entre líneas distintas inutiliza al ave como reproductor de su especie. Ese es el motivo por el que los planes de conservación piden purgar de los libros genealógicos las líneas híbridas (Fuller y Garson, 2000) (véase el apartado sobre conservación).
Lo que hace posible el cruce, y lo que lo frena
Los cruces entre faisanes no son una rareza de la cautividad. Elliot (1872) escribe, a propósito del kalij, que dos formas que se encuentran en el noroeste del Himalaya, hasta Nepal, producen híbridos con frecuencia y que esos híbridos se habían descrito como especies nuevas, y en otro lugar afirma que todas las aves gallináceas son muy propensas a hibridar incluso en libertad (véase también la historia de la clasificación) (Elliot, 1872 (vol. II)). Johnsgard supone que los sistemas de apareamiento poco selectivos de la mayoría de los urogallos, de los faisanes y del gallo doméstico han favorecido la alta incidencia de cruces entre grupos distintos, aunque ningún híbrido de urogallo y faisán ha resultado fértil (Johnsgard, 1986).
Hay, en cambio, barreras que operan incluso entre especies muy próximas. Para los monales, Davison propuso que la franja blanca de la cola, más ancha en las poblaciones occidentales del monal de Sclater, y el tono más fulvo de su vientre podrían funcionar como señales de aislamiento visual frente al monal del Himalaya, con el que esas poblaciones están más expuestas a cruzarse (Johnsgard, 1986). En el dorado y el Lady Amherst, los autores chinos que recogen las fichas de la web piensan que el aislamiento depende sobre todo de la altitud y del hábitat, no de una barrera genética (Fichas de la web, 2026; Yang et al., 1992).
Fertilidad de los híbridos: lo que muestran las cifras
De los 49 faisanes, 36 se han cruzado con otro; la fertilidad completa casi solo aparece dentro de un mismo género.
Para ordenar los cruces entre faisanes hay que separar tres niveles: los de faisanes con otros galliformes (los menos fiables), los de faisanes de géneros distintos y los de especies del mismo género. Cuanto más cerca están las especies, más fértiles suelen ser sus híbridos; ese gradiente, que ya señalaba Delacour, lo cuantificó Johnsgard en 1986.
Faisanes con otros galliformes: casi todo dudoso
Johnsgard dedica un apartado a los cruces entre faisanes y aves de otras tribus o familias, y su balance es escéptico. Entre faisanes y perdices del Viejo Mundo, que pertenecen a la misma subfamilia en casi todas las clasificaciones, Gray solo recoge tres combinaciones, todas presuntas (gallo doméstico con la perdiz griega y con la perdiz pardilla, y faisán común con la perdiz pardilla); ninguna se produjo en condiciones controladas ni se comprobó fértil (Johnsgard, 1986). Los cruces con urogallos son más numerosos, casi siempre con gallo doméstico o faisán común: se fotografió un híbrido de faisán y gallo lira, y se citan al menos 15 ejemplares entre 1833 y 1854; hay cinco híbridos aparentemente naturales de faisán con el urogallo azul, descritos a finales del siglo XIX y en 1932 y 1955; pero ningún híbrido de urogallo y faisán ha resultado fértil ni ha mostrado actividad sexual (Johnsgard, 1986).
Con pintadas, el cruce es seguro aunque improbable: se han obtenido híbridos de pintada con gallo doméstico y, repetidas veces, con el pavo real indio, se citan presuntos híbridos con el faisán común y un cruce del tragopán de Cabot con la pintada mitrada, y todos parecen estériles (Johnsgard, 1986). Con pavos, también hay híbridos probados, incluidos los de inseminación artificial entre faisán común y pavo doméstico, completamente estériles; los cruces con crácidos y con megápodos (con una hembra que habría puesto huevos) son tan vagos que no se aceptan sin más pruebas (Johnsgard, 1986). Llama la atención, añade Johnsgard, que no se haya registrado ningún cruce entre faisanes y codornices americanas, ni entre estas y las perdices del Viejo Mundo, a pesar de la cantidad de especies de ambos grupos que se crían en cautividad, lo que apoyaría que las codornices americanas merecen al menos rango de subfamilia aparte (Johnsgard, 1986). Esa idea de 1986 se consolidó después: Madge y McGowan (2002) las sitúan en su propia familia (véase el capítulo de sistemática) (Madge y McGowan, 2002).
| Cruce | Evidencia | Fertilidad |
|---|---|---|
| Faisán o gallo con perdiz del Viejo Mundo | Tres combinaciones presuntas, ninguna controlada (Johnsgard, 1986) | No comprobada; un presunto híbrido macho de gallo y perdiz mostró conducta sexual de gallo normal (Johnsgard, 1986) |
| Faisán o gallo con urogallo | Más de una docena de ejemplares y cinco presuntos híbridos naturales con el urogallo azul (Johnsgard, 1986) | Ninguno fértil ni con actividad sexual conocida (Johnsgard, 1986) |
| Faisán o gallo con pintada | Incluyen al pavo real indio con la pintada doméstica; un cruce citado con el tragopán de Cabot (Johnsgard, 1986) | Estériles (Delacour, 1977; Johnsgard, 1986) |
| Faisán o gallo con pavo | Varios híbridos, incluidos los de inseminación artificial (Johnsgard, 1986) | Completamente estériles (los de inseminación) (Johnsgard, 1986) |
| Gallo con crácidos o megápodos | Casos antiguos poco documentados (Johnsgard, 1986) | Sin datos fiables |
| Faisán con codorniz americana | Ningún cruce registrado en 1986 (Johnsgard, 1986) | — |
Resumen de Johnsgard (1986, capítulo 2), basado en Gray (1958) y en los demás autores que cita.
Dentro de la tribu de los faisanes
El análisis serio empieza con los cruces entre faisanes en sentido estricto. Johnsgard cuenta 93 cruces entre especies registrados hasta 1982 sobre un total de 1.166 combinaciones posibles entre las 49 especies, es decir, el 8,0 %; hay 36 especies de 49 implicadas (el 73 %), frente a 12 de las 16 especies de urogallos (el 75 %), que en conjunto muestran 15 cruces de 120 posibles (el 12,5 %). El 48 % de los cruces de faisanes eran entre especies del mismo género, según la taxonomía de la época, y el 52 % entre géneros; el 43 % (40 de 93) tenía al menos fertilidad ocasional. En los urogallos, por comparación, 10 de los 15 cruces eran entre géneros (el 67 %), la mayoría de aves silvestres, de las que no se conoce la fertilidad (Johnsgard, 1986).
De la comparación de todos los cruces Johnsgard extrae varias conclusiones, que se resumen en la tabla (Johnsgard, 1986):
| Conclusión de Johnsgard (1986) | Detalle |
|---|---|
| La fertilidad de los cruces entre géneros es baja y, cuando existe, es solo de los machos | Machos fértiles registrados en cruces de Lophura con Crossoptilon, Syrmaticus, Phasianus y Chrysolophus; de Catreus con Syrmaticus; de Syrmaticus con Phasianus; y de Phasianus con Chrysolophus |
| La fertilidad de ambos sexos queda limitada a cruces dentro del género | Entre especies de Tragopan, Gallus, Lophura, Crossoptilon, Syrmaticus, Phasianus, Chrysolophus y Pavo |
| Gallus parece aislado | No se conoce ninguna fertilidad en cruces con otros géneros; eso, añade, aumenta las dudas sobre el supuesto híbrido de gallo doméstico y megápodo |
| Lophura ocupa una posición central | Tiene cruces que llegan por un extremo a Tragopan y por el otro a Chrysolophus y los demás géneros de cola larga |
| Los pavos reales y los faisanes pavo (Pavo, Polyplectron) están relativamente aislados | Los cruces de Pavo con Gallus y Phasianus (Gray, 1958) y con Lophophorus (Delacour, 1977) son estériles; en Polyplectron solo se conocían cruces entre el pavo gris y el de Germain, el de Rothschild y el gris, y el malayo y el de Borneo |
| Géneros sin ningún híbrido registrado a 1984 | Ithaginis, Pucrasia, Rheinardia, Argusianus y Afropavo; todos menos Pucrasia se mantienen y crían poco en cautividad |
Ordenado a partir del capítulo 2 de Johnsgard (1986); la fig. 3 de la obra, una matriz de especies por especies, es ilegible en el texto disponible, por lo que se usa más adelante la matriz de del Campo (2005), adaptada de la edición de 1999.
Lo que dicen los autores, cruce por cruce
La tabla reúne, para los cruces más citados, lo que cuentan las obras clásicas. Los datos son de aves en cautividad salvo que se diga lo contrario, y están fechados a la edición de cada obra; Delacour (1977) y Gerrits (1974) escriben a partir de la experiencia de la primera mitad del siglo XX y de los estudios de Ghigi, Yamashina y Phillips.
| Cruce | Fertilidad de los híbridos | Fuente |
|---|---|---|
| Dorado × Lady Amherst | Completamente fértiles en los dos sexos; combinaciones muy variables | Gerrits (1974); Delacour (1977); Johnsgard (1986, que cita a Phillips, 1921) (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Dorado o Lady con Phasianus, Syrmaticus o Lophura | Solo los machos son fértiles; las hembras, estériles y a veces con plumaje masculino. Johnsgard precisa que con el plateado las hembras son estériles y los machos fértiles, y con el común, el verde y el venerado solo lo son algunos machos; con el Wallich, todos estériles | Gerrits (1974); Delacour (1977); Johnsgard (1986, que cita a Rutgers y Norris) (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Dorado o Lady con monales o gallos | Estériles | Gerrits (1974); Delacour (1977) (Delacour, 1977; Gerrits, 1974) |
| Syrmaticus entre sí | Se cruzan libremente; híbridos parcialmente fértiles, con hembras por lo general estériles; mikado × Elliot, machos fértiles y hembras estériles | Delacour (1977); Gerrits (1974); Johnsgard (1986) (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Venerado × cobrizo | Parcialmente fértiles, solo los machos | Delacour (1977); Gerrits (1974); Johnsgard (1986, «fertilidad reducida») (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Venerado × faisán común | Hembras por lo general estériles y machos de fertilidad reducida; en 1867 se obtuvieron híbridos, casi todos fértiles, incluida una hembra, caso que Delacour llama muy poco habitual | Johnsgard (1986, que cita a Knoder, 1963); Delacour (1977); Gerrits (1974) (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Formas del faisán común entre sí | Se cruzan libremente y los híbridos son completamente fértiles; Delacour considera que todas las formas forman una gran superespecie | Delacour (1977); Gerrits (1974) (Delacour, 1977; Gerrits, 1974) |
| Pavo real azul × pavo real verde | Totalmente fértiles; con pintadas, monales y gallinas grandes los híbridos son estériles | Delacour (1977); Gerrits (1974); Johnsgard (1986) (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Gallos entre sí | Rojo × Sonnerat, fértiles en Danforth (1958) y en Delacour, pero Morejohn (1968) no logró criar una segunda generación; Lafayette × rojo, no fértiles entre sí según Beebe (citado por Johnsgard) y totalmente fértiles según Delacour | Johnsgard (1986); Delacour (1977) (Delacour, 1977; Johnsgard, 1986) |
| Gallo con otros géneros | Estériles; Johnsgard no conoce ninguna fertilidad | Delacour (1977); Johnsgard (1986) (Delacour, 1977; Johnsgard, 1986) |
| Monales con otros géneros | Completamente estériles | Delacour (1977) (Delacour, 1977) |
| Orejudos con Lophura | Semifértiles; con el kalij predominan los caracteres de Lophura y los machos son fértiles | Delacour (1977); Gerrits (1974) (Delacour, 1977; Gerrits, 1974) |
| Imperial con Edwards, Swinhoe, plateado y kalij de pecho negro | Fértiles | Delacour (1977); Gerrits (1974); Johnsgard (1986) (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
| Satyr × Temminck | Se cruzan con mucha facilidad y la descendencia es completamente fértil; los híbridos de siete octavos de Temminck eran indistinguibles de los puros | Johnsgard (1986, que cita a Sivelle, 1979); Delacour (1977) (Delacour, 1977; Johnsgard, 1986) |
| Faisanes pavo | Rothschild × pavo gris, totalmente fértiles; malayo × de Borneo, hembras tan fértiles como las puras | Johnsgard (1986, que cita a Denton, 1978) (Johnsgard, 1986) |
Los datos se citan con la fecha de la obra consultada; no equivalen a una verificación actual. Las hembras híbridas estériles de mikado × Elliot ponen, según Delacour, muchos huevos pequeños e infértiles (Delacour, 1977).
Hibridación en libertad: zonas de contacto y casos discutidos
Johnsgard conocía en 1986 tres posibles casos naturales; la lista completa depende de a quién se crea en cada zona de contacto.
Un híbrido natural exige que dos especies se encuentren. Los faisanes viven muy repartidos por montañas y valles de Asia, y las zonas donde dos formas se tocan son pocas y mal exploradas, de modo que la mayoría de los casos que se citan se apoyan en unos cuantos ejemplares de museo o en observaciones de campo antiguas. Johnsgard (1986) solo admitía tres casos posibles: el gallo rojo con el gallo de Sonnerat, el kalij con el plateado y, con dudas, los orejudos blanco y azul (Johnsgard, 1986). Las demás obras dan algunos más, y no siempre coinciden sobre lo que ocurre en cada zona.
| Pareja | Dónde | Qué dicen las fuentes | Fuentes |
|---|---|---|---|
| Gallo rojo × gallo de Sonnerat | Contacto en el centro de la India, donde el río Godavari separa a los dos grupos | Híbridos naturales recogidos en 1946 al norte de Jubbulpore; Johnsgard da un caso natural en una zona estrecha de simpatría y, en otro apartado, que no se produce hibridación salvaje en la zona de contacto (véase el recuadro) | (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002) |
| Kalij (lathami) × plateado (rufipes, occidentalis) | Valles del alto Irrawaddy, en Birmania y el noroeste de Yunnan | Poblaciones híbridas inestables en una zona de contacto; Beebe tenía por híbridos 36 formas nombradas | (Beebe, 1921; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002) |
| Kalij de cresta blanca × kalij de dorso negro | Nepal y regiones vecinas del Himalaya | Híbridos frecuentes que en el siglo XIX se describieron como especies; las dos formas de origen son hoy subespecies de un mismo kalij | (del Hoyo et al., 1994; Elliot, 1872 (vol. II)) |
| Tragopán de Blyth × de Temminck | Divisoria Shweli–Salween, en el oeste de Yunnan | Un único ejemplar, probablemente híbrido, en el Museo Americano de Historia Natural (Nueva York) | (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002) |
| Orejudo blanco × orejudo azul | Este del área de las formas blancas, en el Tíbet oriental y las montañas del oeste de China | Beebe (1918) los veía como híbridos silvestres; Johnsgard, en 1986, como cruce no demostrado | (Beebe, 1918; Fuller y Garson, 2000; Johnsgard, 1986; Roles, 1976) |
| Cobrizo × faisán verde | Japón | Cruces ocasionales en libertad, de híbridos estériles | (del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986) |
| Dorado × Lady Amherst | Franja de contacto del suroeste de China | Sin contacto conocido (Johnsgard, Madge) o con una banda de solapamiento y solo híbridos ocasionales (libro chino de Yang y colaboradores, de 1992) | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002; Yang et al., 1992) |
| Faisán imperial (como forma híbrida) | Centro de Vietnam | Híbrido silvestre de plateado y de Edwards o vietnamita, según varios autores recientes | (del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002) |
Los casos se ordenan de más a menos documentados según el texto de las fuentes, no por antigüedad. El detalle de cada uno está en los apartados siguientes.
Kalij y plateado: una frontera de híbridos
Es el caso más documentado. Delacour (1977) tiene como un par de especies hermanas, que forman una superespecie, a los kalij del oeste y a los plateados del este, porque difieren en el color de las patas, porque los primeros maduran en su primer año y los segundos en el segundo y porque donde se encuentran, a lo largo del Irrawaddy, en Birmania, aparecen poblaciones híbridas inestables (Delacour, 1977). Según el mismo autor, el kalij oriental (lathami) se cruza en el país al este del alto Irrawaddy, en los distritos de Ruby Mines, Bhamo y Myitkyina, con los plateados locales (rufipes y occidentalis), que viven normalmente más arriba pero bajan por las laderas; así nacieron numerosas formas variables a las que se pusieron nombres sin valor taxonómico, y entre ellas están andersoni, davisoni, nisbetti o atlayi (Delacour, 1977). Johnsgard (1986) coincide en que el lathami y el plateado rufipes producen híbridos inestables en los valles bajos, que el plateado occidentalis se hibrida localmente con el kalij en las montañas de Yunnan y Birmania, a 6.000–7.000 pies (unos 1.800–2.100 m), y que la variación geográfica de machos de las dos especies se confunde en esa zona (Johnsgard, 1986). Madge y McGowan (2002) dan también el cruce en el este de Myanmar (Madge y McGowan, 2002).


La interpretación de esos híbridos ha cambiado. Beebe (1921) estudió el asunto sobre el terreno, en Birmania y Yunnan, y concluyó que las 36 formas con nombre binomial descritas dentro del área de las tres especies más extendidas (el kalij de pecho negro, el lineado y el plateado) eran todas híbridos naturales, formados cuando las tres especies volvieron a acercarse por los valles estrechos de Birmania; 19 de esos nombres eran de Oates, que no creía en la hibridación de estas aves (Beebe, 1921). Beebe cita además las conclusiones de Ghigi: cuando dos especies difieren solo en un par de caracteres antagónicos, los híbridos vuelven a las especies originales en las siguientes generaciones, y por eso solo pueden dar formas nuevas las parejas que difieren en un conjunto más complejo de rasgos (Beebe, 1921). En el Handbook (1994), en cambio, se advierte que las subespecies oatesi, lineata y crawfurdi del kalij, al este del Irrawaddy, están más emparentadas con algunas subespecies del plateado que con las del kalij al oeste del río, y que las dos especies necesitan revisión (del Hoyo et al., 1994). Fuller y Garson (2000) incluyen el complejo plateado–kalij entre los grupos cuyo estatus hay que reexaminar (Fuller y Garson, 2000).
Los gallos rojo y de Sonnerat
Los gallos silvestres son el segundo caso clásico. Según Johnsgard, el gallo rojo y el gallo de Sonnerat se separaron probablemente a ambos lados del río Godavari: el rojo, al nordeste, en un clima más húmedo de selva mixta y praderas; el de Sonnerat, al suroeste, en matorral seco; y ambos conservan su aislamiento geográfico con diferencias de plumaje, de conducta y de genes que reducen la fertilidad y la viabilidad de los híbridos (Johnsgard, 1986). Delacour (1977) comenta que el rojo se encuentra con el de Sonnerat en las Provincias Centrales y que cerca de Jubbulpore se han hallado las dos especies y sus híbridos; en 1946, Koelz recogió allí, además de un macho puro de Sonnerat y varios rojos, dos machos híbridos (Delacour, 1977). Madge y McGowan hablan de hibridación ocasional en una franja de contacto estrecha, y el Handbook, de hibridación local (del Hoyo et al., 1994; Madge y McGowan, 2002).
Los orejudos del Tíbet oriental
En los orejudos la discusión no es si se cruzan, sino qué se ha confundido con un cruce. Beebe (1918) revisó las pieles de muchos museos y vio que las aves del este del área, entre el orejudo azul y el blanco (tibetanum para Beebe), mostraban rasgos intermedios: cantidad variable de blanco, número distinto de rectrices (20, 22 o 24) y dibujos asimétricos, más desarrollados en un lado que en el otro. Para él no había otra explicación posible que el cruce entre las dos formas, de colores tan distintos, y por eso redujo a sinonimia, como híbridos silvestres, harmani, leucurum y drouynii (Beebe, 1918). Roles (1976) cree que la forma central (drouynii) se cruza con las tres vecinas a lo largo de su frontera común (Roles, 1976). Johnsgard, sin negarlo, considera que drouynii es, para algunos, producto del cruce de los tipos extremos, y que la hibridación natural del orejudo azul, sugerida por Gray (1958), no está demostrada (Johnsgard, 1986). Fuller y Garson (2000) recuerdan que el orejudo del Tíbet (harmani) suele tratarse como subespecie del blanco, que difiere mucho en el plumaje y en las plumas de la cola, y reclaman comparar voces y ADN en todo el género (Fuller y Garson, 2000). La web lo trata como especie aparte (faisán orejudo del Tíbet) (Apéndice de la web, 2026).
Tragopanes, cobrizos y faisanes comunes
La mayor parte del área del tragopán de Blyth está separada de la del tragopán de Temminck por valles anchos, según Delacour; Johnsgard añade que podrían encontrarse en el sureste del Tíbet y cerca de la frontera entre Assam y Yunnan. En el oeste de Yunnan, sobre la divisoria entre los ríos Shweli y Salween, se recogió un ejemplar intermedio, probablemente híbrido, en el mismo lugar y fecha que un macho y una hembra de aspecto normal de Temminck, y se conserva en Nueva York (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Es un solo animal; no hay, por ahora, una zona de contacto con híbridos regulares.
En Japón, el faisán cobrizo y el faisán verde ocupan hábitats distintos: el primero, bosques con sotobosque denso; el segundo, llanuras de hierba, cultivos y bosques claros a baja altitud. Se mezclan poco y, según Yamashina (citado por Johnsgard), rara vez se hibridan en libertad, y los híbridos conocidos son estériles (del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). Entre las subespecies del cobrizo, Delacour cita que el príncipe Taka-Tsukusa creía que scintillans, en el norte, y soemmerringi, en el sur, eran dos especies que se cruzan y producen poblaciones híbridas en el sur de Honshu y en Shikoku, aunque él prefería ver en ellas intermedios raciales entre subespecies (Delacour, 1977).
Entre los faisanes comunes, los límites de las subespecies son tan graduales que su existencia misma se discute. Delacour los reúne en una gran superespecie, cuyas formas se sustituyen geográficamente y se cruzan sin problema con descendencia fértil (Delacour, 1977). Un estudio genético de 2017 con 17 de las 30 subespecies reconocidas no encontró concordancia entre las subespecies definidas por el plumaje y las relaciones genéticas, y lo explica por un aislamiento antiguo seguido, en el oeste, de mezcla de poblaciones tras una expansión reciente (Kayvanfar et al., 2017).
El faisán imperial: una forma de origen híbrido
Del ave descubierta en 1923 al híbrido natural que describen los autores recientes: lo que se sabía en cada fecha y lo que se discute todavía.
El faisán imperial es el caso más llamativo de cómo la hibridación puede cambiar la idea que se tiene de una especie. Descrito en 1924 como especie nueva a partir de una pareja capturada en Vietnam, lleva décadas en las listas de aves amenazadas, y los trabajos de finales de los años noventa lo describen como un híbrido natural de dos formas vecinas. La web no le da categoría de la UICN y lo deja como «No evaluada»; es el único caso de las 53 especies catalogadas, y la razón es que Birds of the World no lo reconoce como especie válida (Apéndice de la web, 2026; Fichas de la web, 2026).
Cronología de un hallazgo
- Delacour y su equipo descubren el ave en Annam; solo una pareja llegó viva a Delacour, enviada por misioneros desde las montañas calizas de Donghoi y el norte de Quangtri; en la residencia de Quangtri los dos ejemplares compartieron jaula con varios faisanes de Edwards, y las diferencias de color, forma y tamaño eran notables en los dos sexos (Delacour, 1977).
- La pareja llega a Clères (Francia) en 1924 y cría en 1925; durante años se obtienen pollos con regularidad, aunque la cría se debilita con la consanguinidad (Delacour, 1977; Johnsgard, 1986).
- Muere el macho original, que se conservaba en perfecto estado: en 1939, según Howman (1996), y en 1940, según Delacour y Johnsgard; la colección de Clères desaparece con la guerra (Delacour, 1977; Howman, 1996; Johnsgard, 1986).
- El zoo de Amberes inicia un programa de «restauración» con un macho imperial y una hembra plateada: en 1964 y 1965 se crían muchos híbridos, se añaden luego otro macho puro y un macho con un octavo de sangre de Edwards, y hacia 1968 algunas aves se parecen mucho al imperial; en Holanda se hacen experimentos paralelos con el kalij de Nepal (Howman, 1996; Johnsgard, 1986; Roles, 1976).
- El macho imperial puro, de al menos 25 años, resulta estéril en 1975; el censo de la World Pheasant Association da 21, 27 y 24 aves en 1976, 1979 y 1982, casi todas de origen híbrido (Johnsgard, 1986; Roles, 1976).
- Un ave viva es capturada por recolectores de ratán a 12 km al oeste de Cat Bin, en el centro de Vietnam; hasta entonces el único registro fiable era el de la pareja de 1923 (del Hoyo et al., 1994).
- El Handbook deja la condición del imperial, del Edwards y del vietnamita como «incierta» y pendiente de revisión (del Hoyo et al., 1994).
- Rasmussen propone que el imperial es un híbrido silvestre; el ADN mitocondrial de las formas vietnamitas es compatible con ello; un macho adulto se recoge vivo en el distrito de Dakrong a principios de 2000 (Fuller y Garson, 2000).
- Madge y McGowan lo dan por un híbrido raro de plateado y vietnamita (Madge y McGowan, 2002).
Qué se concluyó y cómo
Tras el redescubrimiento de 1990, Fuller y Garson (2000) resumen que Rasmussen (1998), tras estudiar a fondo pieles de museo, propone que el imperial es una forma híbrida silvestre de cruces entre formas locales del plateado y del faisán de Edwards o del vietnamita; que se estaba comprobando con cruces controlados en cautividad (A. Hennache, comunicación personal) y que la secuenciación del ADN mitocondrial de unas pocas muestras indica que las tres formas solo difieren lo que suele bastar para separar subespecies, lo que concuerda con un origen híbrido (E. Randi, comunicación personal) (Fuller y Garson, 2000). Si no lo fuera, añaden, el imperial pasaría a la categoría «en peligro crítico» (Fuller y Garson, 2000). Madge y McGowan (2002) lo dan ya casi por seguro: lo consideran un híbrido raro del plateado annamensis y el faisán vietnamita, y proponen tratar a este y al de Edwards como una sola especie (Madge y McGowan, 2002). La web lo recoge como híbrido natural entre Lophura nycthemera annamensis y Lophura edwardsi (de cola blanca) (Apéndice de la web, 2026), y el primer volumen de Hernández García (2013) señala en nota que algunos autores lo consideran híbrido de L. nycthemera annamensis y L. edwardsi hatinhensis (Hernández García, 2013).

Los intentos de salvar el imperial en cautividad consistieron, en la práctica, en cruzarlo con otras especies de Lophura y seleccionar a la descendencia. Roles (1976) cuenta que los cruces con el plateado, el Edwards y el Swinhoe dieron dibujos y colores no deseados, por lo que esas especies resultaron poco adecuadas para el propósito, y que las crías de tercera generación del imperial con el kalij de Nepal eran las que más se parecían al ave pura (Roles, 1976). Johnsgard (1986) añade que el mantenimiento de la población cautiva se veía frenado por su baja fertilidad y por la posible infusión de genes de especies emparentadas (Johnsgard, 1986). En 1993, Howman anotaba una población cautiva nula de la especie pura (Howman, 1993).
Hibridación en cautividad: un catálogo de cruces
Qué se ha cruzado, con qué resultado y qué se sabe de la fertilidad de los híbridos: una tabla de 93 cruces entre especies con las lagunas que la propia tabla deja.
En una pajarera los cruces ocurren porque se aloja junto lo que no debería estar junto, porque falta la pareja de la especie o porque alguien quiere ver qué sale. Johnsgard (1986) los tiene por accidentes en la mayoría de los casos; Green-Armytage (2002) añade que algunos científicos los provocaron para saber cuánto se parecían dos especies, que hembras de especies distintas pueden parecerse mucho y haber sido emparejadas sin querer, y que a veces basta la proximidad de las jaulas para que las aves tomen la iniciativa (Green-Armytage, 2002; Johnsgard, 1986).
La matriz de hibridación
La fuente más completa y legible es la matriz de hibridación del criadero Chintaguay (Chile), que del Campo tradujo, adaptó y completó en 2005 a partir de la edición de 1999 de Johnsgard, y que reproduce esta web en su sección de documentos (del Campo, 2005 (tabla de hibridación)). Es una tabla triangular de 37 especies por 37, con una casilla por cada cruce posible y una clave de colores que distingue ocho situaciones; la edición de 1986 de Johnsgard tiene una figura equivalente, pero ilegible en el texto disponible (del Campo, 2005 (tabla de hibridación); Johnsgard, 1986). Leída casilla a casilla, la matriz marca 93 cruces, justo el número que dio Johnsgard en 1986: 40 entre especies del mismo género y 53 entre géneros distintos (Johnsgard da el 48 % y el 52 %), con 18 cruces con ambos sexos fértiles, 21 con solo machos fértiles o a veces fértiles, 13 de híbridos estériles, 38 sin dato de fertilidad y 3 dudosos; los fértiles al menos en un sexo son 39, frente a los 40 de Johnsgard (del Campo, 2005 (tabla de hibridación); Johnsgard, 1986). Son recuentos propios sobre la imagen de la tabla, y la división por géneros no coincide con la del texto de Johnsgard; la matriz solo incluye 37 de las 53 especies que cataloga hoy la web.
- 93casillas marcadas en la matriz
- 40cruces dentro de un mismo género
- 53cruces entre géneros distintos
- 18con ambos sexos fértiles
- 21con solo machos fértiles o a veces
Cruces entre especies del mismo género
Los cruces dentro del género son los más fértiles: las 18 casillas con ambos sexos fértiles son todas de especies del mismo género, y corresponden a Tragopan, Gallus, Lophura, Crossoptilon, Syrmaticus, Phasianus, Chrysolophus, Polyplectron y Pavo. En la tabla, «cola rosa» es Lophura erythrophthalma (faisán cola rosa malayo), «noble» es L. ignita (faisán noble) y «prelado» es L. diardi (faisán prelado); «pavo gris» es el faisán pavo gris (Polyplectron bicalcaratum).
| Géneros | Ambos sexos fértiles | Solo machos fértiles (o a veces) | Estériles | Cautividad, sin dato de fertilidad | Registro dudoso |
|---|---|---|---|---|---|
| Tragopan | satyr × Temminck | — | — | satyr × Blyth; satyr × Cabot; Blyth × Temminck | — |
| Gallus | gallo rojo × gallo de Lafayette; gallo rojo × gallo de Sonnerat (también en libertad); gallo rojo × gallo verde; gallo de Lafayette × gallo de Sonnerat | — | — | gallo de Lafayette × gallo verde; gallo de Sonnerat × gallo verde | — |
| Lophura | kalij × plateado (también en libertad); kalij × imperial; plateado × Swinhoe; imperial × Edwards; imperial × Swinhoe; Edwards × Swinhoe | kalij × Edwards; kalij × Swinhoe; kalij × cola rosa; plateado × prelado; imperial × noble | — | kalij × noble; kalij × prelado; plateado × imperial; plateado × noble; Swinhoe × noble; Swinhoe × prelado; noble × prelado | — |
| Crossoptilon | orejudo blanco × orejudo azul (también en libertad); orejudo marrón × orejudo azul | — | — | — | — |
| Syrmaticus | Elliot × Hume | Elliot × cobrizo; Elliot × venerado; mikado × venerado; cobrizo × venerado | — | — | — |
| Phasianus | común × verde | — | — | — | — |
| Chrysolophus | dorado × Lady Amherst (también en libertad) | — | — | — | — |
| Polyplectron | pavo malayo × pavo de Borneo | — | — | pavo gris × Germain | — |
| Pavo | pavo real azul × pavo real verde | — | — | — | — |
Elaborada a partir de la matriz de del Campo (2005, adaptada de Johnsgard, 1999), casilla a casilla. «Ambos sexos fértiles» incluye los cruces con híbridos conocidos en libertad (gallo rojo × Sonnerat, kalij × plateado, orejudo blanco × azul y dorado × Lady Amherst). Las fechas de los datos originales son anteriores a 1999.
Cruces entre géneros distintos
De los 53 cruces entre géneros, ninguno tiene los dos sexos fértiles; en 12 los machos son fértiles o lo son a veces, en 13 los híbridos son estériles, en 3 el registro es dudoso y en el resto no consta la fertilidad. Las combinaciones con machos fértiles son, en lo esencial, las que Johnsgard enumeraba en 1986 (Lophura con Crossoptilon, Syrmaticus, Phasianus y Chrysolophus; Catreus con Syrmaticus; Syrmaticus y Phasianus entre sí y con Chrysolophus) (Johnsgard, 1986).
| Géneros | Ambos sexos fértiles | Solo machos fértiles (o a veces) | Estériles | Cautividad, sin dato de fertilidad | Registro dudoso |
|---|---|---|---|---|---|
| Tragopan × Pucrasia | — | — | — | Temminck × koklass | — |
| Tragopan × Lophura | — | — | — | satyr × Swinhoe | — |
| Tragopan × Catreus | — | — | — | Temminck × Wallich | — |
| Tragopan × Chrysolophus | — | — | Cabot × Lady Amherst | — | — |
| Pucrasia × Lophophorus | — | — | — | koklass × monal del Himalaya | — |
| Pucrasia × Catreus | — | — | — | koklass × Wallich | — |
| Lophophorus × Lophura | — | — | — | monal del Himalaya × kalij; monal del Himalaya × plateado | — |
| Lophophorus × Crossoptilon | — | — | — | monal del Himalaya × orejudo azul | — |
| Lophophorus × Catreus | — | — | — | monal del Himalaya × Wallich | — |
| Lophophorus × Chrysolophus | — | — | monal del Himalaya × Lady Amherst | — | — |
| Lophophorus × Pavo | — | — | — | monal del Himalaya × pavo real azul | — |
| Gallus × Lophura | — | — | gallo rojo × plateado; gallo rojo × imperial; gallo de Sonnerat × plateado | — | gallo rojo × prelado |
| Gallus × Syrmaticus | — | — | — | gallo rojo × cobrizo | — |
| Gallus × Phasianus | — | — | — | gallo rojo × común (recíproco); gallo rojo × verde (recíproco) | — |
| Gallus × Chrysolophus | — | — | gallo rojo × dorado (recíproco) | — | — |
| Gallus × Pavo | — | — | — | gallo rojo × pavo real azul | — |
| Lophura × Crossoptilon | — | plateado × orejudo marrón | — | — | — |
| Lophura × Catreus | — | — | — | kalij × Wallich; plateado × Wallich | — |
| Lophura × Syrmaticus | — | plateado × venerado | — | kalij × Elliot; plateado × Elliot; Swinhoe × Hume; Swinhoe × venerado; prelado × cobrizo | — |
| Lophura × Phasianus | — | plateado × común | — | kalij × común; Swinhoe × verde | — |
| Lophura × Chrysolophus | — | plateado × dorado | kalij × Lady Amherst; Swinhoe × Lady Amherst | Swinhoe × dorado | — |
| Catreus × Syrmaticus | — | Wallich × venerado | — | — | — |
| Catreus × Chrysolophus | — | — | Wallich × dorado | — | — |
| Syrmaticus × Phasianus | — | venerado × común; venerado × verde | cobrizo × común | cobrizo × verde | Elliot × común |
| Syrmaticus × Chrysolophus | — | venerado × dorado | Elliot × Lady Amherst; cobrizo × dorado; venerado × Lady Amherst | — | — |
| Phasianus × Chrysolophus | — | común × dorado; común × Lady Amherst; verde × dorado; verde × Lady Amherst | — | — | — |
| Phasianus × Pavo | — | — | — | — | común × pavo real azul |
Elaborada a partir de la matriz de del Campo (2005, adaptada de Johnsgard, 1999); los nombres de las especies son los de la tabla anterior. Dos casillas figuran como recíprocas (gallo rojo con el común y con el verde) y otra, la del gallo rojo con el dorado, como recíproca y estéril. Los cruces del faisán común con el pavo real azul y del gallo rojo con el prelado figuran como «registro dudoso»; también el de Elliot con el común.
Cruces con nombre propio
- Híbrido de dorado y Lady Amherst
- El más antiguo y frecuente; véase el apartado siguiente.
- Pavo de Spalding
- Cruce del pavo real de hombros negros (una mutación del pavo real azul) con el pavo real verde; se crió durante varias generaciones en California y, según Delacour (1977) y Johnsgard (1986), estaba ya fijado; los mejores resultados se obtuvieron con macho de hombros negros y hembra verde (Delacour, 1977; Johnsgard, 1986). Un estudio genómico de 2025 detectó, además, en zoológicos tres pavos reales verdes híbridos, con entre un 16 y un 34 % de contenido genómico del azul, y cuatro azules con regiones introgresadas del verde (Fichas de la web, 2026; Wang et al., 2025).
- Bekisar
- Cruce del gallo verde con la gallina doméstica en Java y Bali, que se cría para los concursos de canto; los machos híbridos son fértiles y las hembras ponen huevos pequeños, casi siempre infértiles; Delacour cuenta que los gallos verdes se mantienen desde hace mucho en esas islas con ese fin, y el Handbook y Madge, que se sigue capturando machos silvestres (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). Véase conservación.
- Cruces con el venerado
- La hembra de venerado llevada a Londres en 1838 crió híbridos con un macho de faisán común antes de morir, en 1840; en 1867, un macho de venerado con hembras de faisán común dio otros, casi todos fértiles; Gerrits atribuye estos cruces a la falta de hembras. Después se cruzó el venerado con cobrizos, Wallich y plateados, y solo los machos híbridos son fértiles (Delacour, 1977; Gerrits, 1974).
- «Faisán quintex»
- Robertson cuenta que en Ohio se soltó un híbrido de cinco especies, criado para que tuviera rasgos que se creían ventajosos; el proyecto se abandonó porque no mostró ventajas sobre los faisanes comunes locales (Robertson, 1997).
El híbrido de dorado y Lady Amherst: de la lámina de Elliot a la pureza de las líneas
El cruce más frecuente en cautividad lleva más de un siglo de historia: cómo se produjo, qué fertilidad tiene y qué consecuencias ha tenido para las dos especies.
Entre todos los cruces de faisanes, el de faisán dorado y faisán de Lady Amherst es el que más se ha repetido, el primero que se pintó como tal en una monografía y el que más ha afectado a las aves de pajarera. Las fichas de las dos especies de esta web cuentan con detalle la historia de la pureza de sus líneas; aquí se sitúa ese caso en el conjunto de la hibridación.
La lámina de Elliot (1872)
En el segundo volumen de su monografía (1872), Elliot incluyó, pese a que no era su propósito representar híbridos, una lámina rotulada «Hybrid Pheasant» (faisán híbrido) (Elliot, 1872 (vol. II)). Según su texto, el ave es hijo de un macho de Lady Amherst (que llama Thaumalea amherstiae) y de una hembra de dorado (T. picta), y se crió en el aviario del señor Stone; el ejemplar de la lámina se depositó en los jardines de Regent’s Park, donde lo alojaron junto a los dorados y al lado del recinto del Lady Amherst, y eclipsaba en tamaño y brillo a las dos especies (Elliot, 1872 (vol. II)). Elliot elogia la regularidad del dibujo y la distribución de los colores, sin mezclas ni moteados, salvo en la garganta, donde el rojo del dorado y el verde oscuro del Lady Amherst se disputan el lugar sin que gane ninguno. La señal de impureza es la barra de color ante que cruza interrumpida la parte alta del pecho, justo donde empieza el blanco del pecho del Lady; los machos de ninguna de las dos especies tienen ante en el pecho, y Elliot supone que es el blanco del Lady intentando abrirse paso a través del rojo (Elliot, 1872 (vol. II)). En noviembre de 1871 vio en Amberes otro híbrido igual de hermoso, con el color ante reducido a una gran mancha a cada lado del pecho (Elliot, 1872 (vol. II)). Cuenta que había decidido no representar nunca un faisán híbrido y que hizo una excepción por la belleza del ave y por la rareza de uno de sus padres; pero aconseja a quien cría faisanes, por gusto o por provecho, mantener la sangre lo más pura posible y no admitir ningún cruce, incluso el de un intruso tan espléndido (Elliot, 1872 (vol. II)).
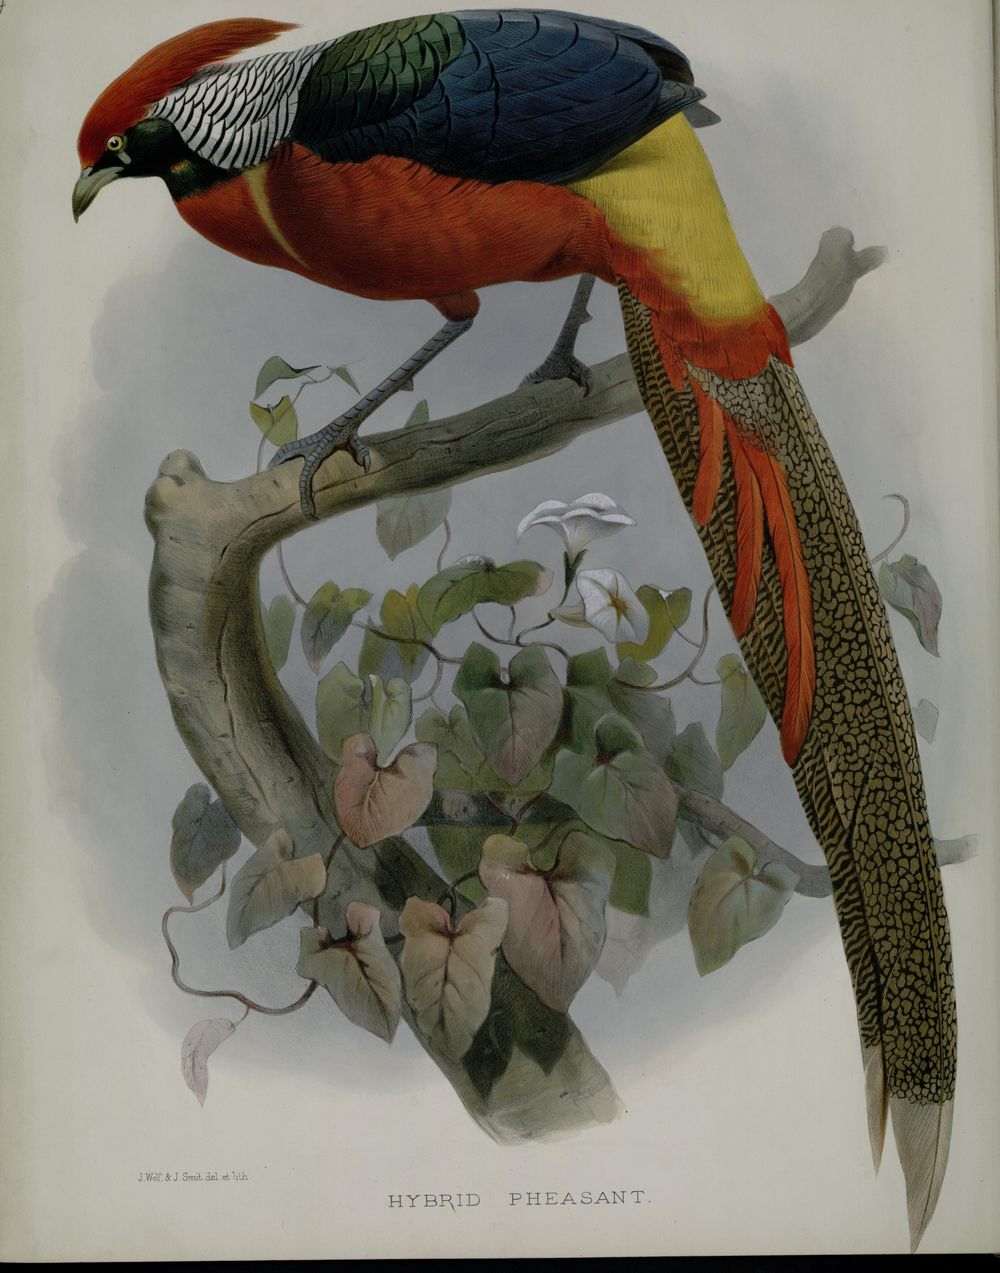
Las fechas encajan con lo que cuenta Delacour sobre la llegada del Lady Amherst a Europa. Según él, los primeros ejemplares vivos fueron dos machos enviados a Londres en 1828 por Lord Amherst, que no sobrevivieron mucho al viaje; en julio de 1869 llegaron cinco machos y una hembra, recogidos en Szechuan por un misionero francés y recibidos por J. J. Stone, y todos menos un macho se enviaron al zoo de Amberes, donde en 1870 se criaron híbridos, pero la única hembra murió a manos de un macho; Stone recibió otra pareja en 1870, que crió en 1871 en el zoo de Londres (Delacour, 1977). No se ha podido comprobar si el Stone de Elliot es el mismo, pero la coincidencia de nombre, lugar y fecha hace probable que el híbrido de la lámina saliera de esa primera remesa. Gerrits explica el resto de la historia: se importaron más machos que hembras, y los machos que quedaron se cruzaron con hembras de dorado; esa práctica de seguir cruzando de vuelta con Lady produjo gran número de híbridos, y un Lady Amherst puro es hoy, escribía, muy raro (Gerrits, 1974). Howman (1979, 1993, 1996) y Delacour coinciden en el diagnóstico (Delacour, 1977; Howman, 1979; Howman, 1993; Howman, 1996).
Híbridos totalmente fértiles
La fertilidad del híbrido es lo que ha permitido su difusión. Johnsgard (1986) señala que los experimentos con las dos especies se han repetido muchas veces y que en todos se ha confirmado la conclusión de Phillips (1921): los híbridos de primera generación son completamente fértiles; Phillips advirtió, además, que cuando esos híbridos se cruzan entre sí la segregación de los caracteres de plumaje del macho es menor de la esperada entre dos especies tan parecidas, y menor que en la segunda generación de plateado y kalij de dorso negro que él también crió (Johnsgard, 1986). Danforth (1950) se ocupó de los híbridos de Chrysolophus con Phasianus; Baker (1965) no pudo separar las dos especies por electroforesis de las proteínas de la clara de huevo, aunque halló un polimorfismo de albúmina que varía entre ellas, y Johnsgard concluye que forman una superespecie (Johnsgard, 1986). Delacour describe «combinaciones sin fin» de híbridos completamente fértiles, a menudo muy hermosos y variables (Delacour, 1977), y Gerrits opina que su esplendor no ha igualado nunca al de los padres (Gerrits, 1974). Beebe (1922) publicó una lámina de Grönvold con las variaciones de estos híbridos y distinguió dos tipos generales: uno con la esclavina pálida, de blanco azulado y puntas rojas, y otro con la esclavina más parecida a la del dorado (Beebe, 1922).

¿Se cruzan en libertad?
Johnsgard (1986) decía que no se conocía contacto secundario entre las dos especies en libertad, aunque en cautividad no mostraban barreras aparentes y había poca evidencia de que los híbridos fueran menos fértiles en ninguno de los sexos; Madge y McGowan (2002) escriben que las áreas casi se tocan y no se conoce solapamiento (Johnsgard, 1986; Madge y McGowan, 2002). Los autores chinos del libro sobre el Lady Amherst (Yang y colaboradores, 1992), tal como los recogen las fichas de la web, no lo ven así: con más localidades de captura, hallan que ambas se han recogido en Baoxing (Sichuan), Zhaotong (Yunnan), Guiyang (Guizhou) y la zona de Xilin, Longlin, Tianlin y Jingxi (Guangxi), y deducen una banda de mosaico y solapamiento de las áreas en tres tramos, desde Sichuan hasta el oeste de Guangxi; en ella solo han encontrado híbridos ocasionales, como un macho recogido en el condado de Xuyong (Sichuan), a 1.500 m, en un paisaje de bosque de frondosas y cultivos; los mismos autores vieron en 1988, en el zoo de Guiyang, un macho comprado en la región con el vientre teñido de rojo que podía ser otro híbrido natural (Fichas de la web, 2026; Yang et al., 1992). El aislamiento vendría del hábitat y la altitud: el Lady Amherst vive sobre todo entre 1.500 y 3.000 m, en bosque subtropical de frondosas perennes y en bosques mixtos, y el dorado entre 400 y 1.700 m (Fichas de la web, 2026; Yang et al., 1992). La matriz de hibridación marca el cruce como conocido en libertad, con ambos sexos fértiles (del Campo, 2005 (tabla de hibridación)).
La pureza de las líneas de dorado y de Lady Amherst
La consecuencia práctica de un siglo y medio de cruces es que en las colecciones hay muchos dorados y Lady Amherst de sangre mezclada. Gerrits (1974) escribe que, tras numerosos cruces con el Lady Amherst, muchos dorados han perdido la pureza; Delacour (1977) añade que el cruce y las muchas generaciones criadas en pajarera han deteriorado una parte de las líneas del dorado; en el Lady, según Gerrits, un ejemplar puro es hoy muy raro, y según Delacour los hay, pero menos de los que debería haber (Delacour, 1977; Gerrits, 1974); Delacour cuenta que las primeras aves silvestres reintroducidas en mucho tiempo, una docena capturada cerca de Yunnan Fu, llegaron a Clères en 1930, y que el duque de Bedford mantuvo en Woburn Abbey, durante muchos años, centenares de Lady perfectamente puros (Delacour, 1977). Johnsgard (1986) señala que muchas aves criadas en cautividad muestran rasgos intermedios por hibridación en generaciones anteriores (Johnsgard, 1986), y Corder, de la World Pheasant Association, aconseja no crear híbridos como el de dorado y Lady Amherst, porque las aves de los programas de conservación valen demasiado para echarlas a perder de ese modo (Corder, s. f.).
| Ave y rasgo | Ave pura | Señal de sangre de la otra especie | Fuente |
|---|---|---|---|
| Dorado, cara y garganta del macho | Rojo oxidado uniforme | Reflejo metálico verde; el dorado de garganta oscura puro tampoco debe tenerlo | (Delacour, 1977; Gerrits, 1974) |
| Dorado, cola del macho | Profusamente moteada, sin rastro de barras | Barras | (Delacour, 1977) |
| Dorado, aspecto general | Pequeño, esbelto y de patas altas | — (Johnsgard señala que muchas aves de pajarera muestran rasgos intermedios por cruces anteriores) | (Delacour, 1977; Johnsgard, 1986) |
| Lady, flancos y muslos del macho | Sin rojo | Rojo en los flancos y los muslos | (Delacour, 1977; Gerrits, 1974) |
| Lady, cola del macho | Sin moteado | Restos de moteado | (Delacour, 1977; Gerrits, 1974) |
| Lady, supracaudales del macho | Puntas naranja | Puntas escarlata | (Delacour, 1977; Gerrits, 1974) |
| Lady, corona y cresta del macho | Corona verde metálico y cresta normal | Cresta demasiado grande, o corona escarlata en un macho por lo demás perfecto (resto de sangre de dorado: debe descartarse) | (Delacour, 1977; Gerrits, 1974) |
| Lady, hembra | Tono rojizo intenso en cabeza, garganta y pecho (como en las silvestres) | Falta de ese tono | (Delacour, 1977) |
| Híbrido de 1872 | — | Barra de color ante interrumpida a través de la parte alta del pecho | (Elliot, 1872 (vol. II)) |
Ningún rasgo basta por sí solo, y casi todos proceden de textos de 1977 o anteriores. Para distinguir a las hembras de las dos especies, Delacour da el color de las patas y de la piel de la órbita: amarillas en el dorado y gris azuladas en la Lady (Delacour, 1977). Las fichas de la web reúnen más señales de otros autores.
Dorados 5000
El proyecto de criadores más conocido para recuperar líneas puras es el de los «Dorados 5000», que Hernández García cuenta en el segundo volumen de su guía práctica (Hernández García, 2014). En los años noventa, un grupo de criadores belgas, dentro de Aviornis, quiso reproducir dorados puros; empezaron seleccionando aves, pero los datos de que partían no eran correctos. Con el apoyo de Aviornis visitaron las colecciones de pieles de los museos de París, de Berlín y de Tring (Inglaterra) y fotografiaron muchos ejemplares para definir un fenotipo puro; después trabajaron con la World Pheasant Association, que les permitió hacer pruebas de ADN y comparar la apariencia con la presunción de pureza genética. En 2006 publicaron en Aviornis cuatro tablas para distinguir puros e híbridos de los dos sexos, y empezaron a reproducir con 98 machos y 67 hembras de tres orígenes (las líneas de Pekín y del zoo de San Diego, aportadas por Michel Klat, y la del zoo de Berlín, de Piet Kreeft); desde 2003 los ejemplares puros se anillan con una anilla «5000»; en 2013 se sumaron Hernández García y otros criadores, para crear una población viable de dorado puro en aviarios españoles (Hernández García, 2014).
En el Lady Amherst, en cambio, los resultados fueron mucho peores: se identificaron cepas puras de dorado, pero de Lady Amherst solo un ejemplar, un macho nacido en Bélgica de un huevo importado de China, fue confirmado como puro por el control europeo de ADN, y no crió en 2006 con la hembra que se le había asignado (Hernández García, 2014). La cronología del libro mezcla fechas (sitúa en 2006 el arranque con 98 machos y 67 hembras y, a la vez, enumera como «comienzos» las 72 aves «limpias» de 2000, las 117 de 2001 y las 220 de 2002), y por eso se dan aquí sin reordenarlas (Hernández García, 2014). Recomendación editorial: mantener separados los dorados y los Lady Amherst, no mezclar líneas de origen desconocido y comprobar con un criadero de confianza el origen de cualquier ave antes de usarla para criar.
Hibridación y conservación: líneas puras, variedades y programas de cría
Cuándo un cruce deja de ser una curiosidad y se convierte en un problema: los casos del faisán de Edwards, de los dorados y los Lady, de los pavos reales, de los gallos y de los faisanes comunes.
La hibridación afecta a la conservación de los faisanes por dos caminos distintos. En cautividad estropea las líneas de las especies que se intentan salvar, porque un ave con sangre ajena deja de servir como reproductor de la suya. En libertad, la mezcla con aves domésticas o liberadas puede diluir el patrimonio genético de las poblaciones silvestres. Las fuentes de este apartado son sobre todo recientes (Fuller y Garson, 2000; Corder; Hernández García, 2014), pero recogen casos que vienen de lejos.
| Caso | Qué ocurre | Medidas que citan las fuentes | Fuentes |
|---|---|---|---|
| Faisán de Edwards (y vietnamita) | Línea cautiva criada a partir de aves de los años veinte; mezclada con Swinhoe; casi tres cuartas partes de las aves del libro genealógico internacional hubo que excluirlas por un solo cruce accidental | Libro genealógico; análisis de ADN; exclusión de las líneas híbridas; programa EEP | (Corder, s. f.; Fichas de la web, 2026; Fuller y Garson, 2000; Hernández García, 2014) |
| Faisán imperial | Forma de origen híbrido; en cautividad solo quedaron aves de sangre mezclada | Experimentos de cruce y retrocruce en Amberes y Holanda; sin población cautiva pura | (Howman, 1993; Johnsgard, 1986; Roles, 1976) |
| Dorado y Lady Amherst | Durante más de un siglo se cruzaron; hoy cuesta encontrar Lady puros y dorados de línea limpia | Proyecto Dorados 5000 (criadores belgas y españoles), pruebas de ADN, tablas para distinguir puros e híbridos | (Delacour, 1977; Gerrits, 1974; Hernández García, 2014) |
| Tragopán satyr | Aves mal marcadas por antiguos cruces con el tragopán de Temminck; hembras con puestas excesivas sospechosas de vigor híbrido | Importación de aves silvestres por un consorcio de criadores estadounidenses; cuidado en la selección de reproductores | (Howman, 1993; Roles, 1976) |
| Pavo real verde | Cruce con el azul para obtener más crías; aves cautivas con ascendencia azul | Comprobar la pureza antes de liberar; evitar cruces | (Fichas de la web, 2026; Hernández García, 2014; Wang et al., 2025) |
| Gallos silvestres (rojo, de Sonnerat, de Lafayette, verde) | Cruce con gallinas domésticas: riesgo de contaminar la genética silvestre; en Java y Bali, capturas de machos para producir bekisar | Estudios genéticos; los programas de la EAZA los dejan en «investigación taxonómica y genética» | (del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2013; Hernández García, 2014; Madge y McGowan, 2002) |
| Faisán verde y faisán común | Cruce constante en cautividad: es muy difícil hallar verdes puros; donde se introducen juntos, el verde sale perdiendo | Sin programa específico | (del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986) |
| Faisán común en Europa y Japón | Liberaciones con subespecies mezcladas y aves criadas en granja; en Japón se cruzaron las subespecies locales con la coreana para soltar más aves | Estudios genéticos de las poblaciones introducidas | (Ashrafzadeh et al., 2021; Fuller y Garson, 2000) |
La selección de casos se limita a los que documentan las obras consultadas; no es un diagnóstico del estado actual de cada línea.
Edwards, vietnamita e imperial: tres formas, una cautividad difícil
El caso del faisán de Edwards es el más claro de lo que cuesta una hibridación accidental. Fuller y Garson (2000) cuentan que la población cautiva desciende de aves capturadas en los años veinte, que se ha cruzado con el faisán de Swinhoe (Delacour, 1977; E. Randi) y que se hace todo lo posible por identificar y excluir los híbridos con Swinhoe; el libro genealógico internacional contaba con 902 aves en diciembre de 1998, y el del vietnamita, de origen reciente, con 65 (Fuller y Garson, 2000). La ficha del faisán de Edwards de esta web actualiza la cifra a 1.033 en diciembre de 2003 y dice que se examinó la línea materna y se purgaron los híbridos de la población cautiva (Fichas de la web, 2026). Corder recuerda el precio del error: casi tres cuartas partes de las aves del libro genealógico internacional del Edwards, una especie en peligro crítico, hubo que excluirlas por un único cruce accidental (Corder, s. f.). Johnsgard (1986) daba para el Edwards un censo cautivo de 690 aves en 1982, y para el imperial, de 24 (Johnsgard, 1986).

Fuller y Garson advierten, además, de que no debe intentarse repoblar el hábitat con aves de cautividad mientras no se reduzcan sustancialmente la caza y la explotación de la selva, y de que, si la selva restante desaparece, la repoblación será de todos modos imposible hasta que existan bosques parecidos (Fuller y Garson, 2000). El programa de la EAZA recogido por Hernández García (2014) (año 2000) clasifica al Edwards como EEP, la categoría más intensiva, y al vietnamita como «seguimiento de población» (Hernández García, 2014).
Programas y libros genealógicos
El plan de acción de 2000 reúne el problema en uno de sus proyectos estratégicos, el de la gestión eficaz de las poblaciones cautivas: crear libros genealógicos para más especies, depurar las poblaciones cautivas de líneas híbridas y diseñar programas de cría óptimos, con el fin de reducir la consanguinidad y el cruce entre poblaciones sin perder diversidad genética (Fuller y Garson, 2000). Cita como candidatas a esa gestión con libro genealógico al faisán de Elliot y a los faisanes pavo de Sumatra, de Germain y de Palawan, y pide ampliar el análisis de ADN para identificar y eliminar líneas híbridas a más especies, y aplicar las mismas técnicas para investigar el grado real de mezcla entre el gallo doméstico y los gallos silvestres (Fuller y Garson, 2000). Otro proyecto pide una revisión taxonómica de varios grupos de faisanes donde la hibridación complica los límites (imperial, Edwards y vietnamita; el complejo plateado–kalij; los orejudos) (Fuller y Garson, 2000). Hernández García (2014) explica que la conservación en cautividad es un camino para conservar la especie, no un fin en sí mismo, y describe los programas europeos: el EEP, el más intensivo, con libro genealógico, análisis demográficos y genéticos y recomendaciones de intercambio de aves; y el ESB, que se limita a recoger datos de nacimientos, muertes y traslados (Hernández García, 2014).
Gallos silvestres y gallinas domésticas
El caso de los gallos es de naturaleza distinta, porque la otra mitad del cruce es el ave doméstica. El gallo rojo se adapta bien a los entornos humanos y se encuentra a menudo en zonas agrícolas, lo que lo hace vulnerable a hibridar con el gallo doméstico, que de él procede; eso puede amenazar la pureza genética de las poblaciones silvestres, según Fuller y Garson; y como el plumaje de eclipse del macho, considerado indicador fiable del genotipo silvestre, no se observó en una pequeña serie de pieles de museo recogidas en Asia en el siglo XIX, Peterson y Brisbin sostienen que el verdadero gallo rojo quizá sea hoy escaso (Fuller y Garson, 2000). Los otros tres gallos (Sonnerat, Lafayette y verde) están potencialmente expuestos por la misma vía, ya que todos producen híbridos fértiles con el rojo (Fuller y Garson, 2000). Madge y McGowan añaden que en la península malaya el riesgo de contaminación con aves domésticas es mayor, y que en la costa norte de Bali se cruzan machos de gallo verde capturados con gallinas domésticas para los concursos de canto, con el nombre local de bekisar; esa práctica amenaza con afectar seriamente a las poblaciones silvestres de algunas zonas (Madge y McGowan, 2002). El Handbook cuenta que esa práctica era antes exclusiva de los habitantes de las islas Kangean, que hoy aldeas enteras de la costa norte de Bali la siguen y retiran muchos machos de las poblaciones, y que en 1980 el híbrido fue declarado ave provincial de Java oriental, con el consiguiente aumento del comercio (del Hoyo et al., 1994). Hernández García recoge, en el primer volumen, que el bekisar se ha usado como emblema del este de Java por decreto del Ministerio del Interior y que, como consecuencia, las capturas para hibridación han disminuido las poblaciones silvestres; añade que el gallo verde, a diferencia del de Sonnerat, no se hibrida con el rojo en la naturaleza, aunque sí con los gallos domésticos (Hernández García, 2013).
Faisanes comunes: liberar sin saber qué se libera
El faisán común es el faisán más introducido y sostiene una gran industria cinegética: Fuller y Garson cuentan más de 22 millones de aves cazadas al año en Europa y unos 9,5 millones en Norteamérica (Fuller y Garson, 2000). Ashrafzadeh y colaboradores (2021) recuerdan que mover una especie fuera de su área puede mezclar taxones por hibridación y diluir la diversidad autóctona; que las poblaciones europeas descienden de varias subespecies, introducidas desde el Cáucaso, probablemente a partir del año 500–800 de la era común y, mucho más tarde, desde Mongolia y China en el siglo XVIII; y que la suelta de híbridos entre subespecies en el sudeste de Europa podría llevar a las locales a la extinción por mezcla genética (Ashrafzadeh et al., 2021). Delacour cuenta un caso concreto, de principios del siglo XX: el faisán del Príncipe de Gales, una forma de alas blancas de Asia central, se importó en 1902 y se soltó en Hampshire al año siguiente para repoblar los cotos, de donde desapareció pronto por hibridación con los faisanes de cuello negro y otros; una línea pura se mantuvo en pajareras hasta 1914, y al final de la Primera Guerra Mundial ya no existía (Delacour, 1977). Elliot (1872) lamentaba que en Inglaterra casi no se encontraban faisanes comunes sin sangre de collar chino o de faisán verde, y que esa mezcla no mejoraba a ninguna de las especies (Elliot, 1872 (vol. II)). En Japón, Fuller y Garson mencionan que se ha cruzado a los faisanes autóctonos (versicolor, robustipes, tanensis) con la subespecie coreana (karpowi) para tener más aves que soltar (Fuller y Garson, 2000).
Mutantes, variedades e híbridos: no son lo mismo
Las variedades de color de los faisanes ornamentales suelen proceder de mutaciones, no de cruces, aunque la historia de varias de ellas se ha confundido con la de los híbridos. Gerrits (1974) conocía solo dos mutaciones del dorado, la de garganta oscura y la amarilla, y afirmaba que todos los dorados de dibujo o color distinto eran el resultado de cruzar, quizá con selección, con el Lady Amherst; la de garganta oscura, escribía, no debe tener reflejo verde metálico, o sería un dorado híbrido corriente (Gerrits, 1974). Green-Armytage (2002) cuenta más de una docena de mutaciones del dorado, desde la de garganta oscura, de los años 1860, hasta el dorado amarillo (de Ghigi), que Ghigi fijó a partir de una mutación recibida en 1952 (Green-Armytage, 2002). Beebe (1922) recoge la opinión de un criador, Thomas (1911), para quien la garganta oscura era una mutación recesiva surgida de híbridos que cría pura, y comenta que pudo aparecer lo mismo en el cruce de macho de Lady y hembra de dorado que en una pareja normal de dorados en cautividad (Beebe, 1922). Delacour (1977) lo ilustra con el faisán común melánico: la mutación oscura se tomó durante un tiempo por un híbrido de común y verde, aunque el híbrido real es completamente distinto (Delacour, 1977). Y Delacour advierte de que hay que cuidar de que no se haya introducido sangre de Lady en los dorados de garganta oscura, y de que las demás supuestas variedades del dorado son híbridos con el Lady en distinta proporción que algunos criadores han intentado fijar por selección (Delacour, 1977).
Hay, por fin, cruces deliberados con intención de crear variedades. Según el relato de Clifton Nicholson, de Roughwood Volières, que reproduce la ficha del Lady Amherst, a lo largo de más de treinta años se cruzó el dorado de garganta oscura con Lady puros de otras líneas, y se volvió a cruzar con estos repetidamente, con el fin de transferir el gen oscuro al Lady y obtener un Lady oscuro casi puro; el propio autor admite que, pese a conocer el daño que se hace en el mundo a las aves híbridas, la hibridación era el único camino que tenía (Fichas de la web, 2026). Es un ejemplo de hibridación deliberada para crear una variedad, justo lo que desaconsejan Corder y los manuales (Corder, s. f.).
Zoogeografía de los faisanes: dónde viven y dónde se concentran
Un grupo de la región oriental con una sola especie africana: límites, reparto por regiones y los centros de diversidad del Himalaya, Yunnan, Annam y la Sonda.
Los faisanes son un grupo asiático. Johnsgard (1986) lo resume sin matices: la subfamilia, con las perdices incluidas, está centrada en la región zoogeográfica oriental, y, salvo el caso anómalo del pavo del Congo, en África, todos los faisanes viven en Asia, más o menos entre las proximidades del mar Negro por el oeste y Japón por el este, y desde Mongolia por el norte hasta las islas menores de la Sonda por el sur (Johnsgard, 1986). Este apartado describe ese reparto con los datos de las obras consultadas; el siguiente se ocupa de las islas, las barreras y los endemismos. No se dibujan mapas: los de Johnsgard (figuras 4 a 8, de densidad de especies, vegetación, lluvias, ríos y cordilleras) existen en su libro, pero no se leen en el texto disponible, y esta guía solo describe lo que los textos dicen.
Los límites del grupo
Fuller y Garson (2000) fijan los extremos con ayuda de especies concretas: el límite meridional está en Flores, al este de Java, a unos 8° S, con el gallo verde (el Handbook, 1994, lo sitúa en Java, también a 8° S, con el gallo verde y el pavo real verde); el septentrional, a unos 50° N en el nordeste de China, con el koklass, el faisán común, el faisán venerado y el orejudo azul; el occidental, sin contar el pavo del Congo ni las poblaciones introducidas, está en el Cáucaso, a unos 45° E, con el faisán común; y el oriental, en Taiwán (121° E) con el mikado y el faisán de Swinhoe, y en Japón (145° E) con el cobrizo y el faisán común, que en esta lista incluye las formas japonesas, es decir, el faisán verde (del Hoyo et al., 1994; Fuller y Garson, 2000). Los faisanes aparecen además a lo largo de toda la cadena del Himalaya (Fuller y Garson, 2000).
Con la terminología de las fuentes, casi todos los faisanes son de la región oriental, y solo dos salen de ella. El faisán común, el más extendido, tiene según Kayvanfar y colaboradores una distribución natural en la región paleártica, desde el este y el sureste de Europa (al este del mar Negro) hasta el extremo oriental de Siberia, y por el sur hasta Indochina y Afganistán (Kayvanfar et al., 2017); es además el único faisán de la Unión Soviética, según Johnsgard (Johnsgard, 1986). Y el pavo del Congo, que Delacour llama «etíope», es el único africano, y vive en el centro y el centro-oriental del antiguo Zaire (del Hoyo et al., 1994; Delacour, 1977).
| Extremo | Límite | Especies que lo marcan | Fuente |
|---|---|---|---|
| Sur | Flores (Indonesia), 8° S, según Fuller y Garson; Java, 8° S, según el Handbook | Gallo verde; pavo real verde (Handbook) | (del Hoyo et al., 1994; Fuller y Garson, 2000) |
| Norte | Nordeste de China, unos 50° N | Koklass, faisán común, venerado, orejudo azul | (del Hoyo et al., 1994; Fuller y Garson, 2000) |
| Oeste | Cáucaso, unos 45° E (sin el pavo del Congo ni las poblaciones introducidas) | Faisán común | (del Hoyo et al., 1994; Fuller y Garson, 2000) |
| Este | Taiwán, 121° E; Japón, 145° E | Mikado y Swinhoe (Taiwán); cobrizo y faisán común o verde (Japón) | (del Hoyo et al., 1994; Fuller y Garson, 2000) |
| África | Cuenca del Congo (Zaire central y centro-oriental, según el Handbook) | Pavo del Congo, único faisán africano | (del Hoyo et al., 1994; Johnsgard, 1986) |
Latitudes y longitudes tal como las dan las obras citadas.
Cuántos faisanes tiene cada región
Johnsgard da cifras por regiones que muestran dónde se concentra el grupo y cómo contrasta con las perdices. Más de una cuarta parte de las unas 174 especies de la subfamilia (45) son del subcontinente indio, y en China hay más faisanes que perdices, mientras que en la Unión Soviética hay un solo faisán, y en África subsahariana un faisán y 40 perdices más, casi todas francolines (Johnsgard, 1986). Concluye que el Himalaya y sus desiertos asociados han funcionado como una barrera eficaz a la expansión de los faisanes hacia el norte (Johnsgard, 1986).
| Región | Faisanes | Perdices y afines | Comentario de Johnsgard (1986) |
|---|---|---|---|
| Subcontinente indio | 18 | 27 | 45 especies de la subfamilia, más de una cuarta parte de las 174 que cuenta (Ali y Ripley, 1978) |
| Himalaya (Nepal) | 8 | 14 | Fleming y Bagdel (1976); incluye los géneros más adaptados a la alta montaña (Ithaginis, Tragopan, Pucrasia) |
| Tíbet | 10 | 12 | Vaurie (1972) |
| China | 26 | 22 | Cheng y colaboradores (1978) |
| Sudeste asiático (Birmania, Indochina, península malaya) | 23 especies en 13 géneros | 16 especies en 8 géneros | King y Dickinson (1975); más ricas en faisanes que en perdices, en una superficie algo menor que la del subcontinente indio |
| Unión Soviética | 1 | 11 especies en 6 géneros | Dementiev y Gladkov (1967) |
| África subsahariana | 1 (un solo género) | 40, casi todas francolines | Snow (1968) |
Los totales de cada región incluyen las especies que comparte con las regiones vecinas, y no suman 53 ni 49; son las cifras de Johnsgard (1986), anteriores a las divisiones de especies posteriores. (Johnsgard, 1986)
El reparto según el apéndice de la web
El apéndice taxonómico de esta web asigna a cada una de las 53 especies una región de distribución. Es una clasificación práctica, no una regionalización formal: por ejemplo, agrupa en «Sudeste asiático» a las especies de Taiwán (Swinhoe y mikado), que otros autores tratarían aparte. La tabla muestra cómo se reparten y cuántas están amenazadas (Apéndice de la web, 2026).
| Región (apéndice de la web) | Especies | Géneros | Menor preocupación | Casi amenazadas | Amenazadas (VU, EN, CR) | No evaluadas |
|---|---|---|---|---|---|---|
| Himalaya | 10 | 7 | 7 | 0 | 3 | 0 |
| China | 11 | 6 | 7 | 0 | 4 | 0 |
| Sudeste asiático | 25 | 7 | 6 | 4 | 14 | 1 |
| Sur de Asia | 3 | 2 | 3 | 0 | 0 | 0 |
| Japón | 2 | 2 | 2 | 0 | 0 | 0 |
| Asia central y oriental | 1 | 1 | 1 | 0 | 0 | 0 |
| África | 1 | 1 | 0 | 1 | 0 | 0 |
| Total | 53 | 16 | 26 | 5 | 21 | 1 |
Elaborada con taxonomia.csv y el apéndice de la web (revisión del 21 de octubre de 2026). Los géneros de cada fila no suman 16 porque varios aparecen en más de una región. La suma de especies amenazadas es 3 CR, 5 EN y 13 VU = 21; las 14 del Sudeste asiático son 3 CR, 4 EN y 7 VU.
Catorce de las 21 especies amenazadas viven en el sudeste de Asia, y ninguna de las del sur de Asia, Japón y Asia central y oriental lo está (Apéndice de la web, 2026). Fuller y Garson señalan que los faisanes dependen en su mayoría de bosques densos, lo que los hace muy vulnerables a la deforestación y a la degradación del hábitat, y que, como aves grandes y terrestres, se cazan con frecuencia para comer, por las plumas y por otros usos (Fuller y Garson, 2000).
Los centros de diversidad
Johnsgard distingue en el mapa de densidad de especies varias zonas con cinco o más faisanes, que son las que explican la forma del reparto. La primera y más extensa es el Himalaya, con ocho especies, que incluye los géneros más adaptados a la montaña y más parecidos a las perdices (Ithaginis, Tragopan, Pucrasia); la segunda, el entorno del norte de Birmania y Yunnan, en el alto de los ríos Yangtsé, Mekong, Salween e Irrawaddy, donde los géneros tropicales (Polyplectron, Pavo) conviven en valles de montaña de zona templada con géneros montanos como Tragopan, y hay seis especies; la tercera, Annam (hoy Vietnam central), con ocho especies y dos, el imperial y el Edwards, de áreas limitadas más que las de cualquier otro faisán continental; y la cuarta, la península malaya, con otras ocho especies, un endemismo propio (el faisán pavo de Rothschild) y otra especie compartida solo con Sumatra (Johnsgard, 1986). Esta última zona sería, según Johnsgard, el centro de diversidad evolutiva de los géneros más especializados de aspecto de pavo real (Pavo, Argusianus, Rheinardia, Polyplectron), igual que el Himalaya habría sido el hogar ancestral de los géneros más parecidos a las perdices (Johnsgard, 1986). Delacour (1977) pensaba, por su parte, que el centro de dispersión del grupo es probablemente el Himalaya oriental junto con el oeste de China (Delacour, 1977).
| Zona | Johnsgard (1986) | Delacour (1977) |
|---|---|---|
| Himalaya (central u oriental) | 8 especies (Johnsgard, 1986) | 8 especies en el Himalaya oriental, desde el pie de monte hasta la nieve: faisán ensangrentado, satyr, koklass, monal del Himalaya, gallo rojo, kalij, pavo gris y pavo real azul; el orejudo blanco aparece al otro lado de la divisoria, en el Tíbet (Delacour, 1977) |
| Alto Birmania y Yunnan | 6 especies (Johnsgard, 1986) | 10 especies en la provincia de Yunnan: ensangrentado, tragopán de Temminck, koklass, monal de Sclater, gallo rojo, orejudo blanco, faisán de Hume, faisán común, Lady Amherst y pavo real verde (Delacour, 1977) |
| Annam (Vietnam central) | 8 especies, incluidos el imperial y el Edwards (Johnsgard, 1986) | 7 especies entre el nivel del mar y 4.000 pies (unos 1.200 m): gallo rojo, plateado, Edwards o imperial, prelado, pavo gris, argus crestado y pavo real verde (Delacour, 1977) |
| Península malaya | 8 especies, con el faisán pavo de Rothschild como endémico (Johnsgard, 1986) | 8 especies: gallo rojo, noble, cola rosa, pavo de Rothschild, pavo malayo, argus crestado, gran argus y pavo real verde (Delacour, 1977) |
| Sumatra | 7 especies, con 2 endemismos (faisán de Salvadori y faisán pavo de Sumatra) (Johnsgard, 1986) | Algo menos rica que Malaya (Delacour, 1977) |
| Borneo | 5 especies, con 2 endemismos (el faisán de Bulwer y el faisán pavo de Borneo, que Delacour consideraba solo subespecie diferenciada) (Johnsgard, 1986) | Algo menos rica que Malaya (Delacour, 1977) |
Las áreas de Johnsgard y de Delacour no son idénticas: Delacour cuenta por provincias o por franja de altitud y Johnsgard por zonas de alta densidad en el mapa. Johnsgard cita «Borneo y Sumatra» con «siete y cinco especies respectivamente»; en la tabla se han puesto las cifras al revés (Sumatra 7, Borneo 5) porque concuerdan con las especies que el Handbook asigna a cada isla (del Hoyo et al., 1994; Johnsgard, 1986).
Qué condiciona el reparto: lluvia, bosque y altitud
Al comparar el mapa de densidad con los de vegetación y lluvias, Johnsgard concluye que las zonas de mayor densidad de faisanes son las que reciben al menos 60 pulgadas de lluvia al año (unos 1.500 mm) y están al menos en parte arboladas, con bosques de montaña templados o tropicales (Johnsgard, 1986). Delacour agrupa los géneros según el nivel en el que viven: siete géneros tropicales (Gallus, Lophura, Polyplectron, Rheinardia, Argusianus, Pavo y Afropavo) en altitudes bajas y medias; seis (Ithaginis, Tragopan, Pucrasia, Lophophorus, Crossoptilon y Catreus) solo en montañas altas y mesetas; y tres (Syrmaticus, Phasianus y Chrysolophus) en zonas templadas, a altitudes bajas y medias en el norte de su área y más altas en el sur (Delacour, 1977). El Handbook añade que casi todos los faisanes viven en bosques o en zonas semiarboladas, desde los bosques tropicales siempre húmedos hasta los de matorral templado, con la excepción del faisán Wallich, que habita laderas herbosas con riscos dispersos (del Hoyo et al., 1994).
Islas, fronteras y barreras: aislamiento y especiación
La plataforma de la Sonda, la línea de Wallace, los ríos que separan especies hermanas, las áreas de aves endémicas y los casos de especiación que las fuentes explican.
Dos especies pueden separarse por un mar, por un río, por una cordillera o por unos cientos de metros de altitud, y el grupo de los faisanes ofrece ejemplos de las cuatro cosas. Este apartado reúne lo que dicen las fuentes: cómo la última glaciación acercó entre sí las islas de la Sonda, qué endemismos tienen las islas, qué ríos y montañas separan a especies hermanas y qué explica el reparto actual de algunas especies concretas.
La plataforma de la Sonda y la línea de Wallace
Una parte de las islas con faisanes está unida al continente por una plataforma poco profunda. Johnsgard explica que toda la región que va de Malaya a Borneo se asienta sobre la plataforma continental de Asia (la plataforma de la Sonda) y está separada del continente por mares de profundidad actual muy inferior a 300 m; si en los periodos de máxima glaciación el nivel del mar era al menos 200 m más bajo, casi todo el área actual de los faisanes asiáticos estaría entonces dentro del continente, incluidas Ceilán, Taiwán, las Grandes Sondas (salvo Célebes) y Palawan (Johnsgard, 1986). La línea de Wallace, que separa Borneo de Célebes, separa también las pautas de distribución de los faisanes y de los megápodos, que llegan a las islas costeras de Borneo y se extienden desde allí por buena parte de la región australiana (Johnsgard, 1986). El archipiélago de las Sondas (Grandes y Pequeñas, más Borneo) habría favorecido, además, la especiación en ese sector (Johnsgard, 1986).
Islas y formas insulares
La tabla reúne las formas que las obras asocian a una isla concreta. Es un resumen de lo que dicen el Handbook (1994), Johnsgard (1986) y el plan de acción de la UICN (2000); la lista no es exhaustiva.
| Isla o archipiélago | Formas asociadas | Fuente |
|---|---|---|
| Taiwán | Faisán de Swinhoe (centro de la isla), mikado (montañas del centro) y la subespecie formosanus del faisán común | (del Hoyo et al., 1994; Kayvanfar et al., 2017) |
| Japón | Faisán verde (3 subespecies) y cobrizo (5 subespecies, en Honshu, Shikoku y Kyushu); el faisán común introducido no sobrevive donde vive el verde; el verde llegó probablemente a Japón por Corea, cuando esas tierras aún estaban unidas | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Hainan | Plateado whiteheadi (bosques húmedos de montaña) y faisán pavo gris de Hainan katsumatae; los dos, endémicos de la isla y amenazados por la tala | (Fuller y Garson, 2000; Johnsgard, 1986) |
| Sri Lanka | Gallo de Lafayette; el pavo real azul llega también a la isla | (del Hoyo et al., 1994) |
| Java, Bali y Pequeñas Sondas | Gallo verde (desde Java hasta Flores, Sumba y Alor) y la subespecie nominal del pavo real verde, que aún vive en Java y se ha extinguido en la península malaya | (del Hoyo et al., 1994; Hernández García, 2013) |
| Sumatra | Faisán de Salvadori y faisán pavo de Sumatra, endemismos de montaña; el Handbook trata el faisán de Sumatra (hoogerwerfi) como subespecie y Fuller y Garson lo tratan como especie | (del Hoyo et al., 1994; Fuller y Garson, 2000; Johnsgard, 1986) |
| Borneo | Faisán de Bulwer y faisán pavo de Borneo (que Delacour consideraba solo una subespecie diferenciada); formas propias del noble y del cola rosa; gran argus grayi | (del Hoyo et al., 1994; Fuller y Garson, 2000; Johnsgard, 1986) |
| Palawan | Faisán pavo de Palawan, endémico de la isla (suroeste de Filipinas) | (del Hoyo et al., 1994) |
| Península malaya | Faisán pavo de Rothschild, endémico de las montañas; argus crestado nigrescens (hoy tratado por algunos autores como especie) | (del Hoyo et al., 1994; Fuller y Garson, 2000; Johnsgard, 1986) |
Según Johnsgard, Ceilán, Taiwán, las Grandes Sondas (salvo Célebes) y Palawan estuvieron unidas al continente en los periodos de nivel bajo del mar; para Japón, Johnsgard solo dice que el verde llegó cuando había conexión con Corea.
Ríos, valles y cordilleras como fronteras
En el continente, la mayoría de los límites entre especies hermanas siguen un río o un valle. La tabla recoge los casos que mencionan las fuentes.
| Barrera | Qué separa | Fuente |
|---|---|---|
| Río Godavari (India) | Gallo rojo (al nordeste) y gallo de Sonnerat (al suroeste), diferenciados a ambos lados del río | (Johnsgard, 1986) |
| Río Irrawaddy (Birmania) | Kalij del oeste y plateados del este; las subespecies del kalij al este del río están más emparentadas con algunas del plateado que con las del oeste del río | (del Hoyo et al., 1994; Delacour, 1977) |
| Ríos Indus y Sankosh | El kalij de cresta blanca (hamiltoni) se extiende desde el río Indus hacia el este, y el de dorso negro (melanota) llega hasta el río Sankosh, en Bután | (del Hoyo et al., 1994) |
| Himalaya y los desiertos que lo flanquean | Freno a la expansión de los faisanes hacia el norte | (Johnsgard, 1986) |
| Istmo de Kra (península malaya) | Faisán pavo malayo (casi solo al sur del istmo) y faisán noble rufa (desde el istmo hacia el sur); el gran argus aparece desde unos 14° N hacia el sur | (del Hoyo et al., 1994) |
| Valles anchos del Himalaya oriental | Área del tragopán de Blyth y área del de Temminck, aunque con una posible zona de contacto | (Delacour, 1977; Johnsgard, 1986) |
| Línea de Wallace (entre Borneo y Célebes) | Faisanes y megápodos | (Johnsgard, 1986) |
| Altitud y hábitat | Dorado (400–1.700 m) y Lady Amherst (1.500–3.000 m) en el suroeste de China | (Fichas de la web, 2026; Yang et al., 1992) |
| Desierto de Dzungaria, cordillera de Kunlun, sistema Pamir-Alay | Dzungaria habría frenado la dispersión de los grupos occidentales del faisán común hacia el este; Kunlun, la de la cuenca del Tarim hacia la India; el Pamir-Alay aún no era una gran barrera hasta el Pleistoceno medio | (Kayvanfar et al., 2017) |
Las barreras que se citan no son absolutas: en varios de los casos (kalij y plateado, gallos, dorado y Lady Amherst) hay zonas de contacto con algún cruce.
Áreas de aves endémicas en el Handbook
Para varias especies de área restringida, el Handbook (1994) indica en qué área de aves endémicas (Endemic Bird Area, EBA) viven. En la tabla se recogen las áreas que menciona el texto de los faisanes; no todas las especies llevan esa referencia en la edición consultada, de modo que la ausencia no significa que una especie esté fuera de un EBA.
| Área de aves endémicas | Faisanes que el Handbook sitúa en ella |
|---|---|
| Himalaya oriental | Tragopán de Blyth; monal chino |
| Montañas de Fujian | Tragopán de Cabot; faisán de Elliot |
| Montañas de Shanxi | Orejudo marrón |
| Isla de Taiwán | Mikado |
| Tierras bajas de Annam | Imperial; faisán de Edwards; argus crestado (ocellata) |
| Cochinchina | Faisán pavo de Germain; argus crestado (ocellata) |
| Sumatra y península malaya (por encima de 600 m) | Faisán de Salvadori; faisán pavo de Sumatra; faisán pavo de Rothschild; argus crestado malayo (nigrescens) |
| Isla de Palawan | Faisán pavo de Palawan |
| Sri Lanka | Gallo de Lafayette |
Los nombres de las áreas son traducciones de los que usa el Handbook (1994).
Cómo se separan las especies: algunos casos
Las obras consultadas ofrecen explicaciones para varios casos concretos de especiación, que se resumen a continuación; casi todas son propuestas de los autores, no hechos comprobados.
- Gallo rojo y gallo de Sonnerat
- Se habrían diferenciado a ambos lados del río Godavari, el de Sonnerat adaptado a un medio más seco de matorral y el rojo a otro más húmedo de selva mixta y praderas (Johnsgard, 1986).
- Los monales
- Johnsgard ve en el monal de Sclater un pariente muy próximo del monal del Himalaya, probablemente separado de él hace poco, y recoge la propuesta de Davison de una separación en el Pleistoceno (Johnsgard, 1986).
- Los orejudos
- Johnsgard recoge que Cheng y colaboradores (1978) proponen una separación temprana del linaje del orejudo blanco y una división posterior del azul y del marrón, y que Delacour (1945) veía al blanco como el menos especializado, al azul como el más especializado y al marrón como intermedio (Johnsgard, 1986). La zona donde se encuentran el azul y el blanco es la de los supuestos híbridos silvestres de Beebe (véase el apartado sobre libertad) (Beebe, 1918).
- El faisán común
- El estudio de Kayvanfar y colaboradores (2017) sitúa el origen probable del faisán común en los bosques del sureste de China: la subespecie elegans, del noroeste de Yunnan, ocupa la posición basal entre 17 subespecies estudiadas; la divergencia inicial se habría dado hace unos 3,4 millones de años y la dispersión hacia el oeste de Eurasia, hace entre 2,5 y 1,8 millones; el aislamiento inicial por vicarianza y la mezcla posterior por la expansión reciente explicarían que las subespecies definidas por el plumaje no coincidan con las genéticas (Kayvanfar et al., 2017). Yunnan y Sichuan serían refugios de la última glaciación, rodeados por montañas del Himalaya y del Hengduan y por grandes bosques (Kayvanfar et al., 2017).
- Imperial y Edwards
- Johnsgard (1986) los considera formas que han alcanzado apenas el rango de especie, parientes de un antecesor tipo kalij (Johnsgard, 1986); para los autores recientes, el imperial ni siquiera sería eso, sino un híbrido (véase el apartado del imperial) (Fuller y Garson, 2000; Madge y McGowan, 2002).
- El pavo del Congo
- Su presencia en África, tan lejos de los demás faisanes, se explicó (Lowe, 1939) por el aislamiento de una forma ancestral en el suroeste de Europa en el Mioceno, que habría sido empujada hacia el sur, hasta África occidental, con la llegada de periodos más fríos en Europa (Johnsgard, 1986). La ficha del pavo real verde recoge, sobre el género Pavo y no sobre el pavo del Congo, un trabajo de Boev y Koufos (2000) que describe un hueso de Pavo bravardi del Plioceno de Grecia y concluye que el género tuvo una distribución bastante buena en el sudoeste de Europa en el Plio-Pleistoceno (Fichas de la web, 2026).
- Superespecies
- Delacour (1977) considera que forman superespecies el kalij y el plateado, el dorado y el Lady Amherst, el imperial, el Edwards y el Swinhoe, los faisanes pavo gris y de Germain, los orejudos marrón y azul, Elliot y Hume, y todas las formas del faisán común; Johnsgard (1986) añade a los grupos de tragopanes (satyr, Temminck y occidental, por un lado; Blyth y Cabot, por otro), al orejudo marrón y el blanco como alospecies, al faisán común y al verde, a los faisanes pavo malayo y de Borneo y a los dos pavos reales (Delacour, 1977; Johnsgard, 1986).
Elliot (1872) describió Phasianus elegans como especie válida, y razonó que no podía ser un híbrido porque vive en Yunnan, lejos de las especies a las que se parece (Elliot, 1872 (vol. II)); el estudio de Kayvanfar y colaboradores (2017) lo sitúa en la base de la genealogía de los faisanes comunes estudiados (Kayvanfar et al., 2017). Es un buen ejemplo de la utilidad de la geografía para decidir entre híbrido y forma propia.
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- Ashrafzadeh, M. R., Khosravi, R., Fernandes, C., Aguayo, C., Bagi, Z., Lavadinović, V. M., Szendrei, L., Beuković, D., Mihalik, B. y Kusza, S. (2021). Assessing the origin, genetic structure and demographic history of the common pheasant (Phasianus colchicus) in the introduced European range. Scientific Reports, 11: 21721. doi:10.1038/s41598-021-00567-1.
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association (Warrington). Folleto sin fecha de edición, redactado desde la práctica del Reino Unido; cita como obra más reciente sobre el tema la de Howman (1993) y la de Cooper (2003).
- del Campo Palacios, P. P. (2005). Tabla de hibridación de las especies de faisanes (versión 2.0, 24 de junio de 2005): traducción, adaptación y complemento de la tabla de hibridación de Johnsgard (1999, The Pheasants of the World, 2.ª ed., Smithsonian Institution Press). Criadero Chintaguay, Concepción (Chile), faisanes.cl; material de distribución gratuita. Se ha leído la matriz en la imagen de esa tabla (también reproducida en la sección de documentos de esta web, hibridacion.pdf, 2015); la obra de Johnsgard de 1999 no se ha consultado directamente.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vol. II. Nueva York: edición del autor (ejemplar digitalizado de la Biblioteca Estatal y Universitaria de Gotinga; láminas de dominio público).
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Hernández García, I. (2026). Fichas monográficas de especie de Faisanes del Mundo (en especial las del faisán común, el verde, el dorado, el de Lady Amherst, el Wallich, el argus de Rheinard, el gran argus, el ensangrentado, los tragopanes y los monales), cada una con sus fuentes. Fundación Zoo Koki, faisanesdelmundo.com. Se citan cuando el dato procede de una ficha y no se ha podido contrastar con la fuente que ella recoge.
- Hernández García, I. (2026). Taxonomía de los faisanes del mundo (Phasianidae: Phasianinae). Faisanes del Mundo, Fundación Zoo Koki (revisión del 21 de octubre de 2026). faisanesdelmundo.com/apendice.htm (y archivo taxonomia.csv del sitio).
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Kayvanfar, N., Aliabadian, M., Niu, X., Zhang, Z. y Liu, Y. (2017). Phylogeography of the Common Pheasant Phasianus colchicus. Ibis, 159: 430–442 (publicado en línea en 2016; doi:10.1111/ibi.12455). Se ha leído el artículo completo (PDF de la sección de documentos de esta web).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Robertson, P. (1997). Pheasants. Stillwater (Minnesota): Voyageur Press (1.ª ed. británica: Swan Hill Press, 1996).
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Wang, G. et al. (2025). Genomic evidence for hybridization and introgression between blue peafowl and endangered green peafowl and molecular foundation of leucistic plumage of blue peafowl. GigaScience, 14: giae124 (resumen). doi:10.1093/gigascience/giae124. Se cita a través de la ficha del pavo real azul de esta web.
- Yang Lan (杨岚) et al. (1992). 中国雉类 白腹锦鸡 [The Chinese Phasianids: Lady Amherst’s Pheasant]. Pekín: China Forestry Publishing House. Libro en chino con resumen en inglés; se cita solo a través de lo que recogen las fichas del faisán dorado y del faisán de Lady Amherst de esta web (datos de ADN mitocondrial).
Cómo citar este capítulo: Hernández García, I. (2026). Hibridación y patrones zoogeográficos de los faisanes. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/hibridacion.php.