El huevo y el embrión
Quién incuba, a qué temperatura y con qué humedad se forma un faisán, qué se ve en un huevo a lo largo de la incubación y cómo sale del cascarón.
El desarrollo de un faisán empieza cuando la hembra deja de poner y se sienta sobre sus huevos. Lo que viene después, desde el calor del parche incubatriz hasta el primer picotazo del polluelo en la cáscara, es el primer tramo de este capítulo, que reúne lo que cuentan los manuales clásicos, un folleto reciente de la World Pheasant Association, los registros de zoos y criadores y los documentos técnicos del autor de esta web (Corder, s. f.; Hernández García, 2009 (documentos); Johnsgard, 1986).
Aquí solo se tratan los aspectos de la incubación y de la cría que ayudan a entender cómo se desarrolla el ave. El manejo detallado (tipos de incubadora, criadoras, calendarios de alimentación y sanidad) corresponde al capítulo sobre avicultura. Las fuentes mezclan observaciones de aves silvestres con prácticas de cautividad, y la distinción se hace en el texto cada vez que cambia el cuadro.
La incubación natural
En todas las especies de faisanes de las que se tiene noticia incuba únicamente la hembra (Johnsgard, 1986). La incubación suele empezar con el último huevo de la puesta o con el penúltimo, de modo que los polluelos nacen casi a la vez (Johnsgard, 1986). El ritmo de puesta varía: la hembra del faisán común deja un huevo cada 1,4 días de media (Johnsgard, 1986); la del monal del Himalaya, uno cada tres días (Corder, s. f.); y en cautividad el faisán orejudo marrón y el koklas ponen en días alternos (Hernández García, 2013; Johnsgard, 1986). Corder señala que la mayoría de las hembras ponen a la misma hora, con frecuencia al atardecer, de manera que la incubación natural arranca esa misma tarde (Corder, s. f.). Durante toda la incubación la hembra mantiene los huevos, con su parche incubatriz, a unos 37,5 °C de media, y los voltea y recoloca sin cesar (Corder, s. f.).
Cuando el huevo eclosiona, la cáscara se deja en el nido y la hembra se lleva a los polluelos poco después (Johnsgard, 1986). En la práctica de cautividad, Corder añade un detalle que explica algunas discrepancias entre libros: la hembra que ha incubado sus propios huevos permanece todavía un día entero sentada sobre los polluelos recién nacidos, quizá para que absorban el saco vitelino y aprendan su voz antes de salir; por eso el criador que espera ver salir a los polluelos de una dorada al día 22 de incubación no los ve hasta el día 23, y de ahí que algunos libros den 22–23 días (Corder, s. f.).
Tamaño de la puesta y del huevo
Johnsgard sitúa el tamaño medio de puesta de los faisanes (tribu Phasianini) entre un huevo y doce, con valores medios por especie que van de ese mínimo a ese máximo, frente a los de las perdices (4–16 huevos), los urogallos (5–12) o las codornices del Nuevo Mundo (10–15) (Johnsgard, 1986). Las tablas de cría de Howman, que recogen el intervalo de huevos por puesta en cautividad, llegan a 15 (faisán ensangrentado y kalij) (Howman, 1993). Las puestas grandes son típicas de especies de campo abierto, de borde de bosque y comedoras de grano (Phasianus, Gallus), y las pequeñas, de hasta solo dos huevos, de las de bosque (Polyplectron, Argusianus); Johnsgard, siguiendo a Lack (1968), lo relaciona con la comida disponible para la hembra en la época de puesta (Johnsgard, 1986). El faisán pavo malayo es, según HBW, el único fásido que se sabe que pone un solo huevo, y entre los gallofaisanes (Lophura) las especies de bosque tropical ponen menos huevos que las más septentrionales: cuatro o cinco el cola rosa, siete de media el plateado (hasta doce en el suroeste de China) y entre seis y nueve, o incluso quince, el kalij del Himalaya occidental (McGowan, en HBW 2, 1994). HBW recoge, además, que la puesta del faisán Cheer llegaría a pesar, según algunos autores, el 63 % del peso de la hembra, una cifra que presenta como supuesta (McGowan, en HBW 2, 1994).
Johnsgard relaciona el tamaño del huevo con la precocidad: las especies con puestas de dos a cuatro huevos tienden a poner huevos proporcionalmente mayores que la media de la familia y, al menos en dos géneros, Tragopan y Argusianus, ese huevo proporcionalmente grande se correlaciona con polluelos especialmente precoces, algo que a su juicio tiene importancia ecológica en algunos hábitats (Johnsgard, 1986). Entre los pesos concretos que dan las fuentes, un huevo de faisán dorado de 30 g de ejemplo en el folleto de Corder (Corder, s. f.), un huevo de faisán común de 31 g fotografiado en el volumen II del autor (Hernández García, 2014) y un peso fresco medio de 40,4 g en los huevos del faisán pavo malayo medidos por Bruning (1983, citado por Johnsgard) (Johnsgard, 1986).
Antes de incubar: el huevo en espera
El embrión no se desarrolla mientras el huevo se guarda fresco, pero sí se deteriora la viabilidad, y por eso las fuentes coinciden en que no conviene demorarse. Corder recomienda guardar los huevos sobre una bandeja de arena limpia, con la punta hacia abajo y a unos 45°, a 12,7 °C (55 °F) y de 65 a 70 % de humedad, girando cada huevo 180° al día; cuanto mayor es la temperatura de almacenamiento, antes dejan de ser viables (Corder, s. f.). El criadero Chintaguay (Chile, 2005–06) aconseja de 13 a 15 °C y un 75 % de humedad relativa, con la punta fina hacia abajo, empezar a incubar al día siguiente de la puesta y siempre antes de que el huevo cumpla diez días (lo ideal, siete), porque la fertilidad cae deprisa (del Campo, 2006). Delacour (1978) pide guardarlos a una temperatura de 50 a 60 °F (de 10 a 15,6 °C en conversión de esta guía) y ponerlos a incubar antes de los diez días (Delacour, 1978). Howman (1993) añade que si un huevo supera los 72 °F (22,2 °C) el germen empieza a desarrollarse y, si no se pone a incubar, se enfría por la noche y el embrión muere (Howman, 1993).
Temperatura, humedad y volteo: lo que necesita el embrión
Las cifras que dan las fuentes para la incubación artificial son muy parecidas en la temperatura y distintas en la humedad. Corder la fija en 37,5 °C, que es la temperatura media del parche incubatriz, y en un 55 % de humedad, que es la que suelen recomendar los fabricantes (Corder, s. f.). Chintaguay pide 37,5 °C medidos a media altura del huevo durante toda la incubación y una humedad relativa de 55–60 % hasta tres días antes de la eclosión y de 65–70 % en los tres últimos días (del Campo, 2006). El autor de esta web da en sus fichas entre 37,6 y 37,8 °C (casi siempre 37,7 °C, es decir, 100 °F), con una humedad que cambia por especie: un 55 % para el faisán venerado, un 65 % para el faisán pavo de Rothschild y un 50 % para el faisán pavo de Palawan y el gran argus (Hernández García, 2014).
La temperatura marca el ritmo. Según Chintaguay, mantenerla por debajo de 37,0 °C durante periodos prolongados retrasa la eclosión aproximadamente un día, reduce el número de nacimientos y da polluelos grandes, blandos y débiles; mantenerla por encima de 38,0 °C la adelanta un día, aumenta las malformaciones y da polluelos delgados y ruidosos. El calor excesivo hace más daño que el frío: es posible incubar los huevos de tres a cuatro horas a unos 33 °C sin matar demasiados embriones, pero a 40 °C basta media hora para matar muchos, y cuanto más avanzado está el embrión, más sensible es (del Campo, 2006). Tanto una humedad alta (por encima del 70 %) como una baja pasan factura: la primera ahoga a los polluelos cuando empiezan a respirar en la cámara de aire en los últimos días y la segunda reseca las membranas y la cáscara y dificulta la rotura (del Campo, 2006).
Corder explica además cómo se vigila el desarrollo sin abrir el huevo. Un huevo pierde en la incubación alrededor del 15 % de su peso inicial a medida que se forma el polluelo; si un huevo de dorada pesa 30 g, debe pesar unos 25,5 g al eclosionar a los 22 días y unos 28,35 g a los 8 días, y el criador puede trazar una gráfica de pérdida de peso para corregir la humedad si el huevo pierde peso demasiado deprisa o demasiado despacio (Corder, s. f.). En la segunda mitad de la incubación el propio embrión genera calor, y por eso un huevo grande no debe incubarse en una máquina pequeña con poca circulación de aire (Corder, s. f.). Al mirar un huevo a contraluz (ovoscopia), el cuerpo del polluelo aparece como una masa oscura y la cámara de aire como una zona clara y bien definida; al principio incluso se ven los vasos sanguíneos sobre la yema, y poco antes de nacer el polluelo atraviesa con el pico el interior de esa cámara (Corder, s. f.).
El volteo previene que la yema, sostenida por dos ligamentos retorcidos, descienda y toque la cáscara, donde no se desarrollaría (Corder, s. f.). Chintaguay añade otras razones (repartir el calor, regular la deshidratación, eliminar desechos y evitar desarrollos desiguales o malformaciones) y lo fija en tres o cuatro veces al día hasta tres días antes de la eclosión, cuando se deja de voltear y se baja un grado la temperatura (del Campo, 2006). Corder prefiere un número impar de giros diarios para que cada noche quede abajo una cara distinta, y recomienda trasladar el huevo a una nacedora unos tres días antes de la eclosión (Corder, s. f.).
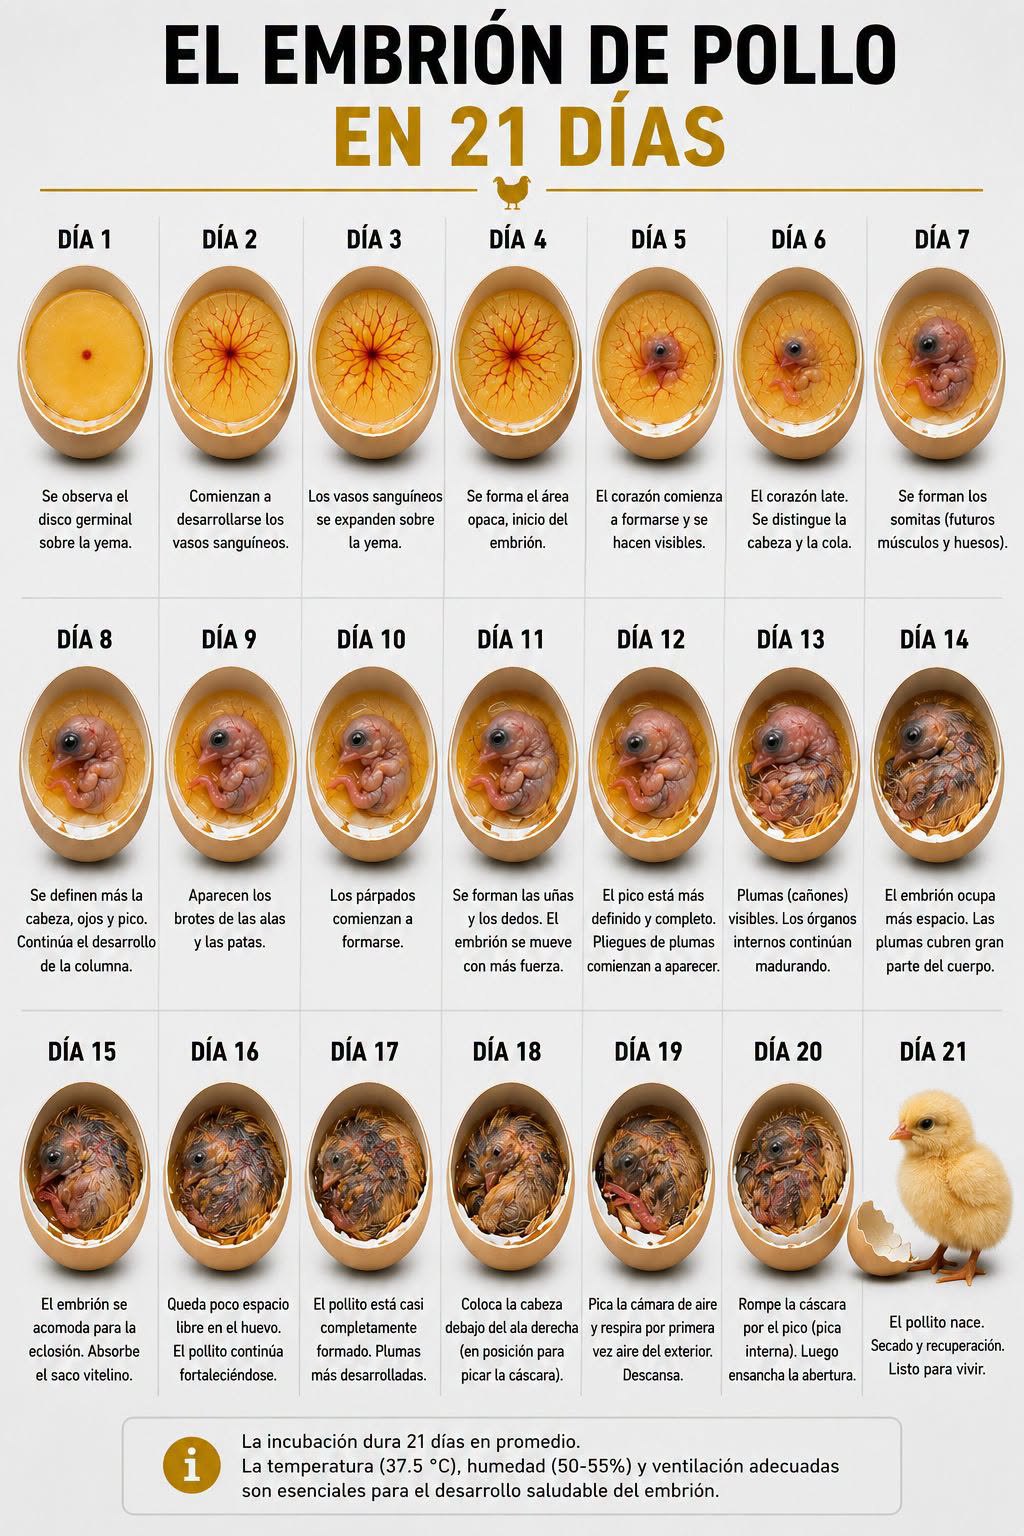
El embrión, día a día
La infografía siguiente resume los 21 días de incubación del embrión de la gallina doméstica y sirve de referencia para imaginar lo que ocurre dentro del huevo.
El nacimiento
El polluelo que va a nacer rompe la cáscara con el pico, gira dentro del huevo y hace palanca con los pies contra la pared; hasta ese momento sus dedos están orientados hacia dentro y solo se abren al salir (Corder, s. f.). Por eso, según Corder, el exceso de humedad en la incubadora endurece la cáscara y deja a los pies presionados durante más tiempo, lo que puede dejar dedos torcidos; el estrés y una dieta desequilibrada también se han asociado con esos dedos torcidos, y las patas abiertas en las caderas se producen cuando el polluelo tarda demasiado en salir (Corder, s. f.). Howman cree que los polluelos de algunas especies, entre ellas el faisán orejudo marrón y el gallo de Sonnerat, nacen mejor y evitan las patas abiertas si lo hacen bajo la gallina y permanecen con ella de doce a veinticuatro horas, porque se quedan casi inertes bajo ella y fortalecen poco a poco las patas, mientras que en la incubadora se apresuran a buscar a una madre que no existe (Howman, 1993).
Los polluelos recién nacidos viven de la yema que traen consigo. Delacour (1978) dice que la naturaleza les ha dado alimento para las primeras veinticuatro horas y aconseja no intervenir en la eclosión y dejar las cáscaras vacías en el nido (Delacour, 1978). Chintaguay precisa más: tras salir permanecen de 24 a 48 horas en la nacedora, sin comida ni agua, mientras se secan; durante las primeras 36 horas se alimentan de lo que queda de yema en el saco vitelino, que además contiene anticuerpos maternos, y esa reserva les permite sobrevivir como máximo de tres a cuatro días, tiempo en el que tienen que aprender a comer (del Campo, 2006). Corder deja también a los polluelos un día en la nacedora, igual que descansarían un día bajo su madre, hasta que están secos y esponjosos (Corder, s. f.).
| Lo que se ve al nacer | Causas citadas por el autor |
|---|---|
| Muchos huevos claros (sin embrión) | Huevos almacenados demasiado tiempo o en malas condiciones; mala temperatura, sobre todo sobrecalentamiento en los primeros días (Hernández García, 2009 (documentos)) |
| Muchos embriones muertos | Temperatura muy alta o muy baja al principio; volteo incorrecto; aireación defectuosa (Hernández García, 2009 (documentos)) |
| Polluelos formados y muertos antes de picar la cáscara | Mala humidificación; humedad mala en la nacedora; temperaturas demasiado altas o demasiado bajas en la incubadora; aireación defectuosa (Hernández García, 2009 (documentos)) |
| Huevos picados con el polluelo muerto en la cáscara | Humedad insuficiente en la incubadora o la nacedora; desinfección incorrecta; aireación defectuosa; temperatura demasiado baja (Hernández García, 2009 (documentos)) |
| Nacimientos tardíos | Temperatura muy baja; almacenamiento de los huevos muy prolongado (Hernández García, 2009 (documentos)) |
| Polluelos viscosos | Temperatura muy baja; temperatura y humedad muy altas; aireación defectuosa (Hernández García, 2009 (documentos)) |
| Patas y dedos torcidos | Temperatura elevada en la nacedora; humedad muy baja en la incubadora; volteo incorrecto (Hernández García, 2009 (documentos)) |
| Polluelos débiles, pequeños o blandos | Débiles: temperatura elevada. Pequeños: huevos pequeños o humedad muy baja. Blandos: temperatura muy alta o muy baja, o aireación insuficiente (Hernández García, 2009 (documentos)) |
| Polluelos poco emplumados | Temperatura muy alta en la incubadora; humedad baja; ventilación demasiado fuerte en la nacedora (Hernández García, 2009 (documentos)) |
Resumen de las pruebas físicas y químicas de la incubación (Hernández García, 2009), reproducidas en el volumen II de su guía práctica.
Cuánto dura la incubación en cada especie
De los 18 días del faisán pavo de Palawan a los 30 del pavo real azul: una tabla con cuatro fuentes y las discrepancias que aparecen entre ellas.
La incubación de los faisanes dura entre 18 y 29 días según Johnsgard (1986), con los periodos más largos en Argusianus, Pavo, Lophophorus y Crossoptilon y los de menos de 23 días en géneros como Chrysolophus y Polyplectron (Johnsgard, 1986). HBW da como norma que en casi todos los fásidos la incubación dura de 18 a 25 días, con extremos de 14 días en la codorniz arlequín y de 28 a 30 en el pavo real azul (McGowan, en HBW 2, 1994).
En el cuadro general que Johnsgard traza de los grandes grupos, los faisanes (tribu Phasianini) se distinguen de las perdices (de 16 a 25 días), los urogallos (de 21 a 27) y las codornices del Nuevo Mundo (de 22 a 30) por un intervalo de 18 a 29 días, un tamaño de puesta de 1 a 12 huevos y una madurez sexual que se alcanza entre el primer año y el tercero (Johnsgard, 1986). Más abajo se comparan esas edades de madurez especie por especie.
| Especie | Howman (1993): días | Johnsgard (1986), fichas de especie: días | Hernández García (2009): días | Chintaguay (2005): días |
|---|---|---|---|---|
| Faisán ensangrentado | 27–29 | 26–29 (media, 27) | 27 | 27–28 |
| Tragopán occidental | 28 | — | 28 | 28 |
| Tragopán satyr | 28 | 28 | 28 | 28 |
| Tragopán de Temminck | 28 | — | 28 | 28 |
| Tragopán de Blyth | 28–30 | 36–45 (probable error; más cerca de 28) | 28 | 28 (con interrogante) |
| Tragopán de Cabot | 28 | 28 | 28 | 28 |
| Koklas | 26–27 | 26–27 | 26–27 | 26–27 |
| Monal del Himalaya | 28 | 26–29 (casi siempre 28) | 28 | 28 |
| Monal chino | 28 | — | 28 | 28–29 |
| Gallo rojo | 19–21 | 20 (18–20 según Cheng et al., 1978) | 19–21 | 19–21 |
| Gallo gris (de Sonnerat) | 20–21 | 20–21 | 20–21 | 20–21 |
| Gallo de Lafayette (de Ceilán) | 20–21 | 20–21 | 20–21 | 20–21 |
| Gallo verde | 21 | 21 | 21 | 21 |
| Faisán de Salvadori | 25 | 22 | 22 | 21–22 |
| Faisán imperial | 25 | 25 | — | 25 |
| Faisán de Edwards | 22 | 21–22 | 21–22 | 24–25 |
| Faisán kalij | 24–25 | 20–22 (campo; Baker, 1930) y 24–25 (cautividad) | 24–25 | 24–25 |
| Faisán plateado | 25–26 | 25–26 | 25–26 | 25 |
| Faisán de Swinhoe | 25 | 25 | 25 | 22 |
| Faisán prelado | 24–25 | 24–25 | 24–25 | — |
| Faisán cola rosa | 23–24 | — | 24 | 23–24 |
| Faisán noble | 24 | 24 | 24–25 | 24 |
| Faisán de Bulwer | 24–26 | 24–25 | 24–25 | 24–26 |
| Orejudo blanco | 24–25 | 24 (27–28 según Mallet, 1973) | 24 | 24–25 |
| Orejudo marrón | 26–27 | 26–27 | 26–27 | 26–27 |
| Orejudo azul | 26–28 | 26–28 | 24–26 | 26–28 |
| Faisán Wallich (Cheer) | 26 | 26 | 26 | 26 |
| Faisán de Elliot | 25 | 26 | 26 | 25 |
| Faisán de Hume | 27–28 | 27–28 | 27–28 | 27–28 |
| Faisán Mikado | 27 | 28 | 28 | 27 |
| Faisán cobrizo | 25 | 24–25 | 24–25 | 25 |
| Faisán venerado (de Reeves) | 25 | 24–25 | 24–25 | 24 |
| Faisán común | 24–25 | 23–28 en libertad (media, 23–23,5) | 22–25 | 23–24 |
| Faisán verde | — | 23–25 | 24–25 | — |
| Faisán dorado | 22 | 22–23 | 22 | 22 |
| Faisán de Lady Amherst | 22 | 22–23 | 22–23 | 23–25 |
| Faisán pavo de cola bronceada (Sumatra) | 22 | 22 | 20–22 | 22 |
| Faisán pavo de Rothschild | 22–23 | 19–21 | 20–22 | 22 |
| Faisán pavo gris | 22 | 21 | 20–22 | 22 |
| Faisán pavo de Germain | 21–22 | 21 | 20–22 | 22 |
| Faisán pavo malayo | 22 | 22–23 | 20–22 | 22 |
| Faisán pavo de Borneo | — | 20–22 (media, 21) | 20–22 | 22 |
| Faisán pavo de Palawan | 18–20 | 18–20 | 19–20 | 18–19 |
| Argus crestado | 24–25 | 24–25 | 24–25 | 25 |
| Gran argus | 24–25 | 24–25 | 24–25 | 24–25 |
| Pavo real azul (indio) | 27–29 | 28–30 | 28–30 | 27–29 |
| Pavo real verde | 28 | 26–28 | 26–28 | 28 |
| Pavo del Congo | 26 | 27–28 (25–27 en otros zoos) | 27–28 | 26–28 |
Howman (1993), cuadro «The Laying Chart» (p. 59); Johnsgard (1986), apartados «Incubation and brooding» de cada especie, con su autor cuando difiere; Hernández García (2009), «Ficha técnica de incubación de faisanes»; criadero Chintaguay (2005), «Tabla de postura de faisanes», elaborada sobre todo con datos de Johnsgard, Delacour y Howman. Un guion indica que la fuente no da la cifra. Los nombres siguen los de esta web: el faisán prelado es el siamese fireback de los autores en inglés; el cola rosa, el crestless fireback; el noble, el crested fireback; el de Bulwer, el wattled pheasant.
Qué hace variar el periodo
Chintaguay recuerda que el periodo de incubación varía de acuerdo con el nivel y la estabilidad de las condiciones, en especial con la temperatura, de la que depende de forma inversa, y que puede adelantarse hasta en un día si los huevos se incuban inmediatamente después de la puesta (del Campo, 2006). Corder señala que cuando eclosiona la hembra y no la incubadora hay que sumar un día a la espera, y que si la temperatura ambiente es baja durante gran parte de la incubación los polluelos suelen nacer más tarde de lo previsto (Corder, s. f.). Johnsgard cita una variación geográfica en el kalij y una diferencia entre cautividad y libertad en el faisán común, en el que las incubaciones más largas (hasta 28 días) se asocian con distintos niveles de molestias a la hembra (Johnsgard, 1986).
Hacer coincidir huevos de distintas especies
Como los periodos difieren, quien incuba huevos de varias especies tiene que ajustar las fechas para que nazcan juntos. Delacour (1978) recomienda no poner juntos bajo una misma gallina huevos que necesitan 23 días y huevos que necesitan 28, porque los segundos no habrían nacido cuando la gallina quiera abandonar el nido (Delacour, 1978). Howman (1993) ofrece un ejemplo de once huevos que nacen todos a la vez: dos de monal puestos el día 1, uno de Wallich y dos de plateado el día 3 (cada uno con 26 días), dos de Elliot el día 4 (25 días) y dos de gallo gris y dos de gallo rojo el día 8 (21 días) (Howman, 1993). Corder da otro ejemplo: un huevo de monal (28 días) puesto seis días antes de uno de dorada (22 días) nacerá el mismo día (Corder, s. f.).
La clasificación del autor por periodos
El autor de esta web ha reunido los retratos de sus 53 especies en una infografía, «Incubación: periodos», ordenados en once clases (19–20, 20–21, 21–22 y así hasta 29–30 días), desde los 19–20 días (una sola especie, la de Palawan) hasta los 29–30 (el pavo real azul y otras dos especies). La clase más poblada es la de 24–25 días, con once especies, y le siguen la de 21–22 y la de 25–26, con ocho cada una (Hernández García, 2009 (documentos)). Las clases más cortas (de 19 a 21 días) reúnen al faisán pavo de Palawan y a los cuatro gallos, y las más largas (de 28 a 30 días) incluyen a los tragopanes, los monales y el pavo real azul, de modo que a grandes rasgos la duración de la incubación sigue el reparto por grupos que se describe en el apartado sobre las diferencias entre grupos (Hernández García, 2009 (documentos)).
El polluelo recién nacido
Nidífugo, con plumón y algunas plumas ya formadas: cómo es, de qué vive las primeras horas, cómo conserva el calor y cómo aprende a comer y a beber.
Los faisanes son aves nidífugas: sus polluelos salen del huevo cubiertos de plumón, pueden desplazarse y alimentarse por sí mismos poco después y no dependen de que sus padres les lleven la comida al nido. Según HBW, a los progenitores solo les quedan tres cometidos, que son calentar a las crías, guiarlas hacia las fuentes de alimento y vigilar a los depredadores, y los tres puede cumplirlos un solo adulto, de ahí que en la mayoría de las especies la familia se reduzca a la hembra y los polluelos (McGowan, en HBW 2, 1994).
El nacimiento en libertad: un relato clásico
Delacour recoge en su monografía las observaciones de una naturalista rusa, Mme Koslova, sobre el nacimiento del faisán común en libertad. El proceso de eclosión dura unas doce horas; el polluelo abre primero un agujero de unos 2 mm en el extremo ancho del huevo, se oyen leves golpecitos y piídos, y unas horas después aparece una grieta circular casi completa alrededor de la cáscara; el polluelo empuja con las patas la parte ancha, como la tapa de una caja, y descansa en el nido hasta que el plumón se seca. Pasa luego una o dos horas sentado sobre los tarsos, con los dedos flexionados, y por fin se pone de pie y puede caminar y correr. El diente del huevo se pierde hacia el segundo día; los que nacen por la mañana temprano abandonan el nido por la tarde, y la diferencia de edad entre el hermano mayor y el menor de una misma puesta puede ser de ocho a doce horas (Delacour, 1977). Es la descripción de una población y de unas observaciones de 1943; no hay un relato equivalente para otras especies en las fuentes consultadas.
Plumón y primeras plumas
Aunque los polluelos nacen cubiertos de plumón, algunas plumas del plumaje juvenil pueden estar ya presentes. En el faisán común Johnsgard, siguiendo a Sutter (1971), cita las siete primeras primarias y las secundarias de la tercera a la undécima; en el faisán venerado las siete primeras primarias, mientras que las tres restantes aparecen a lo largo de las tres o cuatro semanas siguientes; en el venerado no hay ninguna rectriz al nacer y en un estudio aparecieron hacia el día 12 en ambos sexos (Johnsgard, 1986). Las primarias crecen en orden, desde la muñeca hacia fuera, y las secundarias a partir de la tercera hacia los dos lados (Johnsgard, 1986). Delacour, citando a Koslova, añade que en el faisán común las plumas del ala son las primeras en aparecer y las de cabeza y cuello las últimas, y que a los cuatro días las primarias miden unos 3,4 mm (Delacour, 1977). Las especies más precoces llegan al mundo con las alas más adelantadas: los tragopanes nacen, según Delacour, con las alas bien desarrolladas y vuelan a los pocos días, y en el de Cabot, según un observador citado por Johnsgard, el plumón es espeso, áspero e hirsuto y las primarias están tan formadas que el primer día los polluelos saltan hasta posarse en el costado de la gallina que los cría (Delacour, 1977; Johnsgard, 1986). El argus crestado tiene las primarias bien desarrolladas al nacer, y las plumas de la cola empiezan a salir a los tres días (Johnsgard, 1986).

El dibujo del plumón es distinto en cada grupo, y los autores lo usan como carácter de parentesco. Delacour lo describe así para varios géneros (Delacour, 1977):
- Faisanes de cola larga (Syrmaticus)
- Dibujo común a todo el género: centro de la corona y nuca pardo oscuro, resto de la cabeza rufo, una línea oscura del ojo a la nuca, partes inferiores blanquecinas con pecho, costados y muslos rufos, y dos bandas blanquecinas a los lados de la espalda (Delacour, 1977).
- Faisán común y verdaderos (Phasianus)
- Plumón claro con marcas pardo oscuras, línea negruzca sobre el ojo y tras las cobertoras auriculares (continua en los machos y quebrada en las hembras, por lo general) y tres franjas pardas oscuras en la espalda; es un dibujo distinto del de los colilargos y de las Chrysolophus (Delacour, 1977). El autor de esta web los describe como grises con rayas negras (Hernández García, 2014).
- Faisanes dorado y de Lady Amherst (Chrysolophus)
- Corona castaño leonado, más oscura en el centro, lados de la cabeza ocre con dos pequeñas manchas oscuras en las cobertoras auriculares, partes superiores pardo leonado con dos bandas pálidas a los lados de la espalda, y partes inferiores blanquecinas (Delacour, 1977).
- Gran argus (Argusianus)
- Castaño rufo, algo más pálido por debajo, muy oscuro en corona y espalda, con dos bandas leonadas a los lados, y pico y patas rosa rojizo (Delacour, 1977); el argus crestado tiene un patrón parecido y desde el nacimiento un copete occipital corto y grueso (Delacour, 1977).
- Faisán Wallich (Catreus)
- Los polluelos son muy peculiares: Delacour los compara, por su dibujo, con los de ciertas perdices (Delacour, 1977).
- Faisán ensangrentado (Ithaginis)
- Cabeza gris veteada con rayas oscuras en el lorum, bajo el ojo y alrededor de la nuca, y cuello inferior y cuerpo rojizo apagado con finas puntas negras (Delacour, 1977).
- Gallo verde (Gallus varius)
- Se parece a los demás gallos, pero es más oscuro: alas y banda de corona a cola pardo chocolate, y partes inferiores blanco cremoso (Delacour, 1977).
Los criadores también describen el plumón con sus palabras: pardo y de ojos negros en el tragopán de Temminck, oscuro y con patas largas en el pavo-faisán de Rothschild, y pardo oscuro con patas rosadas en el argus (Hernández García, 2013; Hernández García, 2014).
Sexar al nacer
En la mayoría de las especies no se distinguen los sexos al nacer, pero hay excepciones. En el faisán común Johnsgard señala que, a veces, los machos se reconocen al eclosionar por un anillo ocular pálido, leonado y algo mayor, y por unas manchas pardas auriculares menos visibles que las de las hembras; los machos de un día o más muestran también un rudimento de carúncula (un pliegue de piel sin plumas y casi sin pigmento, oculto en gran parte por el plumón) justo bajo la región del ojo y en el lorum, lo que permite sexar a los polluelos con un porcentaje elevado de aciertos (Johnsgard, 1986). El peso medio de los polluelos de esa especie al nacer es de 22 a 24 g (Johnsgard, 1986).
Las primeras horas: calor y agua
Un polluelo de faisán no regula todavía su temperatura corporal. Chintaguay señala que la capacidad de hacerlo solo llega, aproximadamente, al mes y medio, y que el plumón no es impermeable, de modo que si el polluelo se moja y nadie lo advierte a tiempo muere de hipotermia; por eso los bebederos deben dejar beber sin permitir que el polluelo se meta en el agua, por ejemplo con un plato lleno de canicas (del Campo, 2006). Corder da el mismo consejo (guijarros en el bebedero, que sirven de peldaños) y recuerda que, cuando un pollo se moja, se enfría rápidamente (Corder, s. f.). HBW atribuye la alta mortalidad de polluelos de faisán común en poblaciones introducidas, entre otras causas posibles, a cambios bruscos de tiempo que los mojan y enfrían (McGowan, en HBW 2, 1994). Con la madre, el calor lo da su propio cuerpo: bajo las alas en los tragopanes, que a los dos o tres días vuelan hasta un posadero y duermen allí bajo la hembra, y en los pavos reales y sus parientes, donde la hembra suele cubrir un polluelo bajo cada ala; bajo la cola, en los faisanes pavo, los argus y el pavo real verde (Delacour, 1977; Johnsgard, 1986). Corder cuenta que las hembras de faisán pavo, en las selvas húmedas, extienden la cola como un paraguas sobre sus dos polluelos y que estos responden por instinto (Corder, s. f.). El tragopán satyr pasa las primeras noches en el nido, de cinco a seis días según el autor (Hernández García, 2013), y Corder observa que en algunas especies la hembra intenta subirse a un posadero con las crías a los cuatro o seis días del nacimiento (Corder, s. f.).

| Fuente | Temperatura de la criadora | Cómo se baja |
|---|---|---|
| Delacour (1978) | 100 °F (37,8 °C) en la criadora; 95 °F (35 °C) en el suelo, junto al borde exterior (Delacour, 1978) | A partir de la tercera semana, 5 °F (unos 2,8 °C) por semana, según el comportamiento de los polluelos (Delacour, 1978) |
| Corder (s. f.) | Unos 35 °C a nivel del suelo bajo la lámpara (Corder, s. f.) | Se sube o baja la lámpara hasta que los polluelos se reparten sin amontonarse (Corder, s. f.) |
| Chintaguay (2005–06) | 36 °C en la nacedora durante los días 1 y 2; 32 °C en la criadora los días 2 a 7 (del Campo, 2006) | 30 °C (semana 2), 28 °C (3), 26 °C (4), 24 °C (5); sin calor desde la semana 6 (del Campo, 2006) |
| Hernández García (2013, 2014) | 30–31 °C (plateado), 32 °C (cobrizo), 36 °C en una caja pequeña (faisán pavo de Rothschild) (Hernández García, 2013; Hernández García, 2014) | — |
Conversiones de grados Fahrenheit a Celsius hechas en esta guía. Las tres primeras fuentes coinciden en lo esencial (de 32 a 37,8 °C el primer día, descenso semanal) pero difieren en la cifra de partida.
Todas las fuentes de cría coinciden en cómo reconocer si el calor es el adecuado: si los polluelos se amontonan bajo la fuente de calor, tienen frío; si se alejan de ella, jadean y mantienen las alas caídas, tienen calor (Corder, s. f.; del Campo, 2006; Delacour, 1978).
Aprender a comer y a beber
Los polluelos nacen con el instinto de picotear objetos pequeños y redondeados que contrastan con el fondo, pero necesitan algunos días para aprender qué es comida. Kruijt (1964) describió en el gallo bankiva, y Johnsgard resume, cómo el picoteo del suelo está presente desde el nacimiento, el rascado del suelo aparece hacia el tercer día, y a partir del segundo día el polluelo que atrapa un bocado grande, sobre todo si es vivo, sale corriendo con él emitiendo pitidos repetidos, un comportamiento que atrae a los otros polluelos y que, años después, se convertirá en el «tidbitting» del macho adulto (Johnsgard, 1986). HBW lo describe a partir del mismo estudio: los polluelos son guiados hacia el alimento y luego picotean solos; los adultos pueden recoger el bocado y lanzarlo hacia ellos, dejarlo delante o pasarlo de pico a pico, con llamadas de comida (McGowan, en HBW 2, 1994). Un detalle sobre el color: los pollos de gallina doméstica muestran una preferencia innata por el violeta y el naranja y rechazan el verde, lo que podría facilitarles encontrar alimentos en la hierba (Johnsgard, 1986).
Hay especies en las que ese aprendizaje no es automático. Los polluelos de los faisanes pavo y de los argus esperan, por instinto, recibir la comida directamente del pico de su madre, que durante los primeros días los alimenta así y solo después se los ve picotear (Corder, s. f.; Johnsgard, 1986). Delacour describe que no recogen el alimento del suelo y que en cautividad hay que ofrecerles insectos con la punta de una aguja o unas pinzas, o criarlos junto a algún polluelo de dorada que les enseñe a comer (Delacour, 1977). Johnsgard cuenta que el criador Denton (1978) lo resolvió con un polluelo de gallina enana que picoteaba el pienso pegado a su pico y que los polluelos de pavo-faisán imitaban como lo harían con el pico de su madre, y que los del faisán pavo de Germain, casi exclusivamente insectívoros, se alimentan con pinzas hasta que aprenden en pocos días (Johnsgard, 1986). En el gran argus la hembra de un zoo siguió alimentando a sus crías pico a pico durante más de 40 días (Johnsgard, 1986). Corder propone mojar un pincel en agua y tocar el pico del polluelo que no bebe, o pegarle migas con un pincel húmedo para animarle a comer; los fondos claros o blancos ayudan a que descubran la comida (Corder, s. f.).
Los criadores describen también especies lentas o pasivas: los polluelos del monal del Himalaya son poco activos y se anima a comer con un par de polluelos de gallina si la incubación es artificial; los del gallo verde tienden a comer mal y se ayudan con polluelos de dorada o de gallina enana; el faisán pavo de Rothschild nace con mucha fuerza pero necesita un pequeño aprendizaje previo, resuelto con otros pollos de faisán pavo (Hernández García, 2013; Hernández García, 2014). En el extremo opuesto, los polluelos del faisán venerado son, según el autor, muy dominantes desde el principio, por lo que no conviene mezclarlos con otras especies (Hernández García, 2014). Una criadora de tragopanes, Mme Malisoux, citada por Delacour, cuenta que los polluelos de tragopán no comen durante los dos primeros días pero deben beber al cabo de veinticuatro horas agua tibia, y que después se les ofrecen pocos insectos blandos cada vez, porque los progenitores de esa especie dan a sus crías solo uno o dos insectos, previamente ablandados con el pico (Delacour, 1977). Johnsgard confirma que los polluelos de satyr resisten dos días sin comer y necesitan agua unas doce horas después de nacer (Johnsgard, 1986).
De qué se alimentan
Johnsgard sostiene que en todos los fásidos hay una alta incidencia de comida animal viva, sobre todo insectos, durante las primeras semanas de vida, y que esa proporción baja deprisa; para cuando son adultos, más del 90 % de lo que comen es vegetal (Johnsgard, 1986). En el faisán común, durante la primera semana los insectos pueden representar del 80 al 90 % del alimento de los polluelos, y entre las cuatro y las seis semanas la dieta pasa de forma marcada a lo vegetal, con el grano como componente importante (Johnsgard, 1986). Una serie de análisis de contenidos digestivos citada por Johnsgard (Ferrel, Twining y Herkenbaum, 1949) dio un 82,9 % de alimento animal en 20 aves de hasta tres semanas, un 47,2 % en 23 aves de cuatro a seis semanas, un 55,1 % en 21 de siete a nueve semanas, un 12,5 % en 31 de diez a doce semanas y solo un 1,8 % en 34 de trece a dieciséis semanas (Johnsgard, 1986). Delacour, citando a Koslova, describe que los polluelos del faisán común comen sobre todo insectos, con los ortópteros como principal alimento, y hormigas, pulgones y arañas como complemento, y que beben con regularidad entre las diez y las once de la mañana (Delacour, 1977). HBW constata la misma pauta general en la familia: dependencia de los insectos en las primeras etapas, con excepciones como los perdigallos de alta montaña, casi vegetarianos desde pequeños (McGowan, en HBW 2, 1994). Las pautas de cría con piensos, insectos y verdes se detallan en el capítulo de avicultura.
Crecimiento en peso y talla: de gramos a adulto en pocos meses
Cifras de peso por edad de nueve especies, los hitos de la primera semana a los cinco meses, cuándo vuelan los polluelos y cuándo se distinguen los sexos.
La mayoría de los faisanes alcanza el tamaño de un adulto en pocos meses. HBW señala que los polluelos de muchas especies tienen el tamaño de un adulto hacia los dos meses de edad (McGowan, en HBW 2, 1994). Las cifras de la tabla siguiente muestran ritmos muy distintos entre especies, y Johnsgard recoge que el crecimiento de los pavos reales y de los argus es más lento que el de los faisanes típicos (Johnsgard, 1986).
| Especie | Al nacer | Hacia 1 mes | Hacia 2 meses | A los 3 meses o más |
|---|---|---|---|---|
| Faisán común | 22–24 g (Johnsgard, 1986) | unos 135 g (30 días) (Johnsgard, 1986) | unos 400 g (Johnsgard, 1986) | a los 3 meses, hembras unos 750 g y machos 850–950 g; a las 20 semanas, hembras unos 800 g y machos unos 1.100 g (Johnsgard, 1986) |
| Faisanes orejudos (Felix, 1964) | unos 40 g (Johnsgard, 1986) | 85 g a los 10 días (Johnsgard, 1986) | unos 600 g a los 50 días (hembras de 50 a 70 g menos) (Johnsgard, 1986) | a los 100 días, machos unos 1.500 g y hembras unos 1.350 g; peso adulto a los 150 días (Johnsgard, 1986) |
| Orejudo marrón | 41,4 g de media (de 38,5 a 45 g, 13 polluelos) (Johnsgard, 1986) | 309 g a las 4 semanas (Johnsgard, 1986) | — | — |
| Faisán venerado | 21,8 g de media al primer día (8 polluelos) (Johnsgard, 1986) | casi 200 g a los 35 días (Johnsgard, 1986) | — | — |
| Faisán de Elliot | 21,5 g de media (15 polluelos) (Johnsgard, 1986) | 127 g de media (Johnsgard, 1986) | — | a los 90 días, 4 machos unos 688 g y 2 hembras unos 525 g (Johnsgard, 1986) |
| Faisán Mikado | 30,5 g de media (22 polluelos) (Johnsgard, 1986) | 112 g de media (Johnsgard, 1986) | 60 días: 10 machos unos 343 g y 3 hembras unos 335 g (Johnsgard, 1986) | — |
| Faisán de Lady Amherst | 24,1 g de media (7 polluelos) (Johnsgard, 1986) | 149 g a los 30 días (Johnsgard, 1986) | 207 g a los 40 días (5 polluelos) (Johnsgard, 1986) | — |
| Faisán pavo de Palawan | 19,6 g de media (8 polluelos) (Johnsgard, 1986) | 63 g a los 29–31 días (Johnsgard, 1986) | — | a los 90 días, 6 polluelos unos 260 g (Johnsgard, 1986) |
| Faisán pavo malayo | 24–28 g (huevo fresco medio de 40,4 g) (Johnsgard, 1986) | unos 100 g, cuatro veces el peso al nacer (Johnsgard, 1986) | el doble que al mes (Johnsgard, 1986) | — |
| Gran argus | 55,4 g de media (8 polluelos) (Johnsgard, 1986) | 133 g (Johnsgard, 1986) | 446 g (2 polluelos) (Johnsgard, 1986) | — |
Johnsgard (1986): datos de zoo (San Diego) comunicados por D. Rimlinger, de Felix (1964), de Glutz (1973), de Baxter y Wolfe (1973) y de Bruning (1983). Las muestras son pequeñas; no son pesos medios de la especie. Hernández García (2014) da 19 g para un polluelo de faisán dorado recién salido del huevo y 487 g para un faisán común de 45 días en pies de foto de su guía.
Semana a semana: lo que cambia en el faisán común
Johnsgard y Delacour reúnen para el faisán común una secuencia de hitos del plumaje, útil para estimar la edad de un polluelo y su fecha de nacimiento. Según Koslova, citada por Delacour, el crecimiento y la muda de los distintos plumajes son continuos desde los tres días hasta los cinco meses, cuando el macho adquiere el vestido adulto completo (Delacour, 1977):
- Se ven las vainas de las plumas del ala; a los 4 días las primarias miden unos 3,4 mm (Delacour, 1977).
- Asoman las puntas de las secundarias y de las cobertoras superiores del ala (Delacour, 1977).
- Las puntas de las plumas de la cola rompen sus vainas y las escapulares ya están bien desarrolladas (Delacour, 1977).
- Aparecen las plumas de los lados del pecho (17 días), de la rabadilla (19 días) y del dorso (21 días) (Delacour, 1977).
- Empieza la muda posjuvenil con la segunda pluma de la álula (la primera es rudimentaria); a los 27 días sigue la primera primaria y a los 29 días las cobertoras secundarias mayores, según Johnsgard (Johnsgard, 1986).
- Salen las plumas de la cabeza (Delacour, 1977).
- Empieza la muda de las plumas juveniles del ala antes de que el vestido juvenil esté completo, y a los 45 días se tiene el plumaje juvenil completo; las dos primarias externas son las primeras en caer (Delacour, 1977).
- Según la tabla de Johnsgard para estimar la edad de los polluelos, la cola mide 10 mm a la segunda semana y de 36 a 63 mm de la tercera a la quinta (Johnsgard, 1986).
- Cae la cola juvenil y aparecen manchas de plumas del vestido adulto (Delacour, 1977).
- El plumaje intermedio, de plumas con anchos bordes castaño rojizo, está completo en el macho (Delacour, 1977).
- El macho tiene el vestido adulto completo (Delacour, 1977); en la tabla de Johnsgard, las primarias y secundarias del plumaje del primer invierno han terminado de crecer a los 150 días y las cobertoras inferiores mayores a los 170 (Johnsgard, 1986).
Johnsgard añade que las remeras del primer invierno crecen bastante más deprisa que las del plumaje juvenil, y con una velocidad máxima más constante, hasta unos 7 mm diarios (Johnsgard, 1986). La longitud de la cola de los machos de faisán común pasa de unos 241 mm a las 14 semanas a unos 305 a las 17, 380 a las 20 y más de 500 a las 24 (Johnsgard, 1986). En otras especies, el faisán de Elliot alcanza el plumaje adulto hacia las 16–18 semanas (Johnsgard, 1986) y el de Hume, los machos, hacia los cinco meses (Johnsgard, 1986).


Cuándo empiezan a volar
Muchos faisanes vuelan muy pronto, y las edades que dan las fuentes dependen más del género que del tamaño. Johnsgard indica que en los tragopanes y en Rheinardia los polluelos adquieren una capacidad de vuelo limitada con solo unos días, mientras que en otras especies el crecimiento de las remeras es más lento y la emancipación requiere una semana o más (Johnsgard, 1986):
- Tragopanes
- En el satyr, a los dos o tres días pueden saltar a un posadero; en el de Cabot, hasta el primer día se encaraman a la gallina (Johnsgard, 1986). Delacour afirma que vuelan a los pocos días (Delacour, 1977).
- Koklas
- Muy precoces; vuelan bien en muy pocos días (Johnsgard, 1986).
- Gallo bankiva y gallos
- A los 12 días en la población estudiada por Kruijt, cuando las plumas del ala aguantan el peso del cuerpo (Johnsgard, 1986); el autor de esta web da 15 días para pequeños vuelos en el gallo rojo (Hernández García, 2013). En el gallo gris, en pocos días y con los polluelos trepando a arbustos antes (Johnsgard, 1986).
- Kalij
- En pocos días vuelan casi tan bien como sus padres (Johnsgard, 1986).
- Faisán común
- Primeros vuelos hacia los 12 días (Johnsgard, 1986).
- Faisán venerado
- Los jóvenes suelen volar entre 50 y 100 yardas antes de posarse y, cuando están medio crecidos, al menos 800 pies (unos 240 m; conversión de esta guía) (Johnsgard, 1986).
- Faisán dorado
- De 12 a 14 días (Johnsgard, 1986).
- Pavo-faisán de Palawan
- Un pollo criado por sus padres pudo subir a un posadero elevado a los 13 días; a los 44 días seguía durmiendo bajo el ala de la hembra, ya totalmente emplumado salvo un pequeño grupo de plumas en el centro de la cabeza, y a los 70 días el plumaje juvenil estaba completo (Johnsgard, 1986).
- Gran argus
- En la segunda semana medio trepan y medio vuelan a una rama; el vuelo verdadero puede llegar más tarde (Johnsgard, 1986).
- Pavo real azul
- A las dos semanas saltan o aletean hasta posaderos; a los 20 días vuelan (Johnsgard, 1986).
- Pavo del Congo
- A los seis días vuelan hasta 5 m de altura; al mes duermen cerca de la madre pero ya no bajo sus alas (Johnsgard, 1986).
Distinguir los sexos: la edad a la que se ve
En muchos faisanes el macho joven se reconoce pronto, y ese momento depende de la especie. En el faisán ensangrentado, según Grahame (citado por Johnsgard), a los cinco días los machos se distinguen por las primeras señales de gris en los hombros; a las tres semanas el macho es claramente más gris que la hembra, y a las seis semanas tiene la garganta roja (Johnsgard, 1986); Roles da diez días para sexar a los polluelos de la especie por su color más oscuro y el gris del hombro (Roles, 1976). En los orejudos, Grummt (1980, citado por Johnsgard) señala que a los 3,5 meses un espolón tarsal de 4–5 mm en los machos lo permite (Johnsgard, 1986). En el faisán de Elliot los machos se distinguen muy pronto por las bandas de la cola (Hernández García, 2014) y en el koklas, por su rápido crecimiento, también (Hernández García, 2013). En el gran argus los machos jóvenes se diferencian pronto por el alargamiento de las secundarias (Delacour, 1977); en el faisán prelado los machos jóvenes muestran pronto plumas grises (Johnsgard, 1986); en el faisán de Bulwer los colores distintivos del macho aparecen hacia los seis meses (Johnsgard, 1986). Chintaguay sitúa el comienzo del sexado en la etapa de recría, entre los 30 y los 70 días, cuando aparecen diferencias externas, sobre todo en el plumaje de los machos (del Campo, 2006).
Las etapas de la cría
Chintaguay divide la cría en tres etapas: cría (hasta el primer mes, la más crítica, con una mortalidad esperable de entre el 5 y el 10 %), recría (de los 30 a los 70 días, en jaulas bajas al aire libre con refugio caliente por la noche) y terminación (a partir de los dos meses, cuando necesitan de 1 a 2 m² por ave como los adultos) (del Campo, 2006). Delacour (1978) recomienda no soltar a los faisanes criados para repoblación antes de la décima a la decimocuarta semana, completamente emplumados, con las colas y las alas enteras, y capaces de valerse por sí mismos (Delacour, 1978). Howman (1993) precisa que los faisanes ornamentales se venden normalmente cuando empiezan a «colorear», hacia las 12–14 semanas, y que a esa edad ya están bien emplumados y aclimatados al clima exterior, frente a los 6–8 semanas de los faisanes de caza (Howman, 1993). Gerrits dice, para los monales, que no deben dormir fuera de la caseta hasta tener al menos siete semanas (Gerrits, 1974).
El anillado de los polluelos
El autor de esta web publica una tabla de diámetros de anilla por especie (2015), que sirve también como indicación del tamaño que alcanzará la pata. Van de los 10 mm de los faisanes pavo y de los dorados (10–12 mm) a los 12 mm de la mayoría de los gallos, gallofaisanes, colilargos, el común y el Wallich, los 12–14 mm del plateado y el venerado, los 14 mm de los tragopanes, los monales, los orejudos y los dos argus, los 16–18 mm del pavo del Congo y los 18–20 mm de los pavos reales; el faisán ensangrentado usa 9–10 mm (Hernández García, 2009 (documentos)). En su guía, el autor da el momento: el faisán pavo de Borneo se puede anillar con una anilla de 10 mm a las seis semanas (Hernández García, 2014); Chintaguay recomienda el anillado al llegar a la terminación, cuando se seleccionan los reproductores del año siguiente, para trazar el linaje y conocer la temporada de nacimiento (del Campo, 2006); y Corder explica que el color de las anillas cerradas sirve para saber de un vistazo la edad del ave (Corder, s. f.).

Plumajes y mudas: de las primeras plumas al vestido adulto
La secuencia de plumajes, cómo y cuándo se renuevan las plumas del ala y de la cola, el plumaje de eclipse de algunos gallos y los vestidos intermedios del macho joven.
Un faisán pasa por varios vestidos antes de ser adulto: el plumón del nacimiento, el plumaje juvenil, el de primer invierno (que en muchas especies es ya casi el definitivo) y, en las especies de maduración lenta, uno o dos vestidos intermedios más. Johnsgard (1986) resume que la pauta de muda y desarrollo del plumaje de los fásidos sigue la secuencia general de los galliformes ya descrita en detalle para urogallos y codornices, y se centra en el crecimiento y la muda de las plumas primarias, que los biólogos de caza usan desde hace décadas para estimar la edad de los faisanes (Johnsgard, 1986).
La secuencia: plumón, plumaje juvenil, vestido de primer invierno
El plumón natal da paso al plumaje juvenil, cuya aparición ya se ha descrito: las primeras primarias y secundarias están presentes en el nacimiento y el resto aparece en las primeras semanas (Johnsgard, 1986). Madge y McGowan (2002) advierten de que el plumaje juvenil dura poco y que a menudo se sustituye parcialmente cuando todavía quedan restos de plumón en la cabeza (Madge y McGowan, 2002). La muda posjuvenil, que en el faisán común empieza a los 23 días, sustituye el plumaje juvenil del ala por el de primer invierno, y termina entre los cuatro y los cinco meses de edad con las cobertoras menores primarias y las cobertoras inferiores mayores más internas (Johnsgard, 1986). Según Delacour, que recoge las observaciones de Koslova, en el macho existe además un vestido juvenil secundario o intermedio, de plumas con anchos bordes castaño rojizo, que aparece hacia los 40 días y que desde los tres meses y medio da paso a las plumas adultas verde brillante, que completan el vestido hacia los cinco meses (Delacour, 1977). Johnsgard señala que el plumaje de primer invierno se lleva durante el invierno y durante una parte o toda la siguiente estación de cría, y que en muchas especies no se distingue claramente del vestido adulto definitivo (Johnsgard, 1986).
La cola y las alas: dos pautas distintas
La cola sigue un calendario propio. En el faisán venerado ninguna rectriz está presente al nacer; las plumas de la cola juvenil crecen a partir del día 12 y alcanzan su tamaño entre los 40 y los 60 días, y se mudan casi de inmediato, empezando por la segunda desde el centro y avanzando hacia fuera, con la rectriz más externa (la novena) cayendo el día 70. Las rectrices del primer invierno aparecen entre los días 50 y 70 en ambos sexos, y en este caso la muda es centrípeta, desde las rectrices externas hacia las centrales, en un estudio de Mueller y Seibert (1966) que Johnsgard resume (Johnsgard, 1986). En el faisán orejudo azul, según Felix (1964), la muda posjuvenil de la cola empieza a los 30 días con el par situado a cada lado de la glándula uropigial, el último en salir es el décimo y las tres parejas más internas no están completas hasta que el ave tiene unos 140 días; la novena primaria y las dos secundarias más externas terminan hacia los 180 días, y la décima primaria juvenil se conserva durante todo el primer invierno (Johnsgard, 1986). En el venerado esa décima primaria juvenil se conserva durante el primer año; Madge y McGowan indican que los galliformes de primer año pueden reconocerse, aparentemente, por conservar las dos primarias más externas, más estrechas y que se desgastan pronto (Johnsgard, 1986; Madge y McGowan, 2002). Delacour, citando a Koslova, señala que las remeras juveniles del faisán son estrechas, de punta más aguda y de aspecto menos rígido que las de los adultos, y que el cañón de la pluma es desproporcionadamente largo (Delacour, 1977). En el faisán común, la forma y el color de las cobertoras secundarias mayores externas permiten reconocer la edad y el sexo: en los machos jóvenes la tercera a la quinta se parecen menos a las de un adulto (Johnsgard, 1986).
Cómo se mueve la muda de la cola: una clasificación histórica
La secuencia de muda de las plumas de la cola llegó a usarse en la clasificación de los faisanes. Según el resumen de HBW, Beebe propuso hacia 1914 cuatro pautas en la familia: en las perdices, codornices, francolines y perdigallos, el ensangrentado y los tragopanes la muda empieza por las rectrices centrales y avanza hacia fuera; en la mayoría de los faisanes va de las más externas hacia dentro; en los faisanes pavo, los argus y Rheinardia empieza por la tercera pluma a cada lado del par central y avanza en ambas direcciones; y en los pavos reales empiezan por el par que queda segundo desde fuera y avanza hacia dentro, con la pareja externa cayendo justo antes de la más interna (McGowan, en HBW 2, 1994). Johnsgard recoge en sus cuadros comparativos que la muda típica de la cola de los faisanes es centrípeta, frente a la centrífuga de las perdices (Johnsgard, 1986), y Delacour precisa que en los monales la muda de la cola va de fuera hacia dentro (Delacour, 1977).
La muda anual del adulto
Los faisanes adultos mudan una vez al año, normalmente tras la época de cría (Corder, s. f.). Johnsgard documenta en el faisán venerado de una población de Ohio que los machos empiezan a perder las primarias a finales de abril y las más externas caen a finales de agosto o principios de septiembre; las hembras empiezan unos dos meses más tarde, a mediados de junio, y terminan solo unas dos semanas después que los machos, a un ritmo más rápido. La muda de la cola de los machos empieza en mayo y las plumas nuevas aparecen entre finales de mayo y principios de julio, las centrales las últimas; las hembras la empiezan entre finales de junio y principios de agosto, y el crecimiento termina a finales de octubre en las hembras y a principios de diciembre en los machos, que tienen las rectrices centrales mucho más largas (Johnsgard, 1986). En el faisán común los machos empiezan a mudar las primarias un mes antes que las hembras y acaban antes; en las hembras el inicio parece correlacionado con la fecha de eclosión de la nidada y en los machos con un ciclo gonadal otoñal más temprano (según Kabat, Thompson y Kozlik, 1950); en los orejudos los machos empiezan de cinco a seis semanas antes que las hembras (Johnsgard, 1986). Corder describe una relación parecida en cautividad: los machos suelen empezar a mudar cuando la hembra empieza a incubar, y un macho en muda suele ser infértil y menos agresivo con las hembras y los polluelos, lo que quizá proteja a las crías de su padre; las hembras que han incubado sus huevos empiezan a mudar cuando los polluelos tienen unas dos o tres semanas (Corder, s. f.). La muda es un periodo duro y exige proteínas: una dieta pobre durante ella puede dejar barras o cambios de color en las plumas que se mantienen hasta la muda del año siguiente (Corder, s. f.).
Sobre especies de bosque tropical se sabe poco. HBW cita que el gran argus de las selvas del sudeste asiático parece empezar a mudar entre mediados de mayo y principios de julio, con una posible duración de unos 125 días, una aproximación basada en las plumas halladas en el suelo del bosque (McGowan, en HBW 2, 1994). Gerrits advierte de un problema en cautividad: los machos del gran argus tienden a empezar a mudar cuando se acerca la época de apareamiento y, por una muda tan drástica, quedan sin condiciones e incapaces de fecundar a la hembra (Gerrits, 1974). Y Roles recoge una observación de Steenbeek, de Holanda, según la cual el macho del faisán de Bulwer pierde la cola dos veces al año y la rehace en un tiempo sorprendentemente corto (Roles, 1976).

El vestido del macho joven según el grupo
No todos los machos pasan por el mismo camino. Hay grupos en los que el macho joven se parece a la hembra durante todo el primer año, otros en los que se viste casi de adulto con las plumas más cortas, y otros en los que el vestido adulto se va completando durante varios años:
- Tragopanes
- En el primer año los machos se parecen a las hembras pero son mayores, con mucho negro y rojo en la cabeza y el cuello (Delacour, 1977).
- Monales
- Los machos de primer año se parecen a las hembras, pero se distinguen por unas manchas negras en la garganta blanca; el vestido iridiscente del adulto llega en el segundo año (Delacour, 1977).
- Gallos
- Cada especie va a su ritmo (véase la tabla de madurez más abajo). Los machos de primer año del gallo gris se parecen ya a los adultos, pero con plumas más cortas y apagadas, las alas todavía moteadas de pardo y negro como las de la hembra, y cresta, lóbulos y espolones cortos; los de Lafayette tienen la cresta y los lóbulos poco desarrollados, la cabeza pardo apagada, las plumas del cuello cortas y anchas y faltan las largas plumas curvas de la cola (Delacour, 1977).
- Kalij y plateado
- El kalij adquiere el vestido adulto en su primer año, mientras que el plateado lo hace en el segundo; Delacour subraya que esto, junto con el color de las patas, justificó dividirlos en dos especies (Delacour, 1977). Madge y McGowan dan la misma regla (Madge y McGowan, 2002).
- Faisán común y colilargos
- Los machos jóvenes se parecen a las hembras al principio, con la cola corta y el dibujo menos definido, y estrenan el vestido adulto en el primer año, el común a los cinco meses (Delacour, 1977; Johnsgard, 1986).
- Faisanes dorado y de Lady Amherst
- Delacour señala que el macho tiene un vestido juvenil especial durante el primer año; tras la primera muda muestra plumas de color en cabeza, cuello y cola. En el segundo año el vestido es el del adulto, pero con la gorguera todavía sin desarrollar del todo, las plumas más redondeadas y las cobertoras del ala más moteadas (Delacour, 1977; Madge y McGowan, 2002).
- Faisán pavo gris
- Los machos de primer año son más pequeños y más apagados que los adultos, con el plumaje con vermiculaciones irregulares, ocelos irregulares y azul negruzcos, y la cresta, la gorguera y la cola cortas, y los tarsos sin espolones (Johnsgard, 1986).
- Argus
- En el gran argus los machos jóvenes se parecen a las hembras pero se diferencian pronto por unas secundarias alargadas; en el argus crestado el macho adquiere el vestido moteado tras la primera muda y la cola, corta el primer año, aumenta cada temporada hasta su longitud máxima en el quinto o sexto año (Delacour, 1977). Madge y McGowan, para el argus crestado, dan el quinto año como la edad en la que puede alcanzarse la longitud máxima (Madge y McGowan, 2002).
- Pavos reales
- El macho de primer año se parece a la hembra, pero con la cresta y el azul del cuello más desarrollados y las primarias rufas apagadas; en el segundo año se parece al macho adulto, pero con el tren mucho más corto y, en el pavo real verde, sin ocelos; la longitud máxima del tren puede no alcanzarse hasta el quinto o sexto año (Madge y McGowan, 2002). Johnsgard, citando a Delacour, da una pauta similar para el pavo azul: sin ocelos en el segundo año, plumaje completo en el tercero y tren que sigue creciendo hasta el quinto o sexto (Johnsgard, 1986). HBW habla de cuatro años para que el tren se desarrolle del todo (McGowan, en HBW 2, 1994).

Plumaje de eclipse
El plumaje de eclipse es un vestido apagado que algunos machos adoptan tras la cría. En los faisanes se conoce sobre todo en los gallos. Delacour describe en el gallo rojo que, tras la muda de verano, de junio a septiembre, las plumas del cuello se sustituyen por plumas cortas, redondeadas y de color negro apagado, faltan las plumas largas de la cola y la cresta se reduce y pierde color, de modo que hay un eclipse bien definido (Delacour, 1977). Beebe (1921) lo llama un eclipse parcial: las largas plumas rojas y amarillas del cuello se pierden, el resto del plumaje desgastado permanece y se sustituyen enseguida por plumas cortas y oscuras, parecidas a las del plumaje juvenil, con las plumas centrales de la cola cayendo a veces a la vez y a veces algo más tarde; a los dos o tres meses empieza la muda anual y las plumas de eclipse se pierden; la fecha varía con el lugar, y Beebe documenta un ejemplar en plena muda en Darjeeling el 20 de mayo y observa que en Malasia el periodo habitual es agosto (Beebe, 1921). Delacour da incluso un uso práctico: un eclipse completo y un canto corto y seco son, según él, exclusivos del ave silvestre auténtica, mientras que los gallos rojos con sangre doméstica muestran solo vestigios (Delacour, 1977).
| Gallo | Eclipse | Fuentes |
|---|---|---|
| Gallo rojo | Sí, completo: pierde los hackles del cuello y la cola larga; la cresta se reduce | Delacour (1977) (Delacour, 1977); Beebe (1921) (Beebe, 1921); Madge y McGowan (2002) (Madge y McGowan, 2002) |
| Gallo gris (de Sonnerat) | Sí, en verano: pierde las plumas largas de la cola, los hackles se sustituyen por plumas negras cortas y la cresta se arruga; dura unos dos meses | Delacour (1977) (Delacour, 1977); Howman (1979) (Howman, 1979); Madge y McGowan (2002) (Madge y McGowan, 2002) |
| Gallo de Lafayette (de Ceilán) | Delacour: no hay un eclipse verdadero, aunque en verano los machos mudan despacio y la cresta se reduce. Madge y McGowan: no hay un eclipse distinto (texto) o apenas atenuado (lámina) | Delacour (1977) (Delacour, 1977); Madge y McGowan (2002) (Madge y McGowan, 2002) |
| Gallo verde | No hay eclipse; el vestido de macho adulto aparece al primer invierno según Madge y McGowan, aunque no es completo hasta el segundo año según Johnsgard | Delacour (1977) (Delacour, 1977); Madge y McGowan (2002) (Madge y McGowan, 2002); Johnsgard (1986) (Johnsgard, 1986) |
Beebe confiesa que no se ha dado una buena razón del eclipse, pero relacionó con las hormonas otro fenómeno del plumaje, de una manera que hoy se lee como histórica. Señaló que en los faisanes un macho puede adoptar, a lo largo de su vida, el plumaje de la hembra por una lesión de los órganos sexuales, y recordó los experimentos de Morgan en gallinas Sebright, cuyas gónadas contenían células lúteas propias del ovario; de ahí dedujo que esas células ejercen un efecto supresor sobre los caracteres sexuales secundarios del macho (Beebe, 1921). Corder describe un caso moderno parecido, la gineandria: una hembra que deja de poner puede mudar a un plumaje parcialmente masculino y, si sobrevive, mostrar en cada muda más colores de macho; el macho sigue cortejándola aunque nunca vuelva a poner un huevo, y no se trata de un «cambio de sexo» (Corder, s. f.).
Una aclaración sobre la «filocronología»
Entre los documentos del autor de esta web figura una «filocronología»: no se refiere al calendario de plumajes, sino a un árbol evolutivo de 225 galliformes con las edades de los nudos en millones de años (la escala va de 110 a 0), reproducido, según su pie, de un estudio de Stein, Brown y Mooers (2015) (Hernández García, 2009 (documentos)). Sirve para situar en el tiempo la divergencia de los grupos que se comparan en este capítulo, pero no contiene datos de crecimiento ni de muda y no se usa aquí para fechar ningún proceso del desarrollo.
Cuándo es adulto un faisán: plumaje y madurez reproductora
Un, dos o tres años según la especie: una tabla con cuatro fuentes, las discrepancias entre ellas y la diferencia entre completar el plumaje y poder criar.
En la mayoría de las especies, el plumaje adulto y la madurez sexual se alcanzan en el primer año, pero en algunos géneros hacen falta dos años (Tragopan, Lophura) o incluso tres (Pavo, Rheinardia y, probablemente, Argusianus), según Johnsgard (Johnsgard, 1986). HBW coincide en lo esencial: casi todos los fásidos maduran en el primer año, aunque en algunos el macho tarda más en vestirse de adulto; el tren del pavo real azul tarda cuatro años en desarrollarse del todo, mientras que el macho del faisán plateado adopta el plumaje adulto en dos (McGowan, en HBW 2, 1994).
| Especie | Howman (1993): años hasta el plumaje completo del macho | Johnsgard (1986): texto de las fichas | Delacour (1977) | Hernández (2009): madurez sexual en años |
|---|---|---|---|---|
| Faisán ensangrentado | 1 | Plumaje adulto a los 5 meses (observación de Grahame) | — | 1 |
| Tragopán satyr | 2 | El macho no completa el plumaje en el primer año; rara vez cría con un año | Tragopanes: plumaje completo en el 2.º año; algún ave cría en el 1.º | 2 |
| Koklas | 1 | Madurez en el 1.er año | Plumaje adulto en el 1.er año | 2 |
| Monal del Himalaya | 2 | Madurez sexual no antes del 2.º año | Monales: plumaje en el 2.º año | 2 |
| Monal chino | 2 | — | — | 3 |
| Gallo rojo | 1 | Madurez al final del 1.er año, con el macho sin plumaje completo | Plumaje adulto en el 1.er año, con plumas más cortas | 2 |
| Gallo gris (de Sonnerat) | 2 | Dos años; los machos de 1.er año suelen ser infértiles | En el 1.er año se parece al adulto con plumas más cortas; suele ser infértil | 2 |
| Gallo de Lafayette (de Ceilán) | 2 | Dos años para el plumaje completo y la madurez | Plumaje adulto en el 2.º año; no cría en el 1.º | 2 |
| Gallo verde | 1 | Dos años para el plumaje completo y la madurez | Plumaje adulto en el 1.er año, algo más corto; probablemente infértil | 2 |
| Faisán kalij | 1 | Plumaje adulto y cría el año siguiente al nacimiento | Plumaje en el 1.er año | 1–2 |
| Faisán plateado | 2 | Dos años para el plumaje completo y la madurez | Plumaje en el 2.º año; las hembras ponen algo el 1.º y los machos son fértiles el 2.º | 2 |
| Faisán de Swinhoe | 2 | Dos años para el plumaje completo y la madurez | Plumaje en el 2.º año; algunas aves de ambos sexos crían el 1.º | 2 |
| Faisán de Edwards | 1 | Madura en el 1.er año (el imperial, a los dos) | Plumaje adulto el primer otoño; por regla, cría a los dos años | 1 |
| Faisán prelado | 1 | Plumaje en el 1.er año, algo más apagado; cría el 2.º (o el 3.º) | — | 2 |
| Faisán noble | 1 | Plumaje en el 1.er año; madurez reproductiva en el 2.º o el 3.º | Subespecie de Vieillot: aspecto adulto el 1.er año, cría el 2.º | 2 |
| Orejudo marrón y azul | 1 (2) | Madurez normalmente al final del 2.º año; en el azul el macho puede criar el 1.º (Thompson, 1976) | — | 2 |
| Faisán Wallich (Cheer) | 1 | Madurez el año siguiente al nacimiento | Plumaje adulto en el 1.er año, algo más apagado; cría la primavera siguiente | 1 |
| Faisán venerado | 1 | Madurez en el 1.er año | Colilargos: adultos y capaces de criar en el 1.er año | 1 |
| Faisán de Hume | 1 | Madurez en el 1.er año; plumaje adulto de los machos hacia los 5 meses | — | 1 |
| Faisán común | 1 | Ambos sexos maduran y completan el plumaje en el 1.er año | El macho, vestido adulto en el 1.er año, a unos 5 meses | 1 |
| Faisán dorado | 2 | Las hembras ponen el 1.er año; los machos aún sin plumaje final; madurez la primavera siguiente | Plumaje completo el 2.º año; muchos crían el 1.º | 2 |
| Faisán de Lady Amherst | 2 | Machos con plumaje adulto a los 2 años; las hembras ponen el 1.er año | Ídem que el dorado | 2 |
| Faisán pavo gris | 1 | Plumaje adulto, por lo general, en el 1.er año | Adulto en el 2.º año; los jóvenes crían a veces el 1.º | 2 |
| Faisán pavo de Rothschild | 1 | Cerca de dos años en aves de sangre más pura | — | 2 |
| Faisán pavo de Palawan | 2 | Activo sexualmente al año; puede tardar hasta tres en completar el plumaje | — | 2 |
| Argus crestado | 3 | Al menos tres años para el plumaje nupcial; la cola sigue creciendo algunos años más | Tres años; la cola, hasta el 5.º o 6.º | 3 |
| Gran argus | 3 | Los machos empiezan a cantar al año y perfeccionan la voz a los 20 meses; ocelos y longitud de las plumas siguen aumentando varios años | Plumaje completo en el 3.er año | 3 |
| Pavo real azul | 3 | Al 2.º año, sin ocelos; el plumaje completo en el 3.º; el tren sigue creciendo hasta el 5.º o 6.º | — | 3 |
| Pavo real verde | 3 | Madurez sexual en el 3.er año | — | 3 |
| Pavo del Congo | 2 | Plumaje adulto en el 2.º año; hembras fértiles a un año, machos a los 18 meses | — | 2 |
Howman (1993): «el primer número indica el año en que el macho alcanza el plumaje completo; el paréntesis, el año de madurez, que puede preceder o seguir al plumaje adulto»; su tabla añade que las hembras en cautividad suelen poner en su primera temporada. Los datos de Hernández García proceden de su ficha técnica de incubación de 2009. Un guion indica que la fuente no da el dato para esa especie.
Plumaje completo y madurez reproductora no son lo mismo
Johnsgard señala en su tabla 21 que con frecuencia el tiempo hasta la madurez reproductora completa es más largo que el necesario para el plumaje adulto, y que las especies que normalmente crían a partir del segundo año intentan a veces criar en el primero, aunque sin mucho éxito (Johnsgard, 1986). Corder añade que en cautividad muchas especies crían antes que en libertad, probablemente por una alimentación mejor y regular; las hembras pueden poner un año antes de lo esperado, con una primera puesta más pequeña y a menudo infértil, que mejora a lo largo de la primera temporada, y hasta machos con plumaje inmaduro han criado con regularidad (Corder, s. f.). Chintaguay indica que los faisanes de collar son plenamente fértiles a los 9 meses, que la mayoría de las especies ornamentales lo son en su segundo año y que el monal del Himalaya y los pavos reales no lo son hasta el tercero, y añade que esos periodos se pueden acortar con un manejo y una alimentación adecuados (del Campo, 2006). Delacour recoge de un criador de Cleres que las hembras de kalij ponen en su primer año de 12 a 15 huevos, frente a 25–30 en las parejas mayores, con una fertilidad igual (Delacour, 1977); Johnsgard da para el faisán cobrizo en cautividad una puesta de unos 10 huevos por temporada en las hembras de primer año y de 21 a 31 en las de tres a seis (Johnsgard, 1986). En el faisán de Lady Amherst y el dorado, los machos de primer año pueden mostrar actividad sexual pero con un éxito reproductor limitado (Johnsgard, 1986).
En los faisanes de cola larga, Delacour dice que todos son adultos y capaces de criar en su primer año, aunque en cautividad las hembras ponen puestas más completas en el segundo; él lo atribuye, con cautela, a una falta de vitalidad por consanguinidad, mala alimentación o falta de ejercicio de los jóvenes (Delacour, 1977).
El desarrollo conductual: qué hace y qué aprende el polluelo
Un calendario de conductas tomado del gallo bankiva, la impronta, la relación con la madre, las voces del polluelo, las jerarquías y los primeros pasos hacia el cortejo y el territorio.
La conducta de un faisán se va formando desde el primer día, pero la ciencia sabe de ella mucho menos que del plumaje. Johnsgard (1986) toma como modelo para los faisanes en general la revisión de Kruijt (1964) sobre el gallo bankiva de Birmania, la más completa que existe sobre el desarrollo de la conducta de ninguna especie de la tribu, y lo mismo hace HBW para la familia (Johnsgard, 1986; McGowan, en HBW 2, 1994). Para casi todas las demás especies no hay estudios equivalentes y lo que sigue procede de observaciones sueltas de zoos y criadores.
Un calendario del polluelo del gallo bankiva
Según Johnsgard, que resume el estudio de Kruijt, la conducta no social típica de los galliformes desde el nacimiento o poco después incluye la locomoción (andar, correr, saltar, brincar y volar), la alimentación y la bebida, la defecación, el sueño y las llamadas conductas de confort, como estirarse, acicalarse o bañarse en polvo (Johnsgard, 1986). Cronológicamente (Johnsgard, 1986):
- Picoteo del suelo, defecación (acompañada de pasos atrás y estiramiento de las dos alas), estiramientos y, con el peligro, agacharse en el suelo; empiezan ya algunos elementos del baño de polvo (Johnsgard, 1986).
- Carrera con comida: el polluelo que atrapa un bocado grande sale corriendo con él y emite pitidos repetidos (Johnsgard, 1986).
- Caminar, correr, saltar y brincar ya están presentes a más tardar; empieza el rascado del suelo (Johnsgard, 1986).
- Aleteo y acicalado en todas sus formas (picar, mordisquear, acariciar y peinar el plumaje) (Johnsgard, 1986).
- Limpiarse y golpear el pico, rascarse y sacudir la cabeza; los saltos sin orientación pasan a dirigirse hacia otros polluelos, y aparece la amenaza frontal, un breve estiramiento del cuello hacia el otro (Johnsgard, 1986).
- Saltos de ataque y, poco después, picotazos agresivos (Johnsgard, 1986).
- La glándula uropigial se vuelve funcional y con ella el frotado de la cabeza con giro para extender su secreción; el frotado simple de la cabeza solo es funcional a partir de esa edad (Johnsgard, 1986).
- El brincar se convierte en vuelo cuando las plumas del ala sostienen el peso del cuerpo (Johnsgard, 1986).
- La postura de dormir, con el pico metido bajo las escapulares, se completa cuando las plumas de esa zona tienen longitud para sujetarlo (Johnsgard, 1986).
- El agacharse sentado se sustituye por quedarse inmóvil sin sentarse (Johnsgard, 1986).
- Aparecen las patadas durante el salto, aunque no son generales hasta casi el doble de edad; la pelea empieza a mostrar elementos de huida y se hace ambivalente (atacar y huir a la vez); se forman las jerarquías (Johnsgard, 1986).
- Los polluelos aislados muestran conductas de cópula sin elementos agresivos ni de huida (Johnsgard, 1986).
- Primeras apariciones, todavía raras, del vals, de la exhibición lateral y de bajar las dos alas (Johnsgard, 1986).
- El aleteo en su forma social, que a menudo precede a un ataque y puede producir un aplauso, y después el canto del macho (Johnsgard, 1986).
- Las hembras empiezan a agacharse sexualmente, casi siempre ante el vals de un macho (Johnsgard, 1986).
Johnsgard subraya que varias de esas conductas tempranas son el germen de exhibiciones del adulto: la carrera con comida es el precursor del «tidbitting» con el que el macho cortejea a la hembra, el aleteo del cuarto día lo es del aleteo de exhibición de muchos machos, y el vals, nacido en el contexto de las peleas, acaba siendo una exhibición de cortejo; el estiramiento de las alas, en cambio, no se ha ritualizado en ninguna (Johnsgard, 1986). El baño de polvo, que se perfecciona poco a poco, se practica toda la vida siempre que haya un sustrato cálido, seco y suelto (Johnsgard, 1986).
Impronta: a quién sigue el polluelo
Johnsgard resume la impronta filial en los pollos de gallina doméstica: el periodo crítico empieza casi en cuanto el polluelo sale del huevo y dura unos tres días, aunque en aves aisladas puede producirse hasta 7–10 días después; una experiencia breve no suele dejar una preferencia sexual en el adulto (Guiton, 1961), pero en estudios con líneas de gallinas domésticas (leghorn blanca, leghorn parda y dos híbridos de carne) las hembras de las dos leghorn mostraron preferencias de apareamiento por su propia línea, basadas en el plumaje, y los machos criados con hembras de su línea mantuvieron una preferencia más fuerte que los criados con líneas mezcladas, lo que sugiere que la impronta puede influir en las preferencias de apareamiento al menos en machos (Johnsgard, 1986). Son resultados en gallinas domésticas; en faisanes, las fuentes consultadas no aportan experimentos de impronta.
Un criador sí ha especulado con la impronta como causa de un problema real: Howman cree que el efecto de ser criado por personas puede explicar que la fertilidad del faisán orejudo marrón haya caído tanto en años recientes, ya que la mayoría de estas aves parecen anormalmente amistosas con la gente; es una hipótesis suya, no una comprobación (Howman, 1993). Por el mismo motivo, dice, criar bajo la gallina evita que los polluelos se encariñen con las personas (Howman, 1993).
La relación con la madre y con la familia
En las gallinas domésticas los polluelos reconocen a su madre por pistas acústicas y visuales, y la gallina aprende a identificar a sus crías por un proceso de «reconocimiento por impresión» de toda la nidada: un polluelo extraño suele ser aceptado si se parece al grupo y puede ser atacado si es muy distinto, y la conducta del polluelo pesa más que su color (Johnsgard, 1986). Los polluelos de gallina doméstica permanecen en estrecho contacto físico con la madre los primeros 10–12 días; después, entran en un periodo de dispersión en el que empiezan a comer solos pero siguen durmiendo bajo ella, hasta las seis u ocho semanas, cuando la nidada se disuelve gradualmente; las nidadas de faisán también tienden a deshacerse en esas edades (Johnsgard, 1986).
La duración de la vida familiar varía por especies: la nidada del faisán común permanece con la madre unos 70 u 80 días (Johnsgard, 1986), dos meses según Koslova (Delacour, 1977); en el tragopán satyr la familia probablemente permanece unida casi todo el primer año, y de hecho en cautividad la nidada puede mantenerse junta ese año (Johnsgard, 1986); los jóvenes del faisán dorado pueden permanecer con sus padres hasta el comienzo del año siguiente, pero conviene separarlos porque el macho puede herirlos cuando empiezan a ser adultos (Hernández García, 2014); en el gallo rojo, la asociación dura al menos tres meses en cautividad y las nidadas suelen mantenerse juntas hasta bien entrado el otoño (Johnsgard, 1986); y en el gallo gris, los polluelos permanecen con los padres al menos hasta alcanzar el plumaje de primer año, y quizá más tiempo (Johnsgard, 1986).
El papel del macho es muy desigual. En el faisán común no interviene en absoluto, y en el dorado y el de Lady Amherst solo cuida a las crías la hembra (Johnsgard, 1986). En el gallo gris el macho vuelve a la nidada tras la eclosión y ayuda a encontrar comida, y en el Cheer, el macho se une a la familia tras la eclosión y defiende la nidada tan decididamente como la hembra; en el noble (crested fireback) el macho se une a la hembra apenas eclosionan los huevos, alimenta a las crías y las llama tantas veces como la hembra (Johnsgard, 1986). En el pavo del Congo ambos sexos arropan a los polluelos y los llaman para darles comida (Johnsgard, 1986), y en el pavo-faisán de Palawan ambos sexos llaman a las crías y colaboran en alimentarlas (Hernández García, 2014; Johnsgard, 1986). Los manuales de cría advierten del lado contrario: Chintaguay aconseja retirar al macho cuando la hembra empieza a incubar porque, si no, matará a los polluelos (del Campo, 2006); Delacour dice de los tragopanes que el macho rara vez interfiere (Delacour, 1977); Corder, que algunos machos pueden ayudar a criar y otros matar o herir a los polluelos, y que en un caso un macho de tragopán satyr incubó él solo los huevos durante 28 días cuando su joven hembra se negó a sentarse (Corder, s. f.).
La voz del polluelo
Heinz y Gysel (1970) describieron tres llamadas del polluelo del faisán común hasta las siete semanas de edad: la llamada de contento, de dos sílabas con acento en la segunda (algo así como «ter-rit»), que se emite cuando está caliente, descansa con otros jóvenes o se dispone a dormir; la de cautela, ante un objeto extraño; y la de angustia, de las aves separadas de la hembra o aisladas, hambrientas o frías (Johnsgard, 1986). En el pollo de gallina doméstica hay además un trino de placer cuando alguien lo toca y un chillido de angustia, formado por pitidos fuertes repetidos; los espectrogramas publicados muestran que las llamadas de angustia del faisán y de la gallina son muy parecidas, y los pitidos de la carrera con comida del gallo bankiva son también parecidos a ellas (Johnsgard, 1986). La hembra con nidada, por su parte, emite una llamada de precaución, una llamada de vuelo y, si ha volado con los polluelos, una llamada de reunión, un cloqueo o ladrido, para reagruparlos (Johnsgard, 1986). Esa llamada es el nexo: los polluelos de faisán «no entienden el lenguaje de la gallina», según Delacour (1978), y deben permanecer cerca de la gallina nodriza hasta aprenderlo (Delacour, 1978); según Chintaguay, lo reconocen al segundo o tercer día (del Campo, 2006).
Miedo, escondite y depredadores
Johnsgard describe las respuestas de huida más tempranas: postura de alerta con el cuello estirado (a menudo con llamadas, en los primeros días), sacudidas de cabeza, carrera y agacharse; agacharse aparece el primer o segundo día y a las dos semanas se sustituye por quedarse inmóvil sin sentarse (Johnsgard, 1986). Delacour, citando a Koslova, cuenta cómo reacciona la familia del faisán común: si la hembra se levanta durante el descanso, vuela sin ruido y los polluelos se agazapan al instante bajo la vegetación; si la familia está comiendo y los polluelos andan dispersos, la hembra emite al volar un grito suave, la señal de alarma, y los polluelos se dispersan corriendo o volando (Delacour, 1977). En el faisán común, los polluelos de plumón no soportan el calor del sol ni pueden andar sobre el suelo caliente (Delacour, 1977).
Jerarquías: el orden de picoteo
Las jerarquías sociales de los faisanes, llamadas «órdenes de picoteo», se descubrieron en la gallina doméstica y están muy estudiadas: los individuos forman relaciones de dominancia y subordinación poco después de encontrarse, lo que da una jerarquía esencialmente lineal; un grupo mixto suele tener dos órdenes, uno por sexo, porque los machos son más agresivos y las hembras suelen ser pasivas con ellos; mantenerlos exige que cada ave reconozca individualmente a las demás, y tras dos semanas de separación la jerarquía puede deshacerse por olvido (Johnsgard, 1986). El reconocimiento depende del aspecto general del ave y los indicios que se relacionan con la dominancia son el tamaño de la cresta, la ausencia de muda, el tamaño corporal y la postura de amenaza (Johnsgard, 1986). En polluelos de gallo bankiva la jerarquía empieza en la primera etapa de la conducta agresiva, se asienta en la segunda, las pollitas quedan más bajas que los machos y la jerarquía lineal se debe, probablemente, a diferencias de ritmo de desarrollo entre individuos (Rushen, 1982) (Johnsgard, 1986). En un estudio de faisanes comunes de libertad con aves marcadas (Collias y Taber, 1951) los machos de los grupos que comían juntos casi no se apartaban de una jerarquía en línea recta, solo cuando uno se hacía territorial y ganaba, por un tiempo, ventaja sobre dos, y todos los machos dominaban a todas las hembras, pero dejaban de picarlas poco después de empezar la cría; no se pudo correlacionar el peso con la dominancia, aunque la tendencia era positiva (Johnsgard, 1986).
Los criadores han observado esos conflictos entre polluelos sin ese vocabulario. Delacour (1978) indica que el deseo de dominar es más acusado en las aves de dos a tres semanas (Delacour, 1978). Chintaguay recomienda no mezclar tamaños en una criadora y separar a los grandes de los pequeños durante la recría, que es cuando se produce el picaje, sobre todo en el faisán común y el venerado, y cría aparte a las especies de carúnculas de desarrollo rápido, como el plateado y el de Swinhoe (del Campo, 2006). Corder describe un polluelo de Swinhoe criado con dos polluelos de pavo-faisán gris que de repente se unieron para apartarlo de la comida y que se recuperó al criarlo aparte, y otro hábito, el picoteo mutuo de los dedos, que Corder atribuye a que un polluelo confunde los dedos del otro con gusanos de la harina y que se frena con una luz más tenue en la criadora (Corder, s. f.).
El primer cortejo, el territorio y las hormonas
Entre los 50 y los 120 días, los polluelos de gallo bankiva empiezan a ejecutar el vals y el aleteo social, y después el «tidbitting» y la «esquina» (el macho corre a una esquina del recinto, patalea y se agacha), que aparecen a la vez que las primeras cópulas con éxito (Johnsgard, 1986). Kruijt (1964, 1966) comprobó el papel de la compañía en ese proceso: los machos criados con aislamiento visual parcial mostraban más huida, que desaparecía y era sustituida por ataques a su propia cola y agresividad hacia las personas; ninguno de tres machos aislados desde el nacimiento hasta los 15–16 meses realizó conducta copulatoria, y solo dos de ocho aislados hasta los 10–14 meses; tres machos criados en aislamiento visual total, aunque podían oírse, carecían por completo de respuestas sociales normales (Johnsgard, 1986).
El territorio llega después. En el faisán común, según un estudio que Johnsgard cita, los machos se alejan de las zonas de invernada y establecen sus territorios a finales de marzo o principios de abril, y los machos jóvenes se dispersan más lejos de la cobertura invernal que los adultos (un promedio de 0,67 millas frente a 0,24, con un máximo de 3,4 millas) (Johnsgard, 1986). En el koklas se supone que los machos jóvenes se hacen territoriales en la primavera que sigue a la eclosión (Johnsgard, 1986); en el gran argus los machos empiezan a cantar hacia los 12 meses de edad y perfeccionan la voz hacia los 20, y los jóvenes pueden llamar de vez en cuando e intentar hacer pistas de baile, pero nunca llegan a despejar un espacio grande como el de los adultos (Johnsgard, 1986); en el faisán pavo malayo, un pollo criado a mano exhibió por primera vez a los 23 días y los espolones empezaron a salirle en el noveno mes (Medway y Wells, 1976), y machos de entre tres y ocho meses pueden intentar exhibirse ante los adultos (Johnsgard, 1986). En el gallo rojo, los machos de un año no tienen el plumaje completo y probablemente siguen subordinados a los más veteranos durante un tiempo; en el gallo gris suelen ser infértiles (Johnsgard, 1986); y en el faisán dorado, los de segundo año y mayores pueden cortejar brevemente a las hembras a finales de verano y dejan de hacerlo en septiembre (Johnsgard, 1986).
En cuanto a las hormonas, lo que dicen los libros es limitado, pero consistente. Johnsgard indica que la posición de un macho en el orden de picoteo está relacionada con los niveles de andrógenos, porque los indicios de dominancia (cresta, tamaño y ausencia de muda) dependen en parte de ellos, mientras que el papel de los estrógenos en el orden de picoteo no está claro; añade que en un estudio la relación entre el tamaño de la cresta y la frecuencia de cópulas era negativa, lo que sugiere que las diferencias de apareamiento no se deben solo a diferencias de testosterona, y que otras diferencias entre líneas seleccionadas parecen deberse al sistema nervioso central más que a las hormonas o la experiencia (Johnsgard, 1986). También señala que el macho más dominante no siempre es el más activo sexualmente y que su presencia podría reducir la fertilidad del grupo al impedir que otros se apareen (Johnsgard, 1986). Johnsgard cita a Kabat y colaboradores (1950) para vincular la muda más temprana de los machos de faisán común con un ciclo gonadal otoñal también más temprano (Johnsgard, 1986), y Corder señala que los machos en muda son menos agresivos con las hembras y los polluelos (Corder, s. f.). Sobre el control de la estación de cría, Wagner y colaboradores (1965) sugieren que el comienzo de la puesta está ligado a factores relativamente fijos como el fotoperiodo, y Chintaguay recuerda que los faisanes son fotosensibles y que se puede inducir la puesta fuera de época con luz artificial (del Campo, 2006; Johnsgard, 1986). Beebe (1921) ya había asociado las gónadas con el plumaje, como se ha visto antes (Beebe, 1921).
Diferencias entre grupos: bosque, campo abierto, pavos y gallos
Cada grupo de faisanes tiene su propio ritmo de desarrollo: de los polluelos que vuelan al segundo día a los que tardan cinco años en completar el tren.
El desarrollo de un faisán no sigue un único guion. Las especies de bosque cerrado, de borde de bosque, de pastizal de montaña y de campo abierto se reparten tamaños de puesta, ritmos de crecimiento, cuidados parentales y edades de madurez de manera muy distinta, y la tabla siguiente resume lo que dicen las fuentes de los grandes grupos (Johnsgard, 1986).
| Grupo | Incubación (días) | El polluelo | Cuidado de la nidada | Madurez del macho |
|---|---|---|---|---|
| Tragopanes | 28 (Delacour, 1977; Johnsgard, 1986) | Muy precoces: con alas desarrolladas, saltan a un posadero y duermen bajo la hembra a los dos o tres días; crecen despacio y exigen más cuidado y alimento más rico que otros faisanes, con insectos blandos y verdes (Delacour, 1977; Johnsgard, 1986) | La hembra los alimenta con uno o dos insectos ablandados con el pico (Delacour, 1977); el macho rara vez interfiere (Delacour, 1977) | Dos años; rara vez, uno (Howman, 1993; Johnsgard, 1986) |
| Koklas | 26–27 (Johnsgard, 1986) | Muy precoces, vuelan en pocos días; crecimiento rápido; sensibles a las infecciones; prefieren verde desde pronto (Hernández García, 2013; Johnsgard, 1986) | La hembra incuba y cuida; el macho permanece cerca (Johnsgard, 1986) | Uno (Howman, 1993; Johnsgard, 1986) |
| Monales | 28 (Howman, 1993; Johnsgard, 1986) | Poco activos, comen mal; se animan con pollos de otras especies (Hernández García, 2013) | La hembra sola (Johnsgard, 1986) | Dos (el chino, tres según Madge y McGowan) (Howman, 1993; Madge y McGowan, 2002) |
| Gallos (Gallus) | 19–21 (Howman, 1993; Johnsgard, 1986) | Se desarrollan muy deprisa: saltan o vuelan a los 12–15 días; los del gallo de Lafayette requieren una dieta constante de alimento vivo (Hernández García, 2013; Johnsgard, 1986) | Hembra con apoyo del macho en el gris; hay eclipse en el rojo y el gris (Delacour, 1977; Johnsgard, 1986) | Uno o dos (Howman, 1993; Johnsgard, 1986) |
| Gallofaisanes (Lophura) | 21–26 (Howman, 1993; Johnsgard, 1986) | Fuertes y vivarachos, propensos al picaje; el kalij vuela casi como sus padres en pocos días (Hernández García, 2013; Johnsgard, 1986) | La hembra incuba; en el noble y en el de Bulwer el macho se une a la familia tras la eclosión (Johnsgard, 1986) | Uno (kalij, Edwards, noble, prelado) o dos (plateado, Swinhoe, imperial) (Delacour, 1977; Howman, 1993) |
| Orejudos | 24–28 (Howman, 1993; Johnsgard, 1986) | Crecimiento muy rápido: de 40 g a unos 1.500 g en 100 días; peso adulto a los 150 días (Johnsgard, 1986) | La hembra incuba y el macho se queda cerca (Johnsgard, 1986) | Entre uno y dos (Howman, 1993; Johnsgard, 1986) |
| Wallich y faisanes de cola larga | 25–28 (Howman, 1993; Johnsgard, 1986) | Los del Cheer son mansos y fáciles de manejar; los de Hume y Elliot, salvajes al nacer; los del venerado, muy dominantes; los del Mikado, grandes y fáciles de mantener (Delacour, 1978; Hernández García, 2014; Johnsgard, 1986) | La hembra; el macho del Cheer se une a la familia al nacer (Johnsgard, 1986) | Uno (Delacour, 1977; Howman, 1993) |
| Faisanes verdaderos (Phasianus) | 22–25 (del Campo, 2006; Howman, 1993; Johnsgard, 1986) | Precoces y autónomos, con una dieta muy rica en insectos las primeras semanas; vuelan hacia los 12 días (Johnsgard, 1986) | La hembra sola; sin intervención del macho (Johnsgard, 1986) | Uno (Howman, 1993) |
| Dorado y Lady Amherst | 22–23 (Johnsgard, 1986) | Vuelan a los 12–14 días; crecimiento rápido (Johnsgard, 1986) | Solo la hembra (Johnsgard, 1986) | Dos (los primeros años, con éxito limitado) (Howman, 1993; Johnsgard, 1986) |
| Faisanes pavo (Polyplectron) | 18–23 (Howman, 1993; Johnsgard, 1986) | Delicados al principio; esperan que la madre les dé la comida con el pico; se refugian bajo su cola (Delacour, 1977; Johnsgard, 1986) | La hembra incuba; los dos sexos alimentan en algunas especies (Johnsgard, 1986) | Uno o dos (el de Palawan hasta tres para el plumaje) (Howman, 1993; Johnsgard, 1986) |
| Argus | 24–25 (Howman, 1993; Johnsgard, 1986) | Alimentados pico a pico durante días o semanas; crecimiento lento; cuidan abrigo del frío (Delacour, 1977; Johnsgard, 1986) | La hembra sola; el macho se retira del nido (Johnsgard, 1986) | Tres; la cola sigue creciendo hasta el quinto o el sexto año (Delacour, 1977; Howman, 1993) |
| Pavos reales | 26–30 (Howman, 1993; Johnsgard, 1986) | Crecimiento lento; a los 14 días aletean hasta posaderos y a los 20 vuelan (Johnsgard, 1986) | La hembra, con un polluelo bajo cada ala (Johnsgard, 1986) | Tres; el tren sigue creciendo hasta el quinto o el sexto año (Howman, 1993; Madge y McGowan, 2002) |
| Pavo del Congo | 26–28 (Howman, 1993; Johnsgard, 1986) | A los seis días vuelan hasta 5 m (Johnsgard, 1986) | Ambos sexos arropan y llaman a los polluelos (Johnsgard, 1986) | Dos (Howman, 1993; Johnsgard, 1986) |
Las filas resumen las cifras de los apartados anteriores. Los guiones y las lagunas de las fuentes no se rellenan: cuando un grupo no trae un dato, se omite.
Bosque cerrado, borde de bosque y campo abierto
Johnsgard asocia las puestas grandes a las especies de campo abierto, de borde de bosque y comedoras de grano (Phasianus, Gallus), y las pequeñas, de solo dos huevos, a las de bosque (Polyplectron, Argusianus) (Johnsgard, 1986). Al hablar del faisán Mikado, que cría en bosques de montaña, sugiere que la precocidad de los polluelos (en ese faisán, como en los tragopanes, vuelan pronto) puede ser adaptativa en hábitats forestales (Johnsgard, 1986). En estos mismos bosques, la crianza es más lenta y arriesgada: los argus y los faisanes pavo viven mucho (Johnsgard recoge para el faisán pavo gris y el gran argus los récords de longevidad en cautividad de 179 y 163 meses, según Mitchell, 1911) y se reproducen poco, algo que Johnsgard interpreta como posible reflejo de una vida larga en libertad (Johnsgard, 1986).
La estación de cría también cambia con el medio. En las zonas de clima estacional, la aparición de las crías tiende a coincidir con los picos anuales de alimento; en los bosques tropicales no hay picos previsibles, y las puestas son menores (McGowan, en HBW 2, 1994). Corder cuenta que el faisán pavo gris de los Himalayas tiene una estación de cría limitada que sigue el clima de montaña, mientras que el de la selva puede criar casi todo el año; el faisán pavo malayo cría tras los monzones, quizá por la cantidad de insectos para las crías, y los ejemplares nacidos en Malasia y llevados al Reino Unido seguían poniendo sus primeros huevos a finales de diciembre o principios de enero, aunque tuvieran calefacción (Corder, s. f.).
Cómo se comparan con otros galliformes
Johnsgard sitúa a los faisanes (tribu Phasianini) frente a otros grupos de la familia: son del Viejo Mundo, con tamaño de puesta de 1 a 12 huevos, incubación de 18 a 29 días y madurez entre el primer y el tercer año, y a diferencia de los urogallos, las codornices del Nuevo Mundo y las perdices, que maduran siempre al año, presentan una dispersión mayor de las edades (Johnsgard, 1986). En esa misma comparación, la muda de la cola es centrípeta en los faisanes y centrífuga en las perdices, la muda posjuvenil de las primarias es variable en los faisanes e incompleta en los otros tres grupos, y el «tidbitting» y el vals, presentes en los faisanes, faltan en los urogallos (Johnsgard, 1986).
Criar con la madre, con una gallina o a mano
Qué ganan y qué pierden los polluelos criados por sus padres, por una gallina nodriza o en incubadora y criadora, según manuales de cría, un folleto de la WPA y los criaderos.
Hay tres maneras de sacar adelante a un polluelo de faisán: con su madre, con una gallina nodriza y en incubadora con criadora artificial. Para las gallinas nodrizas, Howman (1993) distingue tres variantes: retirar los huevos tres días antes de la eclosión y terminar en una nacedora, dejar que la gallina eclosione y retirar a los polluelos antes de que salgan del nido, o dejar que los críe ella misma (Howman, 1993). Aquí se comentan solo las diferencias que afectan al desarrollo del polluelo; el manejo corresponde al capítulo de avicultura.
Con la madre faisán
Es el método más natural y el que más cuesta. Delacour (1977) dice que las hembras suelen ser buenas madres si el aviario es suficientemente tranquilo y está protegido de alimañas, pero señala los inconvenientes: impide que la hembra ponga más puestas, en años fríos y húmedos las crías perecen a menudo por exposición, y con las especies delicadas las hembras valiosas pueden agotarse y morir; propone retirar los huevos conforme se ponen y dejar la última puesta a la hembra, como en el tragopán y el argus, con el macho aparte (Delacour, 1977). Chintaguay añade que las aves criadas en cautividad pierden casi por completo la capacidad de incubar sus propios huevos, que en la crianza completamente natural solo se pueden esperar de 4 a 8 polluelos por hembra, porque la hembra que incuba deja de poner, y que el macho debe retirarse para que no moleste a la hembra ni mate a los polluelos (del Campo, 2006). Howman señala que con algunas especies la crianza natural funciona hasta la eclosión y que luego los polluelos pasan a través de la malla o el macho los ataca, por lo que no la recomienda si se busca el máximo de resultados, pero reconoce que produce aves de buena calidad, naturales (Howman, 1993). Corder propone un compromiso: dejar que la hembra empolle de siete a diez días, retirar los huevos a la incubadora, y que ella, creyéndolos perdidos, ponga de nuevo y críe esa segunda puesta, con la experiencia de ser madre y con polluelos que se comportan de manera más natural (Corder, s. f.).
Con una gallina nodriza
Delacour (1978) prefiere las gallinas sedosas (Silkie) como nodrizas por ser buenas incubadoras y buenas madres, fáciles de manejar y dispuestas a adoptar crías ajenas, y para los huevos mayores (plateado, orejudos, monal) las Rhode Island Red; recomienda no emplear Leghorn, Ancona ni Minorca, probar a la gallina con huevos de porcelana durante unas 48 horas antes de darle los de faisán, no mezclar huevos de periodos de incubación muy distintos y vigilar a las que matan a los polluelos o a los hijos adoptivos (Delacour, 1978). Chintaguay prefiere las sedosas del Japón y las cochinchinas enanas, con una jaula de malla de no más de un centímetro, porque los polluelos de faisán, más precoces y despiertos que los de gallina, corren al poco de salir del huevo y se pierden por una malla normal; la gallina no sabe llamarlos ni puede seguirlos, y los polluelos aprenden a reconocer su llamada al segundo o tercer día (del Campo, 2006). Este autor advierte también de un efecto en el desarrollo: con gallina, los faisanuchos tienden a aprender los malos hábitos de las gallinas, como escarbar y caminar como ellas, y por eso muchos criadores prefieren criadoras artificiales (del Campo, 2006). Howman añade ventajas de criar bajo gallina con pollos a la intemperie (maduran antes y desarrollan más resistencia a las enfermedades) y desventajas (transmisión de enfermedades de la gallina; a veces abandona el nido por truenos o sustos) (Howman, 1993).
En incubadora y criadora: sin madre
Cuando no hay madre, el criador tiene que hacer lo que hace ella: dar calor, enseñar a comer y beber, mantener al polluelo seco y proporcionarle movimiento. Corder recomienda sacar a los polluelos de incubadora de las cajas interiores y llevarlos al césped lo antes posible, como hace la hembra de faisán, porque el ejercicio ayuda a enderezar dedos torcidos, y recuerda que los polluelos de la gallina natural reciben ese ejercicio desde que dejan el nido (Corder, s. f.). Los de faisán pavo y de argus, que esperan comida del pico de su madre, necesitan ayuda del criador con pinzas o con un pincel, o la compañía de polluelos de otra especie que ya coman (Corder, s. f.; Delacour, 1977; Johnsgard, 1986). El otro riesgo es el de los polluelos en grupo: Chintaguay y Corder dan ejemplos de picaje y de acoso de unos polluelos a otros, y Howman recuerda que mezclar especies puede ser beneficioso porque la competencia estimula a los polluelos poco entusiastas a comer (Corder, s. f.; del Campo, 2006; Howman, 1993).
| Método | Lo que se gana | Lo que se pierde o arriesga | Fuentes |
|---|---|---|---|
| Con la madre faisán | Polluelos de comportamiento más natural; aprenden con ella a comer y a beber | Una sola puesta (la hembra deja de poner); pocos polluelos por hembra; riesgo de que el macho o la hembra dañen a las crías; peligro en tiempo frío y húmedo | Delacour (1977); Chintaguay; Howman (1993); Corder |
| Con una gallina nodriza | Más puestas por hembra; endurecimiento a la intemperie y mayor resistencia a las enfermedades; sin riesgo de impronta humana; la gallina da calor y enseña a comer | Transmisión de enfermedades; la gallina puede matar o abandonar a las crías, o aplastarlas; los polluelos pueden aprender hábitos de gallina; pérdida de polluelos por una malla ancha | Delacour (1978); Chintaguay; Howman (1993) |
| En incubadora y criadora | Control sanitario y de calor; permite criar muchas aves a la vez; evita los riesgos de la gallina | Hay que enseñar a comer y beber; mayor riesgo de picaje y de estrés; posible impronta humana; menos ejercicio al aire libre | Delacour (1977); Chintaguay; Corder; Howman (1993) |
Resumen de esta guía a partir de las fuentes citadas en el texto.
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association (Warrington). Folleto sin fecha de edición, redactado desde la práctica del Reino Unido; cita como obra más reciente sobre el tema la de Howman (1993) y la de Cooper (2003).
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions. Introducción de la familia Phasianidae (Pheasants and Partridges), por P. J. K. McGowan.
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978). Revisión, hecha por Delacour en 1977, del manual de C. F. Denley, Ornamental Pheasants: Their Breeding and Care (1935); los capítulos de alojamiento conservan en lo esencial el texto de Denley.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Hernández García, I. (2009). Documentos técnicos de la web Faisanes del mundo (faisanesdelmundo.com/documentos/): «Ficha técnica de incubación de faisanes» (cuadro de especies, huevos, periodo, época y madurez; © Guía práctica de los faisanes del mundo, 2009), «Incubación: periodos» (infografía), «Diámetros de anilla para faisanes» (2015), «Resultado de la realización de pruebas físicas y químicas en la incubación y sus soluciones» (2009) y «Filocronología de 225 galliformes» (árbol datado; el pie de la figura la atribuye a Stein, Brown y Mooers, Molecular Phylogenetics and Evolution 92: 155–164, 2015).
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Otras obras consultadas
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Cómo citar este capítulo: Hernández García, I. (2026). Crecimiento y desarrollo conductual de los faisanes. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/desarrollo.php.