Qué es un faisán y qué no
El nombre, sus usos y las fronteras del grupo.
Para el aficionado, un faisán es un ave grande, terrestre y de cola larga; para el ornitólogo, la palabra tiene al menos tres sentidos, y casi todas las discrepancias que se leen en los libros sobre cuántos faisanes hay nacen de elegir uno u otro. Esta guía usa el más habitual en la literatura reciente: los faisanes son la subfamilia Phasianinae, dentro de la familia Phasianidae, y se ordenan en 16 géneros con 53 especies.
Un nombre que viene del Cáucaso
El nombre es antiguo. Beebe recordaba que, hace veinticinco siglos, las aves de plumaje brillante y cola larga abundaban en las orillas de los ríos que bajan del Cáucaso al mar Negro; Esquilo llamaba Cólquida a aquella región y Fasis a su río principal, y griegos y romanos hablaban del «ave del Fasis». De esa raíz derivan el inglés pheasant, el francés, el alemán y el italiano, y de ella procede también el nombre científico Phasianus colchicus, el faisán común (Beebe, 1918). La tradición, recogida por Robertson, añade que Jasón y los argonautas trajeron las primeras aves a Grecia en su viaje en busca del vellocino de oro, hacia el año 1300 a. C. según el relato mítico; el mismo autor señala que el río Fasis se corresponde con el actual Rioni, y que la Cólquida queda en la actual Georgia (Green-Armytage, 2002; Robertson, 1997).
Tres maneras de usar la palabra
En el habla corriente «faisán» evoca el ave de caza de los campos europeos y americanos, y mucha gente se sorprende al saber que hay en torno a medio centenar de especies. Howman, que escribía para aficionados, insistía en dos hechos que suelen sorprender más: que todas las variedades de gallina doméstica, desde las bantam hasta las de batería, descienden de un faisán, el gallo rojo, y que el pavo real azul es también un faisán (Howman, 1996). Delacour, en cambio, reconocía que el término no designa un grupo separado por rasgos nítidos: lo reservaba para los miembros de la subfamilia Phasianinae cuyos machos reúnen un plumaje muy especializado y un tamaño grande, mientras que los que carecen de una de esas dos cosas, o de ambas, se llaman perdices y codornices, y entre ellos incluía a grupos tan variados como las gallinas de nieve, los francolines, los perdiceros y las codornices americanas. A su juicio, muchas aves de esos grupos se diferencian entre sí tanto como se diferencian de algunos «faisanes» (Delacour, 1977). Madge y McGowan señalan algo parecido desde otra dirección: como los machos de géneros emparentados lucen plumajes muy distintos, se llegaron a crear muchos géneros para ellos, y el parentesco se aprecia mejor comparando a las hembras (Madge y McGowan, 2002).
Los autores más recientes han resuelto la ambigüedad dando al grupo un rango formal. Johnsgard lo trató como la tribu Phasianini (49 especies) dentro de la subfamilia Phasianinae, frente a la tribu Perdicini de las perdices del Viejo Mundo (Johnsgard, 1986); el Handbook of the Birds of the World lo trata como la subfamilia Phasianinae, con 49 especies, frente a la subfamilia Perdicinae de las perdices y afines, con 106 (McGowan, en HBW 2, 1994); Madge y McGowan siguen el mismo esquema de dos subfamilias (Madge y McGowan, 2002). Es la acepción que adopta esta guía.
| Obra | Cómo delimita a «los faisanes» | Géneros y especies |
|---|---|---|
| Delacour (1951; edición de 1977) | Subfamilia Phasianinae en sentido amplio (con perdices y codornices); «faisanes» en sentido estricto son los machos grandes y ornamentados (Delacour, 1977) | 16 géneros, 49 especies (Delacour, 1977) |
| Johnsgard (1986) | Tribu Phasianini, dentro de la subfamilia Phasianinae, que incluye también a la tribu Perdicini (Johnsgard, 1986) | 16 géneros, 49 especies (Johnsgard, 1986) |
| Handbook of the Birds of the World, vol. 2 (1994) | Subfamilia Phasianinae («pheasants»), frente a Perdicinae, dentro de Phasianidae (McGowan, en HBW 2, 1994) | 16 géneros, 49 especies (McGowan, en HBW 2, 1994) |
| Fuller y Garson (2000) | Los «pheasants» de los galliformes, familia Phasianidae, según la taxonomía de Sibley y Monroe (Fuller y Garson, 2000) | 51 especies (Fuller y Garson, 2000) |
| Madge y McGowan (2002) | Subfamilia Phasianinae, «pheasants and peafowl» (Madge y McGowan, 2002) | 16 géneros; especies numeradas del 111 al 162 en su lista sistemática (Madge y McGowan, 2002) |
| Esta guía (revisión de la taxonomía del 21 de octubre de 2026) | Subfamilia Phasianinae, clasificación tradicional con las actualizaciones de las fichas | 16 géneros, 53 especies, 127 subespecies listadas |
Los totales cambian por criterios de especie, no por la delimitación del grupo; véase la tabla del apartado «Composición de la subfamilia».
Qué rasgos definen al grupo
Johnsgard resumió en su introducción lo que tienen en común los faisanes: aves de tamaño moderadamente grande, terrestres y en general no migratorias; con dedo trasero siempre presente y uñas cortas y romas, adecuadas para rascar; alas cortas y redondeadas con las que el vuelo prolongado es raro o imposible; una dieta sobre todo vegetal, con buche bien desarrollado y molleja muscular que tritura el alimento con ayuda de grava; plumas con raquis accesorio (hiporraquis) y plumón escaso o ausente; nidos que son simples hoyos poco profundos y sin forrar en el suelo; huevos numerosos y sin manchas o apenas manchados; y pollos nidífugos, a menudo capaces de volar distancias cortas en la primera semana o poco más (Johnsgard, 1986).
- Frente a los urogallos
- Tarsos y narinas sin plumas, dedos sin plumas ni pectinaciones laterales y ausencia de los sacos aéreos esofágicos inflables propios de los machos de urogallo (Johnsgard, 1986).
- Frente a las codornices del Nuevo Mundo
- Borde del pico inferior siempre liso, sin dentículos (Johnsgard, 1986). Estas codornices (Odontophoridae) se consideran hoy una familia aparte (Madge y McGowan, 2002; McGowan, en HBW 2, 1994).
- Frente a las perdices del Viejo Mundo
- La separación completa es difícil. En conjunto los faisanes son más grandes y muestran más dimorfismo sexual en tamaño y plumaje; los machos suelen tener plumaje muy iridiscente y tarsos con espolones agudos, y colas graduadas o abovedadas (Johnsgard, 1986). Las perdices suelen mudar la cola desde las plumas centrales hacia fuera y los faisanes, al revés (Madge y McGowan, 2002).
- Frente a pavos y pintadas
- Las pintadas (Numididae) y los pavos (Meleagrididae) fueron subfamilias y hoy se tratan como familias en las obras recientes; las pintadas se caracterizan por cabezas casi desnudas y cascos óseos, y los pavos por los adornos del pecho (Madge y McGowan, 2002; McGowan, en HBW 2, 1994).
- Frente a megápodos y crácidos
- Son familias distintas del orden Galliformes, con adaptaciones propias: pies grandes en los megápodos y adaptaciones arborícolas en los crácidos (Madge y McGowan, 2002; McGowan, en HBW 2, 1994).
Los casos de frontera
Las fronteras no son tajantes porque algunos géneros comparten rasgos de los dos grupos. Según Beebe (en la versión de Johnsgard), Delacour y Madge y McGowan, Ithaginis (el faisán ensangrentado) y Tragopan (los tragopanes) tienen un pie en el mundo de las perdices, porque mudan la cola desde el centro, como ellas (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Los perdiceros del género Galloperdix hacen de puente en el otro sentido: el Handbook y Madge y McGowan los colocan entre las perdices, pero subrayan que por la longitud de la cola y la piel desnuda de la cara recuerdan a los faisanes (Madge y McGowan, 2002; McGowan, en HBW 2, 1994). Verheyen los incluyó entre los Phasianinae, junto a Ithaginis, mientras que Delacour los dejó fuera de su monografía aunque incluyó los otros dos (Johnsgard, 1986). En el extremo opuesto, Madge y McGowan comentan que el género Gallus (los gallos salvajes) es tan peculiar y está tan aislado que cuesta incluso considerarlo «faisán» (Madge y McGowan, 2002). Esta guía sigue la tradición y los trata como faisanes.
Phasianinae dentro de la familia Phasianidae
Del orden Galliformes al grupo de las aves ornamentales: una clasificación que ha cambiado mucho.
Los faisanes pertenecen al orden Galliformes, el de las aves «de corral» y de caza, y a la familia Phasianidae, la mayor de ese orden. Su lugar exacto dentro de ella ha sido objeto de más de un siglo de reordenaciones, que este apartado resume; el detalle de las hipótesis filogenéticas y de los datos moleculares se trata en el capítulo de parentesco y evolución sistemática.
Una familia grande con dos subfamilias
Según el Handbook of the Birds of the World, la familia Phasianidae es la mayor de los galliformes: unas 155 especies de 38 géneros (399 taxones si se cuentan las subespecies), repartidas por el Viejo Mundo con mayor diversidad en el sudeste de Asia y en África. Reúne aves terrestres de cuerpo grueso, pico corto y robusto, alas redondeadas y cola corta o larguísima, con plumajes discretos o espectaculares, de entre 14 y 250 cm de longitud (el máximo incluye una cola de 160 cm), y 40 de sus especies estaban amenazadas en 1994 (McGowan, en HBW 2, 1994). Se divide en dos subfamilias: las perdices y afines (Perdicinae), con 106 especies de 22 géneros, entre ellos los francolines, las codornices del Viejo Mundo, las gallinas de nieve (Tetraogallus) y las perdices del género Alectoris, y los faisanes (Phasianinae), con 49 especies de 16 géneros en la obra de 1994 (McGowan, en HBW 2, 1994).
La familia tal como se entiende hoy es más pequeña que la que manejaron los autores del siglo XIX y de buena parte del XX. Elliot, en su monografía de 1872, incluía en los Phasianidae incluso a los pavos y a las pintadas (Elliot, 1872). Delacour, en 1977, todavía metía en la subfamilia Phasianinae a las codornices americanas, mientras que los urogallos, las pintadas y los pavos quedaban como subfamilias o familias próximas (Delacour, 1977; Johnsgard, 1986). Las comparaciones de ADN permitieron separar después a las codornices del Nuevo Mundo como familia propia (Odontophoridae), y los urogallos, las pintadas y los pavos pasaron a ser generalmente familias, no subfamilias (Madge y McGowan, 2002). El Handbook advierte, sin embargo, de que esa reducción de unas 200 especies a las 155 actuales no es unánime y de que algunas clasificaciones recientes siguen incluyendo parte de esos grupos como subfamilias (McGowan, en HBW 2, 1994).
Cómo se ha ido ordenando a los faisanes
El criterio que más ha influido en la clasificación de los faisanes lo propuso Beebe, que antes de escribir su monografía pasó varios meses estudiando ejemplares en los grandes museos. Tras examinar «varias decenas» de caracteres anatómicos, eligió el orden en que se renuevan las plumas de la cola (las rectrices) como criterio principal de agrupación de géneros (Johnsgard, 1986). Las perdices del Viejo Mundo mudan de dentro hacia fuera, empezando por el par central (muda centrífuga); la mayoría de los faisanes típicos lo hacen justo al revés, de fuera hacia dentro (muda centrípeta); en los pavos reales la muda arranca del segundo par contando desde el exterior, y en los faisanes pavo y los argus empieza en el tercer par desde el centro y avanza a la vez hacia dentro y hacia fuera (Johnsgard, 1986; McGowan, en HBW 2, 1994). Con esos cuatro modos de muda, Beebe propuso separar subfamilias (Perdicinae, Phasianinae, Pavoninae y Argusianinae), y Stresemann apoyó más tarde sus observaciones (Johnsgard, 1986).
| Modo de muda de la cola (Beebe, 1914) | Secuencia | Géneros incluidos en ese modo |
|---|---|---|
| Centrífuga (Perdicinae de Beebe) | Empieza por las rectrices centrales y avanza hacia fuera | Perdices del Viejo Mundo, más Ithaginis y Tragopan (Johnsgard, 1986; McGowan, en HBW 2, 1994) |
| Centrípeta (Phasianinae de Beebe) | Empieza por las rectrices exteriores y avanza hacia dentro | La mayoría de los faisanes típicos (Johnsgard, 1986; McGowan, en HBW 2, 1994) |
| Pavoninae de Beebe | Empieza por el segundo par desde el exterior; el par externo cae poco antes que los internos | Pavos reales (Pavo) (Johnsgard, 1986; McGowan, en HBW 2, 1994) |
| Argusianinae de Beebe | Empieza por el tercer par desde el centro y avanza a la vez hacia dentro y hacia fuera | Faisanes pavo, argus (Polyplectron, Argusianus, Rheinardia) (Johnsgard, 1986; McGowan, en HBW 2, 1994) |
Johnsgard y el Handbook resumen el criterio de Beebe; la ubicación del pavo del Congo, descubierto en 1936, quedó fuera de su esquema original (Johnsgard, 1986).
El criterio tiene excepciones, y las fuentes lo muestran. Marien señaló que al menos dos géneros de perdices (Perdix y Ammoperdix) inician su primera muda de la cola en el tercer o cuarto par, y que un ejemplar de perdiz de las nieves (Lerwa lerwa) mostraba una muda más bien centrípeta; Mueller y Seibert vieron que el faisán venerado joven muda la cola de dentro hacia fuera y el adulto, al revés (Johnsgard, 1986). Delacour, que valoraba el criterio como corroboración de otros rasgos, sostenía que el koklas (Pucrasia) muda de fuera hacia dentro como los ocho géneros siguientes de su lista, mientras que Madge y McGowan afirman que el koklas, como el ensangrentado y los tragopanes, empieza por las plumas centrales (Delacour, 1977; Madge y McGowan, 2002). Es una de las discrepancias que se muestran más adelante.
Después de Beebe, Peters (1934) metió a todas las perdices y afines, además de los faisanes típicos, en la subfamilia Phasianinae, y Delacour (1977) fue más lejos al incluir también a las codornices americanas (Johnsgard, 1986). Verheyen (1956) propuso otra clasificación basada en proporciones del esqueleto, con una subfamilia Phasianinae que agrupaba a Galloperdix e Ithaginis con los demás faisanes y un Pavoninae sólo con Pavo; von Boetticher (1939) dividió la familia en nueve subfamilias, y Wolters (1975–1982) en quince, repartiendo a los faisanes típicos en ocho de ellas (Johnsgard, 1986). Sibley y Ahlquist (1972), con electroforesis de las proteínas de la clara, propusieron separar faisanes y perdices en dos subfamilias, aunque advirtieron de que harían falta más estudios (Johnsgard, 1986). El Handbook cuenta que al menos 17 filogenias distintas se habían propuesto hasta 1994, y que el pavo real podría estar más cerca de las pintadas que de otros faisanes; recuerda también que la lista práctica de especies de los faisanes ha sido mucho más estable que las hipótesis de parentesco, porque casi todos los autores siguen la secuencia de Delacour (McGowan, en HBW 2, 1994). Un estudio molecular citado por Fuller y Garson (2000) sugería incluso que faisanes y perdices quizá no formen dos grupos naturales separados (Fuller y Garson, 2000).
Delacour defendía que los faisanes se reparten en 16 grupos con vínculos entre sí distantes o poco evidentes, «aparentemente de origen polifilético»; Johnsgard, por su parte, pensaba que el grupo bien podría ser polifilético, al derivar de perdices que abandonaron independientemente la monogamia (Delacour, 1977; Johnsgard, 1986). Esa idea reaparece, con otras palabras y otros métodos, en el capítulo de sistemática.
Lo que se ha contado de géneros y especies
La cuenta de géneros y especies ha cambiado tanto como la clasificación. Delacour recogió en su monografía cuántos géneros y especies figuraban en las obras generales sucesivas, y Johnsgard repitió la cuenta con cifras algo distintas; la comparación muestra una tendencia clara: con el tiempo han disminuido las especies reconocidas (y los géneros hasta 16) y han aumentado las subespecies (Delacour, 1977; Johnsgard, 1986).
| Obra | Según Delacour (1977) | Según Johnsgard (1986) |
|---|---|---|
| Linneo, 1758 | 3 géneros y 7 especies | — |
| Elliot, 1872 | 12 géneros, 63 especies, 1 subespecie | 17 géneros y 77 especies |
| Ogilvie-Grant, 1892–1893 | 17 géneros, 77 especies, 11 subespecies | 17 géneros y 77 especies |
| Beebe, 1918–1922 | 19 géneros, 63 especies, 49 subespecies | 19 géneros y 61 especies (sin el pavo del Congo, aún no descubierto) |
| Peters, 1934 | 21 géneros, 50 especies, 106 subespecies | 21 géneros y 49 especies (sin el pavo del Congo) |
| Delacour, 1951–1977 | 16 géneros, 49 especies, 122 subespecies | 16 géneros y 49 especies; hasta 124 subespecies descritas en su resumen de 1977 |
| Johnsgard, 1986 | — | 16 géneros y 49 especies |
Delacour cuenta las subespecies sin incluir las especies monotípicas. Las diferencias entre los dos autores en las filas de Elliot, Beebe y Peters no se explican en las fuentes; Beebe, además, dice haber reducido a 19 los 22 géneros que consideró de los 51 en que Sharpe dividía la familia (Beebe, 1918; Delacour, 1977; Johnsgard, 1986).
Un grupo con historia fósil
Las aves parecidas a faisanes y perdices fueron abundantes en Europa durante el Terciario; los fósiles más antiguos que se conocen en Gran Bretaña son del Eoceno inferior, y todos los anteriores al Plioceno pertenecen a géneros extinguidos, aunque un fósil del Mioceno medio de Namibia podría ser de un francolín primitivo (McGowan, en HBW 2, 1994). Delacour mencionó faisanes grandes del Mioceno en el sur de Francia, que Percy Lowe, tras estudiar sus restos, creía emparentados con el actual género Lophura (Delacour, 1977). Beebe añadía que algunos de ellos eran mayores que cualquier faisán vivo, y que los faisanes actuales descienden probablemente de antepasados asiáticos, quizá cercanos al Himalaya, de los que una oleada llegó a Europa en el Mioceno (Beebe, 1918). Todos los faisanes actuales de Europa fueron llevados allí por el ser humano (Beebe, 1918).
Composición de la subfamilia: 16 géneros y 53 especies
Los géneros, las especies y los puntos en que los autores discrepan.
La lista que sigue esta guía es la clasificación tradicional, heredada de Delacour y de su secuencia de géneros, con las actualizaciones que las fichas discuten una por una: 16 géneros, 53 especies y 127 subespecies catalogadas. La tabla completa, con la autoría de cada nombre y el estado de conservación, está en la taxonomía de los faisanes del mundo; aquí se resume por géneros.
El Handbook comenta que la lista de los faisanes ha variado poco entre las obras porque casi todos los autores siguen la secuencia de Delacour; sus desacuerdos se reducen a dos detalles de orden (si Gallus precede a Lophura o al revés, y si el pavo del Congo va antes o después de Pavo) y a unos pocos casos de formas que unos tratan como especie y otros como subespecie (McGowan, en HBW 2, 1994). La longitud de la última columna es la longitud total del macho, que incluye la cola o el «tren», según Madge y McGowan (Madge y McGowan, 2002).
Recuento de especies y subespecies: taxonomía de la guía (revisión del 21 de octubre de 2026). Longitudes: Madge y McGowan (2002) (Madge y McGowan, 2002); en Crossoptilon, Lophura y alguna otra especie la obra no separa los sexos o da un rango común. Las regiones son una agrupación práctica de la web, no límites biogeográficos estrictos: por ejemplo, las dos especies de Taiwán (faisanes de Swinhoe y mikado) figuran bajo «Sudeste asiático».
Cómo se agrupan los géneros
Delacour, tras revisar las colecciones de los grandes museos y observar aves vivas, dividió a los faisanes en 16 géneros «naturales» y los ordenó por afinidades. Su esquema, que sigue siendo la base de la secuencia en casi todas las obras, puede resumirse así (Delacour, 1977):
- Ithaginis y Tragopan
- Ligeramente emparentados con las perdices (mudan las rectrices desde el par central), aunque tienen poco más en común (Delacour, 1977).
- Pucrasia y Lophophorus
- El koklas muestra en hábitos, comportamiento y aspecto cierta relación con los tragopanes, pero muda la cola al revés; los monales se vinculan débilmente a ellos por el parecido del plumaje de las hembras, y por lo demás son un género muy aislado (Delacour, 1977).
- Gallus
- Aislado: su parentesco con Phasianus por un lado y con Lophura por otro no es estrecho ni muy evidente (Delacour, 1977).
- Lophura
- Delacour unió aquí a los kalijes, plateados, faisanes azules y faisanes de fuego, que otros autores habían repartido en géneros como Gennaeus, Hierophasis, Houppifer, Diardigallus o Lobiophasis; todos tienen barbillas faciales eréctiles y cola comprimida, y formas como los faisanes de Edwards, imperial y de Salvadori sirven de eslabón entre ellos (Delacour, 1977).
- Crossoptilon y Catreus
- Los faisanes orejudos comparten con los monales un pico fuerte y curvo y el hábito de cavar, quizá por simple paralelismo funcional, y son los únicos faisanes con plumaje idéntico en ambos sexos; sus colas largas y comprimidas y sus barbillas aterciopeladas recuerdan a las de los kalijes, con los que dan híbridos semifértiles. El Wallich (cheer) ocupa una posición aislada, es también cavador de pico fuerte y se acerca algo a los orejudos (Delacour, 1977).
- Syrmaticus, Phasianus y Chrysolophus
- Los faisanes de cola larga son cinco especies, cuatro de ellas lo bastante distantes como para dar híbridos parcialmente estériles; los faisanes comunes se parecen en apariencia a ellos pero difieren mucho en forma y hábitos, y tienen la distribución más amplia de todos los géneros; los de golilla se relacionan algo con los comunes y parecen enlazarlos con los faisanes pavo (Delacour, 1977).
- Polyplectron, Rheinardia y Argusianus
- Emparentados con certeza: mudan las rectrices desde el tercer par hacia dentro y hacia fuera y ponen dos huevos por nidada (Delacour, 1977).
- Pavo y Afropavo
- Los pavos reales son únicos, con ocelos grandes y flecados distintos de los de los argus; el pavo del Congo se emparenta con ellos con seguridad, aunque a bastante distancia (Delacour, 1977).
Subespecies: de 0 a 33 por género
La tabla recoge las subespecies que figuran en la clasificación tradicional que sigue la guía, y esas cifras dicen más de la historia de los estudios que de la biología. Phasianus (33), Lophura (29) e Ithaginis (14) acumulan la mayor parte, mientras que Catreus, Chrysolophus y Afropavo no tienen ninguna. En muchos casos las formas descritas se funden unas en otras sin límites claros: Madge y McGowan opinan, por ejemplo, que la variación del faisán ensangrentado es en gran parte clinal, con dos o quizá tres grupos de subespecies identificables (Madge y McGowan, 2002). El kalij y el plateado, tratados hoy como dos especies, suman 23 subespecies según Madge y McGowan y 24 (9 y 15) según el Handbook, que añade que sus formas se habían descrito originalmente como al menos 49 taxones en 28 especies de cuatro géneros (Madge y McGowan, 2002; McGowan, en HBW 2, 1994).
Formas cuyo rango cambia según el autor
La diferencia entre las 49 especies de Delacour, Johnsgard y el Handbook y las 53 de esta guía se explica por un puñado de formas que unos tratan como especies y otros como subespecies. La tabla muestra cómo las han tratado las obras principales.
| Forma | Johnsgard (1986), Delacour y Beebe | HBW (1994) y Fuller y Garson (2000) | Madge y McGowan (2002) | Esta guía |
|---|---|---|---|---|
| Faisán pavo de Borneo (Polyplectron schleiermacheri) | Especie para Beebe y Johnsgard; subespecie de P. malacense para Delacour (Delacour, 1977; Johnsgard, 1986) | HBW: incluido tradicionalmente en malacense, pero distinto según investigaciones recientes; Fuller y Garson: especie, En Peligro (Fuller y Garson, 2000; McGowan, en HBW 2, 1994) | Especie (Madge y McGowan, 2002) | Especie, con nota de que algunos autores la incluyen en P. malacense |
| Faisán de Edwards y faisán vietnamita (Lophura edwardsi, L. hatinhensis) | Johnsgard no cuenta el vietnamita entre sus 49 especies (Johnsgard, 1986) | HBW: el vietnamita se trata a veces como especie, pero es mejor incluirlo en el de Edwards; Fuller y Garson: dos especies En Peligro (Fuller y Garson, 2000; McGowan, en HBW 2, 1994) | Dos formas dentro de Lophura (edwardsi) (Madge y McGowan, 2002) | Una sola especie desde 2012; el faisán de Edwards (L. edwardsi), En Peligro Crítico |
| Faisán imperial (Lophura imperialis) | Especie válida (Delacour, 1977; Johnsgard, 1986) | Fuller y Garson: Datos Insuficientes por incertidumbre taxonómica; el estudio de Rasmussen (1998) lo interpreta como híbrido silvestre entre el plateado y el de Edwards o el vietnamita (Fuller y Garson, 2000) | Especie (Madge y McGowan, 2002) | Se lista, pero como forma híbrida natural no evaluada (NE) |
| Faisán de Salvadori y de Hoogerwerf (Lophura inornata, L. hoogerwerfi) | Dos subespecies de una misma especie, la de Salvadori (Johnsgard, 1986) | HBW: el de Hoogerwerf se ha tratado a veces como especie, pero casi todos los autores lo mantienen en el de Salvadori; Fuller y Garson: dos especies Vulnerables (Fuller y Garson, 2000; McGowan, en HBW 2, 1994) | Dos formas dentro de Lophura (inornata) (Madge y McGowan, 2002) | Una especie, L. inornata, con hoogerwerfi como subespecie |
| Faisanes de fuego (Lophura erythrophthalma, L. pyronota; L. ignita, L. rufa) | Dos especies, cada una con formas de la península malaya y de Borneo (Fuller y Garson, 2000; Johnsgard, 1986) | Fuller y Garson mantienen dos especies con esas formas como subespecies (Fuller y Garson, 2000) | Dos especies (Madge y McGowan, 2002) | Cuatro especies, tras la separación de 2014 (autoría: del Hoyo y Collar) |
| Faisán orejudo del Tíbet (Crossoptilon harmani) | Subespecie del orejudo blanco (Delacour, 1977; Johnsgard, 1986) | HBW: suele ser una de las cinco subespecies del blanco, pero a veces se trata como especie; Fuller y Garson: especie, Casi Amenazada, aunque con la salvedad de que se suele considerar subespecie (Fuller y Garson, 2000; McGowan, en HBW 2, 1994) | Especie (Madge y McGowan, 2002) | Especie, con nota de que algunos autores la incluyen en C. crossoptilon |
| Faisán verde (Phasianus versicolor) | Especie, por el patrón de color (Delacour) (Delacour, 1977) | HBW: queda sin resolver si es especie o subespecie del faisán común; Fuller y Garson no la separan del común (Fuller y Garson, 2000; McGowan, en HBW 2, 1994) | Especie, aunque con buenos argumentos para considerar ambas conespecíficas (Madge y McGowan, 2002) | Especie |
| Faisán pavo de Hainan (Polyplectron katsumatae) | Subespecie, más pequeña, del faisán pavo gris (Delacour, 1977; Johnsgard, 1986) | Fuller y Garson: subespecie de bicalcaratum que algunos autores consideran especie (Fuller y Garson, 2000) | Especie (Madge y McGowan, 2002) | Especie, En Peligro |
| Gran argus de doble banda (Argusianus bipunctatus) | Especie para Delacour y Beebe; Johnsgard la considera, como mucho, subespecie (Johnsgard, 1986) | HBW: sólo se conoce una pluma, y no está claro cuán cerca está del gran argus (McGowan, en HBW 2, 1994) | Especie aparte, descrita a partir de un fragmento de pluma primaria (Madge y McGowan, 2002) | Subespecie bipunctatus del gran argus |
Las notas 1 a 8 de la taxonomía completa explican estos casos. Fuller y Garson (2000) manejan 51 especies, porque separan además el faisán orejudo del Tíbet, el faisán vietnamita y el de Hoogerwerf y no separan el faisán verde.
Forma y tamaño
De un faisán del tamaño de una perdiz a un pavo real de más de dos metros con su tren.
Los faisanes son aves de cuerpo recio y apariencia de gallinácea, pero con un rango de tamaños muy amplio: los menores miden entre 35 y 50 cm (la hembra del faisán pavo de Borneo, 35,5 cm; el macho del ensangrentado, 44–48) y los mayores, contando la cola o el tren, superan los dos metros. Casi toda esa variación se debe a las plumas de la cola; el cuerpo en sí varía mucho menos.
La forma general
El Handbook describe a los fasiánidos como aves terrestres de cuerpo rechoncho, grande en proporción a la cabeza, el pico, el cuello, las alas y la cola, aunque algunos faisanes tienen alas y colas largas; tienen músculos pectorales bien desarrollados, necesarios para despegar con ráfagas cortas y potentes de aleteo; el pico es corto y robusto y sirve para cavar en muchas especies, y las patas son fuertes y a menudo relativamente cortas (McGowan, en HBW 2, 1994). Madge y McGowan añaden que los machos de la subfamilia tienden a ser grandes, de cola larga y plumaje iridiscente (Madge y McGowan, 2002). Johnsgard definía a los faisanes como aves de tamaño moderadamente grande (Johnsgard, 1986).
Una escala de unos 40 cm a más de 2 m
La longitud total que se da en las guías incluye la cola (y, en los pavos reales, el tren). Por eso en casi todas las especies de cola larga la diferencia de tamaño entre machos y hembras se debe sobre todo a la cola del macho, como señalan Madge y McGowan especie por especie (Madge y McGowan, 2002). Los extremos son estos:
| Especie | Longitud total del macho (cm) | Longitud total de la hembra (cm) | Peso del macho (g) | Peso de la hembra (g) |
|---|---|---|---|---|
| faisán ensangrentado | 44–48 | 40–42 | 482–655 | 410–620 (tres ejemplares de la subespecie berezowskii) |
| faisán pavo de Borneo | c. 50 | 35,5 | sin datos | sin datos |
| faisán pavo de Palawan | c. 50 | c. 40 | 436 (media de dos) | 322 (media de dos) |
| faisán pavo de Sumatra | c. 56 | c. 40 | 425 y 590 (dos cautivos) | 238–269 (cuatro cautivas) |
| faisán koklas | 58–64 | 52,5–56 | 1.135–1.415 | 1.025–1.135 |
| faisán común | 75–89 | 53–62 | 1.150 (media, subespecie nominal) | 850 (media) |
| pavo del Congo | 64–70 | 60–63 | 1.361 y 1.475 (dos cautivos) | 1.135 y 1.154 (dos cautivas) |
| faisán orejudo marrón | 96–100 (sexos muy parecidos) | ídem | 1.650–2.475 | 1.450–2.025 |
| faisán dorado | 100–115 | 61–70 | 575–710 | 550–665 |
| faisán de Lady Amherst | 130–173 | 66–68 | 675–850 | 624–804 |
| gran argus | 160–200 | 74–75 | 2.040–2.605 (hasta 2.725 en cautividad) | c. 1.700 (una hembra) |
| pavo real azul | 180–230 | 90–100 | c. 4.000–6.000 | c. 2.750–4.000 |
| faisán argus de Rheinard | 190–235 | 74–75 | sin datos | sin datos |
| faisán venerado | 210 | no se reproduce (véase la nota) | 1.529 (media, cautivos) | 949 (media, cautivas) |
| pavo real verde | 180–300 | 100–110 | 3.850–5.000 | véase la nota |
Medidas de Madge y McGowan (2002) (Madge y McGowan, 2002); los pesos de los cautivos de los faisanes de Palawan y de Sumatra, del pavo del Congo y del gran argus coinciden con los que da Johnsgard (1986), que los toma de registros de zoológicos y de otros autores (Johnsgard, 1986). Los pesos de muchas especies proceden de unos pocos ejemplares, casi siempre en cautividad.
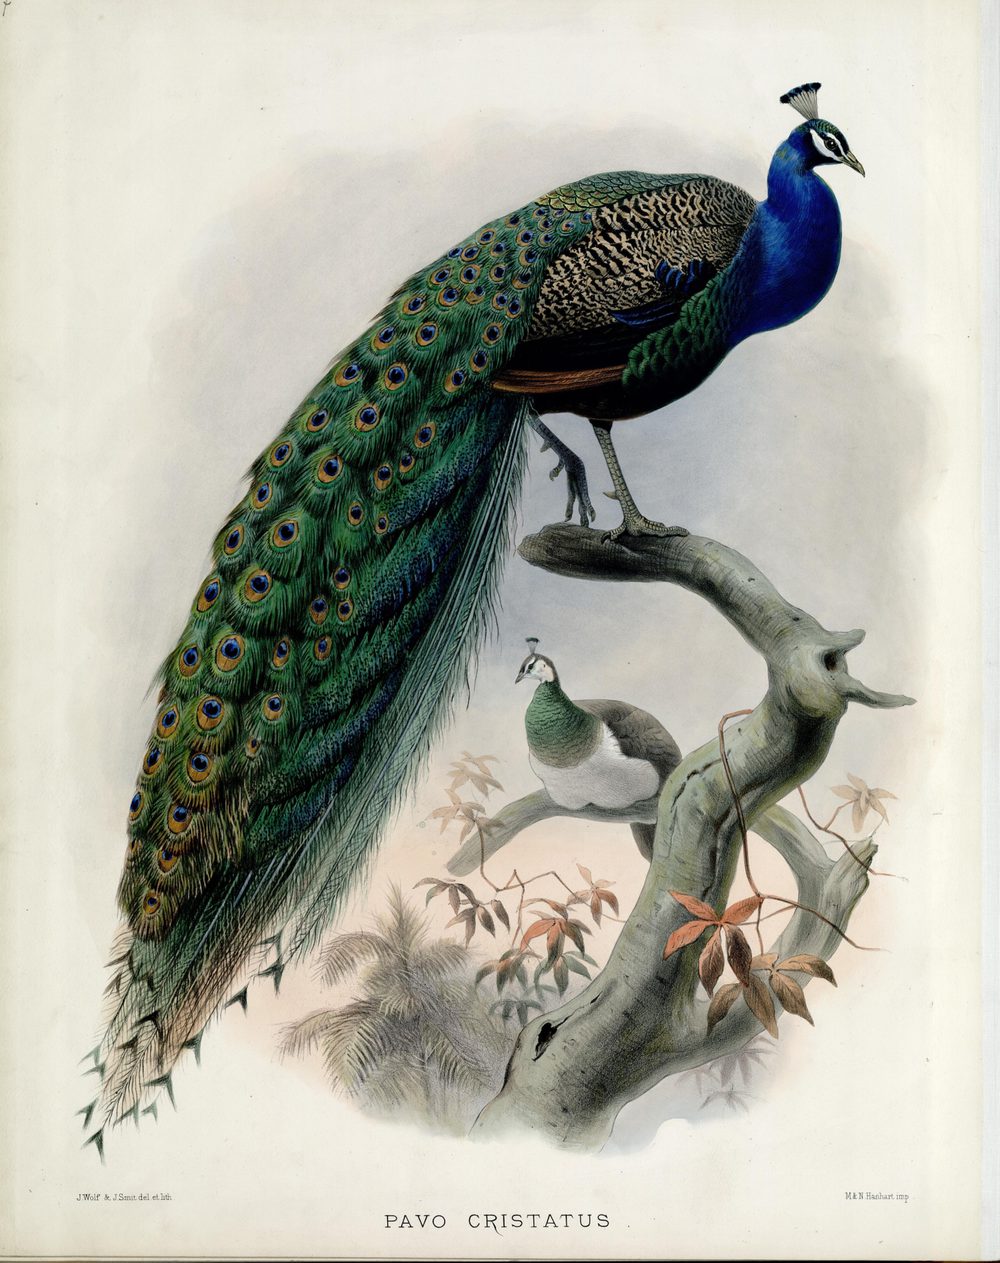
Los extremos por abajo los ocupan los faisanes pavo (Polyplectron) y el ensangrentado: el de Borneo, con una hembra de apenas 35,5 cm, y el de Sumatra, con hembras de 238–269 g, el peso más bajo que dan Madge y McGowan para un faisán (Johnsgard, 1986; Madge y McGowan, 2002). Por arriba, los pavos reales son los mayores de todos los faisanes: Madge y McGowan lo dicen expresamente, con machos de 4–6 kg en el pavo real azul y de 3,85–5 kg en el verde; el Handbook da hasta 6 kg para el azul, con un ala de 50 cm (Madge y McGowan, 2002; McGowan, en HBW 2, 1994). Entre los demás grandes, el faisán de Rheinard (190–235 cm, con una cola de 1.500–1.700 mm que, según Madge y McGowan, puede llevar las plumas más largas de cualquier ave), el gran argus y el faisán venerado deben gran parte de su longitud a la cola, no al cuerpo (Madge y McGowan, 2002). En la familia completa, el Handbook da como rango habitual de pesos de los fasiánidos de 130 g a 2 kg, con alas de 11 a 25 cm; las codornices del género Coturnix son las más pequeñas, con ejemplares de solo 43 g (McGowan, en HBW 2, 1994).
Macho y hembra: cuánto más grande es el macho
En los faisanes los machos son por lo general más grandes que las hembras, pero en grado muy distinto. Johnsgard, a partir de los pesos de sus fichas de especie, estimó en su cuadro 14 razones de peso macho/hembra de entre 1,1 y 1,7, y observó algo poco intuitivo entre las especies poligínicas de borde de bosque: la razón parecía mayor en las formas con menos dicromatismo y menor en las más vistosas; en el gran argus y en los pavos reales, en cambio, las hembras pesan aproximadamente dos tercios del peso del macho, razón cercana al 2:1 de algunos urogallos de zonas de exhibición; para el faisán de Rheinard no había datos de peso (Johnsgard, 1986). En los faisanes orejudos, que no tienen dimorfismo de color, la diferencia de tamaño es pequeña: según Madge y McGowan, en el orejudo marrón los sexos son muy parecidos en tamaño y en el azul el macho es algo mayor; en el faisán de Salvadori, el macho sólo es un poco mayor que la hembra (Madge y McGowan, 2002).
Más grandes al norte y en las montañas
Dentro de una misma especie el tamaño cambia con la latitud y la altitud. Madge y McGowan observan que las poblaciones septentrionales del faisán común suelen ser mayores que las meridionales (el ala del macho de hagenbecki, del oeste de Mongolia, mide 260–265 mm; la de rothschildi, de Yunnan, 210–230) y que las formas del norte del plateado son más grandes y de cola mucho más larga: la cola del macho de omeiensis mide 765–800 mm y la de crawfurdii, una de las más meridionales, sólo 270–290 (Madge y McGowan, 2002). Johnsgard hacía notar que el monal chino, que vive unos 2.000 m más arriba que el monal del Himalaya, es sensiblemente mayor, y sugería que el cuerpo grande podría ser una adaptación al frío de esas altitudes (Johnsgard, 1986).
El tamaño también cambia con la crianza humana. Robertson recoge que, en una zona de estudio de Gran Bretaña, los faisanes comunes abatidos pasaron de pesar, en los años cincuenta, 1.335 g (machos) y 993 g (hembras) a 1.423 g y 1.107 g a mediados de los ochenta, un 7 % y un 11 % más; y que esa tendencia se repite en buena parte del país donde se sueltan aves criadas, de modo que los grandes se ven donde hay una larga historia de cría y los pequeños donde las fincas dependen de aves silvestres (Robertson, 1997).
Dimorfismo, plumaje y ornamentos
Colores, colas, espolones, crestas y piel desnuda: lo que hace «ornamental» a un faisán.
Además de ser en general mayores que las perdices, muchos faisanes se distinguen por el despliegue del macho: plumajes iridiscentes, colas larguísimas, crestas, golillas, espolones y piel facial desnuda. En muchos géneros la hembra, en cambio, es parda y moteada, y apenas se distingue de otras hembras; en unos pocos, los sexos son casi iguales.
Del dimorfismo marcado a la igualdad de sexos
Según el Handbook, la mayoría de las hembras de la familia pueden describirse como crípticas, en combinación de pardos, grises, negros y blancos, y el grado de dimorfismo sexual varía mucho de unas especies a otras. Dos estudios sobre todos los galliformes encontraron, por una parte, que cuanto mayor es la diferencia de tamaño entre sexos, mayor es también la de color (Sigurjónsdóttir), y, por otra, que ambos dimorfismos son menores en las especies monógamas, y que las especies de bosque son mayores y más coloridas que las de hábitats abiertos (Ridley); los machos grandes y vistosos tienden además a ayudar poco en la crianza (McGowan, en HBW 2, 1994). Johnsgard resumió la relación entre sistema de apareamiento y dimorfismo en los 16 géneros de faisanes y encontró un apoyo moderado a esa idea: los tres géneros con pareja estable durante toda la temporada (Ithaginis, Crossoptilon y Catreus) tienen poco dicromatismo y los machos carecen de iridiscencia, aunque en el resto de géneros el patrón es menos nítido (Johnsgard, 1986).
| Grupo (Johnsgard, 1986) | Géneros | Dicromatismo sexual |
|---|---|---|
| Monógamos de zonas abiertas o de matorral | Ithaginis (moderado); Crossoptilon y Catreus (ligero) | Entre ligero y moderado |
| Poligínicos de borde de bosque | Gallus, faisanes comunes y Syrmaticus (moderado); monales (alto) | Entre moderado y alto |
| Monógamos de bosque | Pavo del Congo (ligero); koklas y tragopanes (moderado) | Entre ligero y moderado |
| Poligínicos o promiscuos de bosque | Lophura (moderado); Polyplectron (variable); Chrysolophus, Rheinardia, Argusianus y Pavo (alto) | Entre moderado y alto |
Johnsgard señala que algunos tragopanes parecen monógamos y que Ridley los considera poligínicos; la agrupación de los pavos reales no es unánime en su texto. El detalle de los sistemas de apareamiento está en el capítulo de sistemas de apareamiento y señales sociales (Johnsgard, 1986).
Los extremos son llamativos. Los faisanes orejudos son los únicos de la subfamilia con ambos sexos de plumaje idéntico, según Delacour, que distingue al macho solo por los espolones y por una ligera diferencia en las barbillas de la cara (Delacour, 1977). Madge y McGowan subrayan que es algo inusual en aves que anidan en el suelo, porque el plumaje críptico de la hembra es importante para ocultarla, y que carecen además de iridiscencia y de diseños crípticos (Madge y McGowan, 2002). En el otro extremo, en los pavos reales, el gran argus y el faisán de Rheinard Johnsgard califica el dicromatismo de alto (Johnsgard, 1986).


Colores, madurez y muda
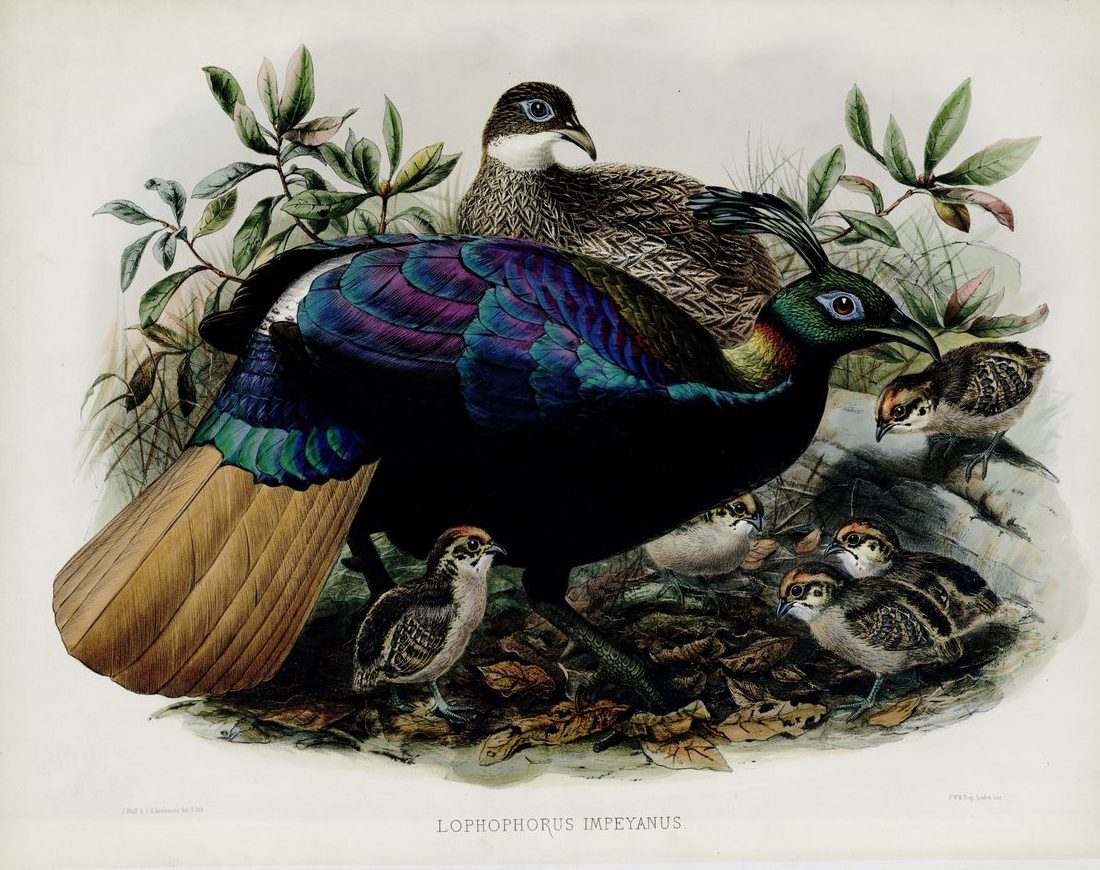
Johnsgard cita como rasgos frecuentes de los machos de faisán el plumaje muy iridiscente y los espolones agudos (Johnsgard, 1986). El brillo metálico de los monales es de los más admirados: Madge y McGowan lo describen como muy refulgente a plena luz (Madge y McGowan, 2002), y el Handbook menciona el del monal del Himalaya entre los más apreciados de todos los faisanes, con alas púrpura azuladas y una cola dorada anaranjada que el macho despliega en el cortejo (McGowan, en HBW 2, 1994). En muchas especies los jóvenes se parecen a la hembra adulta, y en la mayoría de los faisanes los machos adquieren el plumaje adulto en su primer año; pero en Tragopan y Lophura hacen falta dos años y en Pavo, Rheinardia y, probablemente, Argusianus, tres (Johnsgard, 1986; McGowan, en HBW 2, 1994). La diferencia entre el kalij y el plateado se apoya en parte en esto: los machos del kalij son adultos al año, y los del plateado, al segundo (Madge y McGowan, 2002; McGowan, en HBW 2, 1994). Madge y McGowan precisan además que el tren del pavo real azul alcanza su longitud completa hacia el quinto o sexto año (Madge y McGowan, 2002).
Colas
La cola es el rasgo más variable. Madge y McGowan describen la de cada género en los textos introductorios de sus fichas, y de ellos resulta la tabla siguiente, que permite ver cuánto varía el número de plumas y la forma (Madge y McGowan, 2002):
| Género | Plumas de la cola | Forma |
|---|---|---|
| Ithaginis | 14 | Moderadamente corta para un faisán y algo graduada |
| Tragopan | 18 | Más bien comprimida |
| Pucrasia | 16 | Larga y graduada, en gran parte oculta bajo cobertoras supracaudales muy largas |
| Lophophorus | 18 | De longitud moderada, plana y bastante ancha |
| Gallus | 14–16 | Comprimida lateralmente; las plumas centrales del gallo, alargadas y blandas, caen a ambos lados de las más cortas |
| Lophura | 16 | En los machos, larga y graduada, bastante arqueada y a veces muy alargada |
| Crossoptilon | 20–24 | Abovedada, de longitud media y graduada; los pares centrales, anchos y arqueados, forman un «polisón» |
| Syrmaticus | 16–20 | Muy larga y barrada |
| Rheinardia | 12 | Comprimida, con plumas largas y de base ancha; las centrales, hasta cinco veces más largas que las externas |
| Argusianus | 12 | El par central alcanza hasta cuatro veces la longitud de las plumas externas |
| Pavo | 20 en el macho y 18 en la hembra | Relativamente corta y plana; sostiene el «tren» de cobertoras supracaudales |
Madge y McGowan (2002) (Madge y McGowan, 2002). Los géneros no incluidos no tienen datos equivalentes en esa obra.
La forma de la cola condiciona el cortejo. Delacour distinguió dos tipos: las especies con cola plana, que pueden extender horizontalmente, añaden a la exhibición lateral (común a todos los faisanes) una exhibición frontal, de la que el abanico del pavo real es el ejemplo más famoso; las de cola en forma de tejado, no (Delacour, 1977). Madge y McGowan señalan que varios faisanes (el de Bulwer, los faisanes pavo, los argus, los pavos reales y los tragopanes) han desarrollado exhibiciones extraordinarias para lucir al máximo unas plumas en apariencia engorrosas (Madge y McGowan, 2002).
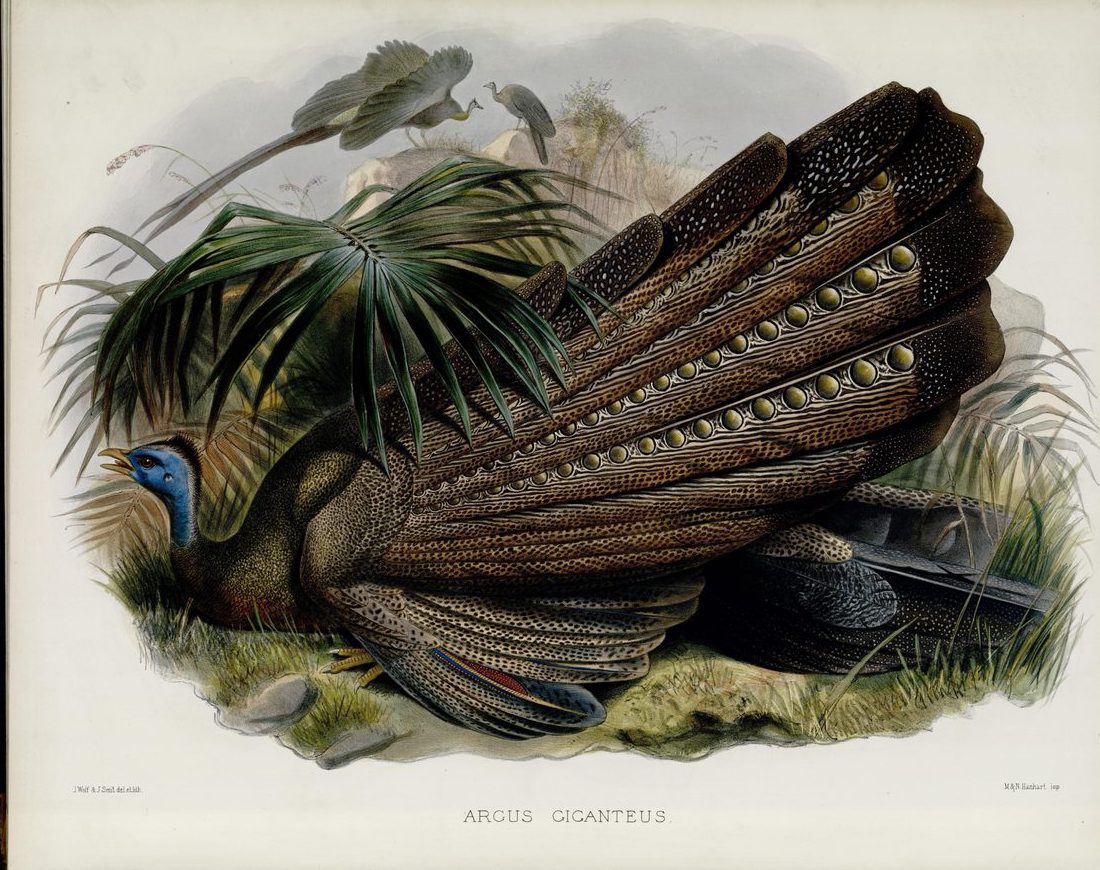
Los récords de longitud están entre las plumas de cola y las cobertoras. Las del faisán venerado pueden alcanzar 150 cm y se usan, o se usaban, para adornar los tocados de la ópera de Pekín (hoy se emplean imitaciones de plástico); las del faisán de Lady Amherst miden como mínimo 100 cm, a veces más del doble que la cabeza y el cuerpo juntos; las rectrices centrales del faisán de Rheinard pueden ser las más largas de cualquier ave y llegan a 130 mm de ancho, y las del gran argus alcanzan 1.430 mm (Madge y McGowan, 2002; McGowan, en HBW 2, 1994). En el gran argus, además, las secundarias son mucho más largas que las primarias y llevan hasta 20 grandes ocelos dorados cada una (McGowan, en HBW 2, 1994); en los pavos reales, el «tren» no es la cola, sino las cobertoras, y mide hasta 1.400–1.600 mm (Madge y McGowan, 2002).
Espolones
Los espolones son una de las señas más visibles de la familia. El Handbook explica que el espolón surge de un núcleo óseo en la base de la cresta hipotarsal del tarsometatarso; la mayoría de los machos tiene uno por pata, pero algunas especies tienen varios (en el faisán pavo malayo, normalmente dos, y se ha registrado un total de siete en un macho, tres en una pata y cuatro en la otra; el nombre Polyplectron significa «muchos espolones»); en el tragopán de Blyth se ha señalado que puede crecer un segundo espolón desde la base del primero. Sobre su función se sabe sorprendentemente poco: se supone que son armas para el combate entre machos, pero se ha propuesto, de forma controvertida, que las hembras eligen por su longitud (McGowan, en HBW 2, 1994). Los espolones faltan en los crácidos, los megápodos, los urogallos y las codornices americanas; en los fasiánidos, las pintadas y los pavos son frecuentes, al menos en los machos, y las hembras de los tres perdiceros asiáticos (Galloperdix) también los llevan (McGowan, en HBW 2, 1994).
| Género | Machos | Hembras |
|---|---|---|
| Ithaginis | Hasta tres espolones, de longitud variable | Protuberancias romas |
| Tragopan | Un espolón | Sin espolón |
| Pucrasia | Un espolón | Sin espolón |
| Lophophorus | Un espolón corto | Normalmente sin espolón |
| Gallus | Un espolón (25 mm, a veces hasta 50, en el gallo rojo) | Normalmente sin espolón (a veces uno pequeño en el gallo rojo) |
| Lophura | Un espolón blanco | Normalmente sin espolón |
| Syrmaticus | Espolones bastante cortos | — |
| Chrysolophus | Espolón poco desarrollado | — |
| Polyplectron | Dos o tres (a veces más), cortos y agudos | Sin espolones |
| Rheinardia | Sin espolones | Sin espolones |
| Argusianus | Sin espolones | Sin espolones |
| Pavo | Espolones bien desarrollados | — |
| Afropavo | Espolones | Espolones |
Madge y McGowan (2002) (Madge y McGowan, 2002). Delacour atribuye al macho del Crossoptilon espolones y los distingue así de la hembra (Delacour, 1977). Los guiones indican que la obra no precisa el dato para ese sexo.
Crestas, cuernos, golillas y piel desnuda
Los adornos de la cabeza son frecuentes en los machos y en los faisanes mucho más que en las perdices. Según el Handbook, hay adornos de piel (barbillas y lóbulos) y de plumas (crestas, «cuernos» y golillas). Las barbillas y los lóbulos aparecen en Tragopan y en Lophura y, cuando el macho no exhibe, no se ven o se reducen mucho; son más desarrollados en el faisán de Bulwer, cuyas barbillas azul cielo casi cubren cada lado de la cara y, hinchadas en la exhibición, se extienden como un arco de unos 18 cm de longitud. Los tragopanes tienen un lóbulo que cuelga sobre el pecho durante la exhibición frontal y deja ver piel desnuda de dibujo a menudo vistoso. Las crestas de plumas se dan en el kalij y en los pavos reales; los «cuernos» son plumas que nacen a cada lado de la cabeza y se encuentran en Pucrasia y Tragopan; las «orejas» de los Crossoptilon son plumas alargadas semejantes; y las golillas se dan sólo en Chrysolophus, cuyas dos especies se conocen por ello como faisanes de golilla: se despliegan en semicírculo alrededor y por debajo del ojo en la exhibición (McGowan, en HBW 2, 1994). Madge y McGowan añaden que el gallo salvaje tiene cresta carnosa, barbillas en la garganta, lóbulos en las orejas y mucha piel facial desnuda, y que los machos de los tragopanes tienen unos «cuernos» carnosos y eréctiles y piel facial y de la garganta que se hincha en el cortejo (Madge y McGowan, 2002).
Un cuerpo hecho para el suelo
Patas, pico, alas y digestión: cómo vive un faisán sin volar casi nunca.
Casi todo lo que define la anatomía de un faisán se explica por una vida pasada en el suelo del bosque, del matorral o de la pradera: andar, escarbar, comer semillas y brotes, esconderse y, solo en último término, levantar el vuelo.
Patas, pico y modo de andar
Johnsgard destaca que todos los faisanes tienen dedo trasero y uñas cortas y relativamente romas, aptas para rascar el suelo (Johnsgard, 1986). El Handbook añade que las patas son fuertes y a menudo bastante cortas, adaptadas a una vida que implica más andar y correr que volar; casi todas las especies, incluso las de terreno abierto, prefieren desplazarse a pie y huir corriendo, y sólo toman el vuelo como último recurso o para ir a dormir (McGowan, en HBW 2, 1994). Delacour observó que se mueven con soltura por el suelo y usan los pies y el pico para escarbar y cavar en busca de alimento; el andar, según los géneros, es delicado (tragopanes, faisanes de golilla y faisanes pavo), digno (el pavo real verde) o pesado y a sacudidas (los monales) (Delacour, 1977). En los géneros de pico fuerte y curvo, como los monales, que escarban a fondo en busca de tubérculos, esto se lleva más lejos; en los faisanes de bosque tropical, de pico menos robusto, la costumbre es revolver la hojarasca con él, en lugar de cavar (McGowan, en HBW 2, 1994). Delacour incluye en el grupo de los cavadores de pico fuerte a los monales, los orejudos y el Wallich (Delacour, 1977).
Buche, molleja y dieta
La dieta de los faisanes es sobre todo vegetal, y todas las especies tienen buche, con el que guardan el alimento temporalmente, y una molleja muscular, que lo tritura con ayuda de grava (Johnsgard, 1986). Delacour los describe como omnívoros, aunque con semillas y bayas como base en la mayoría (Delacour, 1977). En el monal del Himalaya, por ejemplo, los insectos son la mayor parte de la dieta de los pollos durante las primeras semanas (McGowan, en HBW 2, 1994).
Alas cortas, músculos potentes
Las alas de los faisanes son cortas y redondeadas, hechas para batir rápido y sacar al ave de un peligro a gran velocidad, pero no para un esfuerzo sostenido (Delacour, 1977). El Handbook precisa que casi todos los fasiánidos vuelan muy mal en distancias largas, aunque sus potentes músculos pectorales les permiten despegar de inmediato; el vuelo ininterrumpido más largo registrado en un faisán común fue de 6,5 km, para cruzar el agua, algo excepcional, ya que muchos ejemplares han caído agotados al agua en trayectos mucho más cortos (McGowan, en HBW 2, 1994). Hay grados: Delacour distinguía géneros más o menos dispuestos a escapar a pie o a volar, y recordaba que adornos como la cola enorme o las secundarias gigantes de los argus pueden ser un serio estorbo (Delacour, 1977). El koklas es, entre los faisanes, de alas notablemente largas, con las primarias sobresaliendo de las secundarias cuando el ala está plegada (Madge y McGowan, 2002). En terreno montañoso, según Green-Armytage, casi siempre vuelan cuesta abajo, aprovechando la gravedad para ganar velocidad (Green-Armytage, 2002).
Dormir en árbol, anidar en el suelo
La mayoría de los faisanes duerme en árboles (Delacour, 1977); Green-Armytage añade que suelen elegir ramas alejadas del tronco, para tener aviso si un mamífero se acerca (Green-Armytage, 2002). En cambio, el nido es casi siempre un simple hueco en el suelo, a veces entre hierba alta, arbustos o raíces; sólo algunas especies anidan en alto, en ocasiones aprovechando nidos abandonados de otras aves (Delacour, 1977), y entre ellas destacan los tragopanes, que lo hacen de forma sistemática en árboles, ya sea en huecos o en el nido viejo de otra ave grande (Madge y McGowan, 2002). Los pollos son nidífugos: pueden volar distancias cortas en la primera semana o poco más (Johnsgard, 1986); en el faisán común el primer vuelo llega hacia los 12 días, algo que probablemente es típico de muchas especies, mientras que en los tragopanes y el faisán de Rheinard los pollos adquieren cierta capacidad de vuelo con sólo unos días (Johnsgard, 1986).
Distribución, regiones y hábitats
Una subfamilia asiática con una sola especie africana.
Todos los faisanes viven de forma natural en Asia, del Cáucaso hasta Japón y desde Mongolia hasta Java, con una única excepción: el pavo del Congo, en el África ecuatorial. El resto del mundo conoce algunas especies, sobre todo el faisán común, sólo por las introducciones humanas.
Los límites del grupo
Johnsgard lo resume así: salvo el caso anómalo de Afropavo, todos los faisanes están limitados al sudeste de Asia en sentido amplio, aproximadamente entre las cercanías del mar Negro, al oeste, y Japón, al este, hacia el norte hasta Mongolia y hacia el sur hasta las islas menores de la Sonda (Johnsgard, 1986). Fuller y Garson precisan los extremos: de Flores (hacia 8° S, el gallo verde) a unos 50° N en el noreste de China (koklas, faisán común, faisán venerado y orejudo azul); el límite occidental, sin contar el pavo del Congo ni las introducciones, está en el Cáucaso, hacia 45° E (faisán común), y al este llegan a Taiwán, 121° E (mikado y Swinhoe), y a Japón, 145° E (cobrizo y faisán común) (Fuller y Garson, 2000). El Handbook da la misma amplitud, con Java a 8° S como extremo meridional (McGowan, en HBW 2, 1994).
Cada especie figura en la región principal que le asigna la taxonomía de la web; muchas ocupan más de una (por ejemplo, el kalij va del Pakistán a Tailandia según Fuller y Garson (Fuller y Garson, 2000), y el faisán común llega a Europa por introducción). El sudeste asiático reúne casi la mitad de las 53 especies.
Una subfamilia de Asia, y sólo allí
La separación con las perdices es geográfica además de morfológica. Johnsgard contó que el Himalaya (con Nepal como muestra) alberga 8 especies de faisanes y 14 de perdices; el Tíbet, 10 y 12; China, 26 faisanes y 22 perdices; y el sudeste de Asia (Birmania, Indochina y la península malaya), 13 géneros y 23 especies de faisanes frente a 8 géneros y 16 especies de perdices, en un área algo menor que la del subcontinente indio. Los faisanes dominan, por tanto, el sudeste asiático, y en África y el sudoeste de Asia las perdices superan con mucho a los faisanes: el África subsahariana tiene una sola especie de faisán y unas 40 de perdices (casi todas francolines), y la URSS, una sola de faisán y 11 de perdices en seis géneros (Johnsgard, 1986). En el subcontinente indio viven 45 de las unas 174 especies de Phasianinae del mundo (18 faisanes y 27 perdices), más de una cuarta parte (Johnsgard, 1986). Johnsgard interpreta que el Himalaya y sus desiertos asociados actuaron como barrera efectiva a la expansión de los faisanes hacia el norte (Johnsgard, 1986).
Dónde se concentran
Johnsgard y Delacour describen focos de diversidad; los recuentos difieren porque definen las regiones de forma distinta:
| Región | Según Johnsgard (1986) | Según Delacour (1977) |
|---|---|---|
| Himalaya | 8 especies, con todos los géneros más alpinos y parecidos a perdices (Ithaginis, Tragopan, Pucrasia) | 8 en el Himalaya oriental, desde las estribaciones hasta el límite de las nieves |
| Norte de Birmania y Yunnan (altos ríos Yangtsé, Mekong, Salween e Irrawaddy) | 6 especies, con géneros tropicales como Polyplectron y Pavo cerca de otros de montaña como Tragopan | 10 en la provincia de Yunnan |
| Annam (centro de Vietnam) | 8 especies, entre ellas dos de las más limitadas de los faisanes continentales, el imperial y el de Edwards | 7 entre el nivel del mar y 4.000 pies |
| Península malaya | 8 especies nativas: un endemismo (Polyplectron inopinatum) y una especie compartida sólo con Sumatra (P. malacense) | 8 (Malaya) |
| Sumatra | 7 especies, dos endémicas (P. chalcurum y Lophura inornata) | menos rica |
| Borneo | 5 especies, dos endémicas (el faisán de Bulwer y el faisán pavo de Borneo) | menos rica |
Johnsgard (Johnsgard, 1986); Delacour (Delacour, 1977), que da altitudes en pies y que cuenta las especies que pueden encontrarse juntas entre el nivel del mar y 4.000 pies en el centro de Annam y en Malaya. Las cifras no son comparables entre sí, porque cada autor delimita las áreas con criterios propios.
Johnsgard consideraba que la península malaya es el centro de diversidad evolutiva de los faisanes de tipo pavo (Pavo, Argusianus, Rheinardia y Polyplectron), y el Himalaya el hogar ancestral de los géneros más parecidos a perdices; y que la situación de archipiélago (Grandes y Pequeñas Sondas y Borneo) facilitó la especiación (Johnsgard, 1986). Delacour proponía que el centro de dispersión de los faisanes estaría probablemente en las montañas del Himalaya oriental y del oeste de China (Delacour, 1977), y Beebe imaginaba antepasados asiáticos cercanos al Himalaya (Beebe, 1918). Johnsgard añadía que durante las máximas glaciaciones, con el nivel del mar al menos 200 m más bajo que el actual, casi toda el área actual de los faisanes asiáticos formaba parte de la masa continental, e incluía Ceilán, Taiwán, las Grandes Sondas (salvo Célebes) y Palawan, y que la línea de Wallace separa con bastante eficacia la distribución de los faisanes de la de los megápodos (Johnsgard, 1986). Las zonas de mayor densidad de especies, además, son las que tienen al menos 60 pulgadas de lluvia anual y están en parte cubiertas por bosques templados de montaña o tropicales (Johnsgard, 1986).

El único faisán africano
El pavo del Congo fue descrito en 1936 por Chapin (Madge y McGowan, 2002); Delacour recordaba que hasta su hallazgo en los bosques profundos del Congo belga se había considerado que África era el hogar exclusivo de pintadas, francolines y codornices, y que el pavo africano está emparentado con los pavos reales (Delacour, 1977). El Handbook cuenta que su existencia sorprendió a los ornitólogos tanto por su tamaño como por sus posibles afinidades asiáticas, y que suele considerarse más cercano a los pavos reales, a los dos argus y a los faisanes pavo que a los demás faisanes (McGowan, en HBW 2, 1994). Madge y McGowan lo sitúan como endémico de la cuenca del río Congo, en el centro y este de la República Democrática del Congo (Madge y McGowan, 2002). Johnsgard, citando a Lowe (1939), explica la anomalía por el aislamiento, durante el Mioceno, de una forma ancestral en el suroeste de Europa, empujada hacia el África occidental por los periodos fríos (Johnsgard, 1986).
Hábitats: del bosque tropical a la pradera alpina
La mayoría de los faisanes depende de zonas muy arboladas, que van de la selva tropical de tierras bajas (faisán noble) y el bosque tropical de montaña (el faisán pavo de Rothschild) a los bosques templados de coníferas (tragopan occidental); algunas especies viven en terrenos más abiertos: matorral subalpino (faisán ensangrentado), praderas alpinas (monal chino) y pastizales (faisán Wallich) (Fuller y Garson, 2000). Delacour ordenó los géneros por altitud: siete géneros tropicales (Gallus, Lophura, Polyplectron, Rheinardia, Argusianus, Pavo y Afropavo) viven en tierras bajas o a altitud moderada; seis (Ithaginis, Tragopan, Pucrasia, Lophophorus, Crossoptilon y Catreus) sólo en montañas altas y mesetas; y Syrmaticus, Phasianus y Chrysolophus son aves de zonas templadas, que ocupan altitudes bajas y moderadas en el norte de su área y más altas en el sur (Delacour, 1977). Los faisanes y perdices más altos llegan a más de 4.000 m en verano en el Himalaya y el oeste de China, y el monal chino quizá no descienda mucho más en invierno (McGowan, en HBW 2, 1994). El faisán ensangrentado, según Madge y McGowan, se ha registrado entre 2.500 m (en invierno) y 4.500 m (en verano) (Madge y McGowan, 2002); los faisanes pavo, en cambio, viven algunos casi a nivel del mar (Howman, 1996).
Los estudios detallados en dos regiones muestran cuánto se reparten el espacio. En Himachal Pradesh (Himalaya occidental), siete especies de faisanes ocupan zonas escalonadas: el gallo rojo, sobre todo en la franja subtropical por debajo de 1.200 m; el pavo real azul, en tierras de cultivo y hábitats semejantes a los del gallo; el kalij entre unos 1.200 y 2.500 m, sobre todo en bosques de roble y de coníferas bajos y a menudo cerca de poblados; el faisán Wallich en laderas herbosas y empinadas con peñascos; el koklas en bosques con sotobosque desarrollado, en especial robledales; el tragopan occidental en relictos de bosque templado y subalpino, sobre todo de coníferas de altura; y el monal del Himalaya en robledales subalpinos y en praderas y matorral por encima de ellos (Johnsgard, 1986). En la península malaya, según Davison y Scriven, el faisán de fuego crestado (Lophura ignita en sentido amplio) aparece sólo junto a ríos grandes y medianos, sobre terrazas aluviales llanas, mientras que el faisán pavo malayo ocupa terreno llano o poco inclinado, talado o no; el gran argus está en casi todos los bosques de dipterocarpáceas de tierras bajas y colinas, pero falta en los muy alterados y fragmentados; el argus de Rheinard está restringido a la franja de transición entre el bosque de colina y el montano inferior; y el faisán pavo de Rothschild se ha visto sólo por encima de 900 m, en crestas con rocas, bambú y palmas trepadoras (Johnsgard, 1986).
Áreas pequeñas y especies introducidas
Un rasgo importante para la conservación es que muchos faisanes de selva tropical tienen áreas pequeñas: el Handbook recuerda que muchas especies de faisanes y perdices del bosque lluvioso del sudeste asiático ocupan menos de 100.000 km², mientras que casi todas las de pastizales, llanuras y zonas semiáridas del Paleártico y de África superan esa cifra, y muchas pasan de 500.000 km² (McGowan, en HBW 2, 1994). Fuera de Asia, el faisán común es la especie más ampliamente introducida; Fuller y Garson contaban 16 especies de faisanes introducidas en lugares ajenos a su área natural, con fines ornamentales, deportivos o de producción de huevos, carne o plumas (Fuller y Garson, 2000). Según el Handbook, se han establecido en Europa, Norteamérica y Australia el faisán común y el gallo rojo, y algunos faisanes de golilla en poblaciones locales (McGowan, en HBW 2, 1994). De la expansión del faisán en América del Norte, Robertson cuenta que comenzó en el valle de Willamette (Oregón) en la década de 1880 y que hoy ocupa más de 35 estados de Estados Unidos, nueve provincias de Canadá y una pequeña parte de México (Robertson, 1997).
Diversidad y rarezas
Lo extremo, lo único y lo mal conocido dentro de la subfamilia.
Con 16 géneros, seis de ellos de una sola especie, y entre 35 cm y más de dos metros de longitud, la subfamilia reúne un abanico de formas que ninguna descripción general agota. Estas son algunas de las rarezas que las fuentes destacan, ordenadas de lo más biológico a lo más histórico.
- 16géneros
- 53especies
- 127subespecies listadas
- 1especie africana
- Plumas más largas
- El faisán de Rheinard puede llevar, según Madge y McGowan, las plumas más largas de cualquier ave, y las del faisán venerado pueden alcanzar 150 cm (Madge y McGowan, 2002; McGowan, en HBW 2, 1994).
- Puestas de dos huevos
- Los faisanes pavo, el gran argus y el faisán de Rheinard ponen sólo dos huevos por nidada, algo que, según Delacour, comparten con las palomas, mientras que los demás faisanes ponen de cuatro a veinte, normalmente de seis a doce (Delacour, 1977). Madge y McGowan lo resaltan como un rasgo muy raro entre los fasiánidos (Madge y McGowan, 2002).
- Nido en árboles
- De forma inusual entre los faisanes, los tragopanes anidan en árboles, en huecos o en el nido viejo de otra ave grande (Madge y McGowan, 2002).
- Sexos casi iguales
- Los faisanes orejudos son los únicos con plumaje idéntico en ambos sexos (Delacour, 1977); Delacour los describe además como los más sociables del grupo, aunque aparentemente monógamos, y el Handbook recoge que en China se han visto en bandadas de hasta cien aves en invierno (Delacour, 1977; McGowan, en HBW 2, 1994).
- Muchos espolones
- El faisán pavo malayo tiene normalmente dos espolones por pata, y un macho llegó a tener siete en total; el nombre del género, Polyplectron, significa «muchos espolones» (McGowan, en HBW 2, 1994).
- La danza del argus
- El macho del gran argus despeja un círculo de hasta cinco metros de ancho y, en el cortejo, invierte y abre las alas para formar un enorme embudo en el que quedan expuestos los ocelos de las secundarias (McGowan, en HBW 2, 1994).
- Voces
- La llamada del macho del faisán de Rheinard en la época de cría puede oírse a varios kilómetros; el grito del gran argus es uno de los sonidos más característicos de las colinas selváticas de Malasia e Indonesia, y el graznido del koklas, del amanecer en los bosques de altitud media del Himalaya occidental (McGowan, en HBW 2, 1994).
- Hibridación
- Johnsgard calculó que de 1.166 cruces posibles entre las 49 especies, se habían registrado 93 (el 8 %), y que 36 de las 49 especies habían intervenido en alguno; 40 de esos 93 cruces (el 43 %) eran fértiles al menos de forma ocasional. Elliot, ya en 1872, advirtió de que muchos híbridos habían sido descritos como especies distintas y de que eso había sembrado confusión en la nomenclatura (Elliot, 1872; Johnsgard, 1986). El tema se desarrolla en el capítulo de hibridación y patrones zoogeográficos.
- Especies conocidas por una pluma
- El gran argus de doble banda (bipunctatus) fue descrito a partir de un fragmento de una pluma primaria encontrado entre un lote de plumas compradas en Londres; su origen se desconoce y Davison creyó que quizá procedía de la isla de Tioman, y que el ave, por la estructura de la pluma, probablemente no volaba y se extinguió antes de ser descubierta (Johnsgard, 1986; Madge y McGowan, 2002).
- Hallazgos del siglo XX
- Delacour contaba que durante el siglo XX se habían descubierto un género (Afropavo) y cuatro especies (el faisán pavo de Rothschild, el mikado, el imperial y el pavo del Congo), además de 58 subespecies válidas descritas en ese período (Delacour, 1977). En 1998, según Madge y McGowan, se encontró en el Himalaya de Arunachal Pradesh un monal sin describir, cuyo estatus taxonómico se estaba investigando (Madge y McGowan, 2002); la taxonomía de esta guía lista, por su parte, una subespecie del monal de Sclater, arunachalensis, descrita en 2004, con una nota que advierte de que falta la confirmación por ADN.
- Plumajes que cambian por la edad o por enfermedad
- Beebe, en 1918, citaba entre los misterios sin explicar los cambios de plumaje del faisán de Bulwer, la función del tren del pavo real y de las alas del argus, y que una hembra apagada se cubra del plumaje espectacular de su pareja por enfermedad o por edad (Beebe, 1918).
- Longevidad en cautividad
- Johnsgard citaba registros de Mitchell (1911) de hasta 179 meses para el faisán pavo gris, 163 para el gran argus y 161 para el kalij, y señalaba que las especies de vida cautiva larga (gran argus, faisanes pavo y tragopanes) son también las de menor potencial reproductor en libertad; Delacour tuvo un argus de Rheinard casi 20 años (Johnsgard, 1986).
- Mutaciones
- En el faisán dorado se conocen más de una docena de mutaciones de color, la más antigua la de garganta oscura, hacia 1860; los pavos reales blancos y los de hombros negros son mutaciones surgidas en la naturaleza, y mezclando blancos con azules se establecieron los pavos reales pintos (Green-Armytage, 2002). Beebe ya las consideraba casos indiscutibles de mutación (Beebe, 1918).
Los faisanes y el ser humano
Domesticación, caza, símbolos, aviarios y exploradores: más de tres milenios de relación.
Pocas familias de aves han tenido tanta influencia sobre los humanos como esta. Elliot, en 1872, ya la consideraba la más importante de todo el sistema ornitológico para la humanidad, por proporcionar alimento a miles de personas y ser el origen de las aves de corral (Elliot, 1872); Johnsgard resumía en 1986 que los faisanes son uno de los grupos de aves más importantes para el hombre, con la especie doméstica más abundante (la gallina), la especie de caza menor de tierras altas más extendida y abundante (el faisán común) y algunas de las aves más hermosas de todas (Johnsgard, 1986).
Del gallo rojo a la gallina doméstica
El gallo rojo es, según el Handbook, la especie de todas las aves, y quizá de todos los animales conocidos, que más ha influido en muchos aspectos de la vida humana (McGowan, en HBW 2, 1994). Hay pruebas sólidas de que es el antepasado de la gallina doméstica: el gallo verde de Java se consideró a veces su ancestro, pero la evidencia apunta al gallo rojo (Fuller y Garson, 2000; McGowan, en HBW 2, 1994). Cuándo se domesticó es menos claro, pero las obras consultadas coinciden en una antigüedad de unos cinco milenios: Madge y McGowan dicen que las civilizaciones del valle del Indo lo mantenían hace unos 5.000 años; el Handbook sitúa esa cría en el tercer milenio a. C. y considera la India, y no el sudeste asiático, el centro de domesticación más probable; y Fuller y Garson hablan de casi 5.000 años de domesticación, con la salvedad de «posiblemente» (Fuller y Garson, 2000; Madge y McGowan, 2002; McGowan, en HBW 2, 1994). Desde allí se extendió a Persia, Creta, Fenicia y, hacia 1500 a. C., al centro y noroeste de Europa; en Egipto y China estaba hacia 1500–1400 a. C. (McGowan, en HBW 2, 1994). Los navegantes del Pacífico lo llevaron consigo por las islas de Micronesia, Melanesia y Polinesia, y Colón lo llevó a las Antillas en su segundo viaje, en 1493 (McGowan, en HBW 2, 1994). Para el Handbook, la razón principal de la domesticación fue el alimento (la carne y los huevos); después vinieron las peleas de gallos y, más tarde, la cría de razas de exhibición (McGowan, en HBW 2, 1994).
Johnsgard escribía en 1986 que la gallina doméstica cuenta por varios miles de millones, una cifra incomparable con la de los faisanes cautivos (Johnsgard, 1986). El gallo ha dejado huella en el lenguaje y en la religión: es el único ave entre los doce animales del zodiaco chino (McGowan, en HBW 2, 1994).
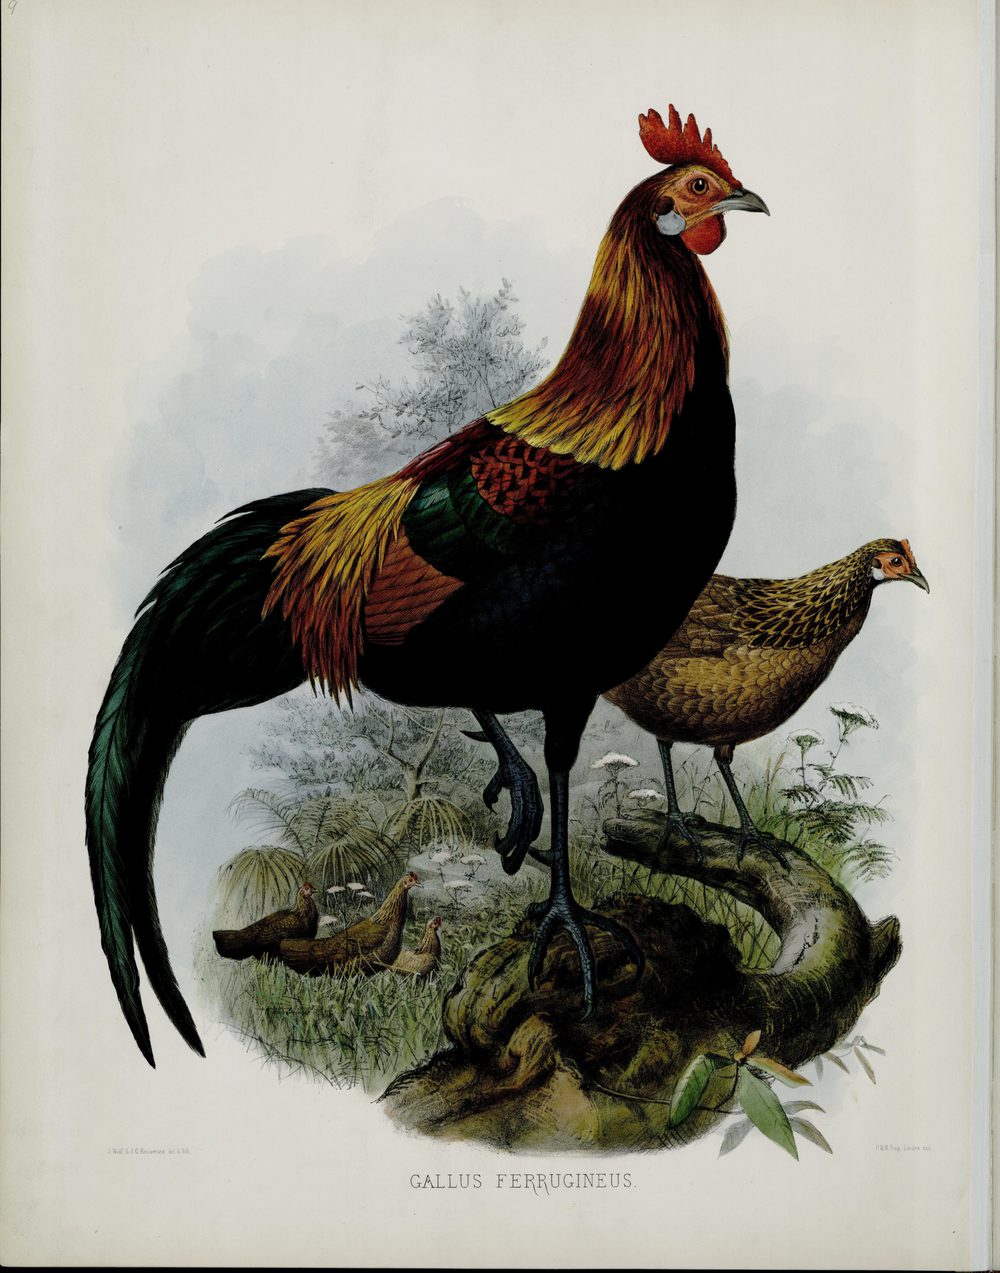
Faisanes de caza
El faisán común es el principal faisán de caza, y la historia de cómo llegó a Europa y a América está en buena parte envuelta en mitos. Según el Handbook y Robertson, la leyenda dice que Jasón lo trajo en la nave Argo; los romanos lo conocían y probablemente lo llevaron a Italia, Francia, Alemania y quizá Gran Bretaña, aunque en este último país su presencia en época romana es discutible; los normandos trajeron probablemente más aves tras la invasión de 1066, el manuscrito del Misal de Sherborne (hacia 1400) muestra ya un faisán y, a fines del siglo XV, ya se reproducía en libertad y sus nidos estaban protegidos por decreto real (McGowan, en HBW 2, 1994; Robertson, 1997). Fuller y Garson precisan que fue llevado a Europa hace más de mil años desde Asia Menor y más tarde desde China y Japón (Fuller y Garson, 2000). En Gran Bretaña pasó a ser, además, un símbolo de riqueza: Carlos II sólo permitía cazar al 5 % más rico de los terratenientes, y se ha sugerido que el interés por esta caza contribuyó a conservar bosques de tierras bajas del sur de Inglaterra (McGowan, en HBW 2, 1994).
| Fuente (fecha) | Ámbito | Cifra |
|---|---|---|
| Johnsgard (1986) | Capturas anuales en Norteamérica | Han llegado a rondar los 20 millones de aves en algunos momentos |
| Johnsgard (1986), citando a Savage (1981) | Reino Unido | Unos 7 millones de aves liberadas cada año |
| Robertson (1997) | Total mundial | Unos 50 millones de faisanes cazados al año: 10 millones en Norteamérica, entre 30 y 40 en Europa (gran parte soltados) y unos pocos más en otros lugares |
| Fuller y Garson (2000) | Europa y Norteamérica | Más de 22 millones al año en Europa y unos 9,5 millones en Norteamérica |
Johnsgard (Johnsgard, 1986); Robertson (Robertson, 1997); Fuller y Garson (Fuller y Garson, 2000). Son estimaciones de épocas y métodos distintos y no son comparables entre sí.
La caza tiene también un peso económico: el Handbook recuerda que a la caza deportiva del Reino Unido se dedicaron unos 400 millones de libras en 1981, de las cuales una parte muy grande iba a los faisanes, y que esa cifra equivalía a unas diez veces el presupuesto anual del organismo gubernamental de conservación (McGowan, en HBW 2, 1994). En sus áreas de origen, según Fuller y Garson, casi todas las especies se aprovechan en alguna medida, normalmente para obtener carne y huevos, y la mayor presión de caza en su área natural la sufre el faisán cobrizo de Japón, que se cría en cautividad para suministrar aves de caza (Fuller y Garson, 2000); en el pasado llegaron a abatirse en Japón casi un millón de aves al año, y la prohibición de cazar hembras en 1976 se debió a su declive (McGowan, en HBW 2, 1994). En China, todos los fasiánidos salvo el faisán común están protegidos por la ley, en categorías que requieren permisos (McGowan, en HBW 2, 1994).
Plumas, mitos y símbolos
Algunos faisanes eran conocidos hace más de tres mil años, cuando se representaron en bordados y pinturas de China y otras partes de Asia; los griegos conocían las aves de la Cólquida y el pavo real de la India aparece en escritos sánscritos y en la mitología griega (Delacour, 1977; McGowan, en HBW 2, 1994). En China, el faisán orejudo marrón es símbolo de valentía por los combates de los machos, y desde la época de los Reinos Combatientes (475–221 a. C.) hasta la dinastía Qing (1644–1911) los generales llevaban en el casco sus plumas de la cola (Fuller y Garson, 2000; Madge y McGowan, 2002; McGowan, en HBW 2, 1994); las plumas del faisán venerado se usaban en los tocados de la ópera de Pekín, y las del pavo real verde en danzas de Java (McGowan, en HBW 2, 1994). El pavo real azul es sagrado para los hindúes, vehículo del dios Kartikeya, y por eso es muy abundante en las tierras bajas del sur de Asia; es el ave nacional de la India (Fuller y Garson, 2000; Madge y McGowan, 2002; McGowan, en HBW 2, 1994). En la Grecia clásica el mito de Argos y Hera explicaba los «ojos» de su cola; Alejandro Magno lo llevó a Grecia en el siglo IV a. C. y, según Aristóteles, se difundió luego con rapidez; fuera de la India pasó a simbolizar riqueza y poder, en Roma y, en la Edad Media, en los banquetes de los barones ingleses (McGowan, en HBW 2, 1994). En Bután, la tradición budista ha protegido la fauna del suelo de los bosques (McGowan, en HBW 2, 1994).
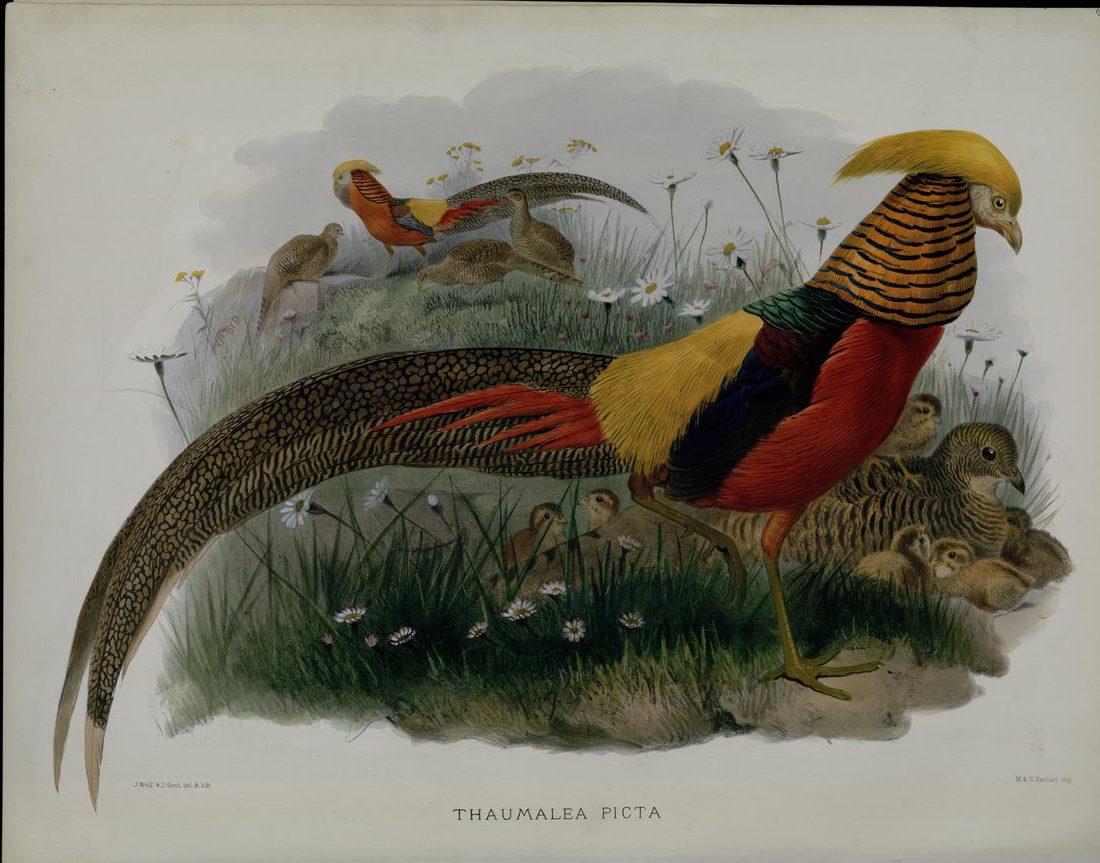
Faisanes en jaulas y parques
La afición a mantener faisanes ornamentales nació en Europa occidental. Aparte del gallo rojo, el faisán común y el pavo real azul, el primer faisán vivo registrado en Europa fue probablemente el faisán dorado, que ya tenía en 1740 la nobleza inglesa, según Albin; le siguió el faisán pavo gris, en una colección de Londres en 1745; el faisán venerado se mantuvo en Macao en 1808 y llegó a Europa en 1831, igual que el pavo real verde, y a partir de 1869 las importaciones de faisán de Lady Amherst lo convirtieron en favorito de los aviculturistas (McGowan, en HBW 2, 1994). Los años 1860 y 1870 fueron de gran afluencia de especies nuevas para la ciencia, que llegaron vivas a Europa (McGowan, en HBW 2, 1994). En Francia, entre 1860 y 1900, el número de aficionados y criadores fue considerable, en buena parte gracias a la Société d'Acclimatation, de París (Delacour, 1977).
- Un faisán dorado se tiene en colecciones de la nobleza inglesa (McGowan, en HBW 2, 1994).
- Elliot publica la primera monografía de los faisanes, con láminas de J. Wolf (Elliot, 1872; McGowan, en HBW 2, 1994).
- Beebe publica A Monograph of the Pheasants, en cuatro volúmenes, una de las últimas grandes monografías de aves de su época (Johnsgard, 1986).
- Delacour realiza siete expediciones a la Indochina francesa; en la primera descubre el faisán imperial, que cría en Clères (Delacour, 1977; Johnsgard, 1986).
- Se describe el pavo del Congo (Madge y McGowan, 2002); se funda la Ornamental Pheasant Society en Inglaterra (Delacour, 1977).
- Primera edición de The Pheasants of the World, de Delacour, que se reeditó con ligeras revisiones en 1977 (Johnsgard, 1986).
- Nace la World Pheasant Association, que desde entonces se ocupa de todos los aspectos de la conservación de los faisanes (Green-Armytage, 2002; Johnsgard, 1986).
- Johnsgard publica The Pheasants of the World, con 49 especies (Johnsgard, 1986).
- Taller de evaluación de la conservación de los fasiánidos en Amberes (1993) y publicación del volumen 2 del Handbook (1994) (McGowan, en HBW 2, 1994).
- Fuller y Garson publican el segundo plan de acción para los faisanes, con 51 especies (Fuller y Garson, 2000).
La cautividad no es un asunto menor. Johnsgard contaba que en 1979 se mantenían en cautividad 46 de las 49 especies, con más de 25.000 individuos en total, y que posiblemente nunca antes se habían alcanzado cifras tan altas; el censo de 1982 de la World Pheasant Association daba, por ejemplo, 5.584 faisanes dorados, 3.419 de Lady Amherst y 3.267 pavos reales azules, y 460 pavos reales verdes (Johnsgard, 1986). Howman señaló en 1979, y repitió en 1996, que la cría de faisanes es quizá la única rama de la avicultura en la que se puede comprar por poco dinero una pareja de una especie amenazada y criarla (Howman, 1996; Johnsgard, 1986). Para Johnsgard, la avicultura puede también devolver faisanes a zonas de las que han desaparecido: el faisán de Swinhoe, criado desde 1959 por el Pheasant Trust (más de 150 aves), se reintrodujo en Taiwán en 1967 con 15 parejas liberadas en un bosque protegido, y en 1971 se enviaron 12 parejas criadas en cautividad del faisán Wallich (cheer) a la India (Johnsgard, 1986). En Europa, el segundo volumen del libro del autor de esta web recoge los programas coordinados de cría en cautividad: con programa EEP, el pavo del Congo, el faisán de Edwards y el faisán pavo de Palawan; con libro de cría europeo (ESB), los tragopanes de Cabot y de Blyth, el faisán cola rosa, los faisanes pavo de Rothschild y malayo y el gran argus (Hernández García, 2014).
Panorama de conservación
Cuántos faisanes están amenazados, según qué obra y en qué fecha.
Los faisanes figuran entre los grupos de aves más amenazados del mundo. Cuántos, depende de la fecha, del sistema de categorías y de cuántas especies se cuenten; por eso este apartado muestra las cifras de cada obra con su año en vez de dar una sola.
| Fuente y fecha | Sistema | Resultado |
|---|---|---|
| Johnsgard (1986), a partir del Libro Rojo de King (1981) | Categorías del Libro Rojo del ICBP | 18 de las 49 especies, casi el 40 %, como raras, en peligro o vulnerables: 6 en peligro, 8 vulnerables y 4 raras (Johnsgard, 1986) |
| Handbook, vol. 2 (1994): taller de Amberes, 1993 | Categorías de Mace y Lande; 69 taxones de faisanes | 1 posiblemente extinto, 2 en peligro crítico, 18 en peligro y 24 vulnerables; 5 con información insuficiente y 20 (el 29 %) seguros (McGowan, en HBW 2, 1994) |
| Fuller y Garson (2000) | Categorías de la UICN (1994); 51 especies | Ninguna en peligro crítico, 3 en peligro, 21 vulnerables, 26 con riesgo menor (casi amenazadas o preocupación menor) y 1 con datos insuficientes (Fuller y Garson, 2000) |
| Madge y McGowan (2002) | BirdLife International (2000) | No menos de 23 especies de faisanes globalmente amenazadas; en la introducción, una valoración reciente de los faisanes consideraba en riesgo de extinción al menos el 50 % (Madge y McGowan, 2002) |
| Howman (1996); Green-Armytage (2002) | Obras divulgativas | Más de la mitad de las especies «en riesgo»; Green-Armytage añade que la mitad de ellas, en peligro crítico (Green-Armytage, 2002; Howman, 1996) |
| Esta guía (2026) | Lista Roja de la UICN, según cada ficha; 53 especies | 3 en peligro crítico, 5 en peligro, 13 vulnerables, 5 casi amenazadas, 26 de preocupación menor y 1 no evaluada (el faisán imperial, forma híbrida) |
Las cifras no son comparables entre sí: cambian las categorías (Fuller y Garson advierten de que sus clasificaciones no se pueden comparar con las de la primera edición, que usaba las de Mace y Lande), la taxonomía y los criterios de «amenazada». Las cifras del Handbook suman 70 para 69 taxones tal como se imprimen (Fuller y Garson, 2000; McGowan, en HBW 2, 1994).
La situación según la guía
Las 21 especies en peligro crítico, en peligro o vulnerables (3, 5 y 13) no se reparten de forma uniforme: se concentran sobre todo en los géneros de selva tropical del sudeste de Asia (en Lophura, 6 de sus 12 especies, y otras 3 casi amenazadas; en Polyplectron, 5 de 8) y en los tragopanes (3 de 5), y no hay ninguna en Phasianus, Chrysolophus, Crossoptilon ni Gallus.
| Categoría UICN (guía, 2026) | Especies |
|---|---|
| En peligro crítico (CR): 3 | faisán de Edwards, faisán cola rosa malayo, faisán argus de Rheinard |
| En peligro (EN): 5 | faisán cola rosa de Borneo, faisán pavo de Hainan, faisán pavo malayo, faisán pavo de Borneo, pavo real verde |
| Vulnerable (VU): 13 | tragopan occidental, tragopan de Blyth, tragopan de Cabot, monal chino, faisán noble, faisán vieillot, faisán de Bulwer, faisán Wallich, faisán de Hume, faisán venerado, faisán pavo de Germain, faisán pavo de Palawan, gran argus |
| Casi amenazada (NT): 5 | faisán de Swinhoe, faisán de Salvadori, faisán prelado, faisán pavo de Rothschild, pavo del Congo |
| No evaluada (NE): 1 | faisán imperial |
| Preocupación menor (LC): 26 | Las 26 restantes, entre ellas el gallo rojo, el faisán común, el faisán dorado y el pavo real azul |
Taxonomía de la guía (taxonomia.csv y apéndice, revisión del 21 de octubre de 2026). El estado de cada especie procede de su ficha.
Para leer estas categorías conviene recordar cómo las definían Fuller y Garson, que reproducen los criterios de la UICN de 1994: son especies amenazadas las clasificadas En Peligro Crítico, En Peligro o Vulnerable; las que no lo están pasan a Riesgo Menor, que se subdivide en Dependiente de Conservación, Casi Amenazada y Preocupación Menor, y las que carecen de información suficiente se clasifican como Datos Insuficientes. A modo de ejemplo, una especie con menos de 2.500 individuos maduros y un declive estimado de al menos un 20 % en cinco años se considera En Peligro, y una con menos de 250 individuos maduros y un 25 % en tres años, En Peligro Crítico (Fuller y Garson, 2000).
Qué amenaza a los faisanes
La causa principal es la pérdida y degradación del hábitat. Fuller y Garson sospechan que contribuye al declive de la mayoría de las especies amenazadas, ya sea por tala para madera o para otros usos agrícolas y urbanos, por pastoreo o por recogida de leña y forraje: procesos que fragmentan las áreas restantes y dejan poblaciones pequeñas y aisladas; en Sumatra y Kalimantan, por ejemplo, se deforestaron unos 1,3 millones de hectáreas entre 1985 y 1997 (el 26 % del total), sobre todo en las tierras llanas, y se preveía que todo ese bosque desapareciera hacia 2010 (Fuller y Garson, 2000). El Handbook coincide: la pérdida de hábitat es el principal problema de la familia, y los faisanes de selva tropical, con áreas muy pequeñas, son los más expuestos; la proporción de especies amenazadas por la actividad humana es de las más altas de cualquier familia de aves (McGowan, en HBW 2, 1994). Le sigue la caza, que es muy intensa en algunas especies: Fuller y Garson indican que las tres especies En Peligro de su plan de acción estaban muy amenazadas por los cazadores locales, que los cazadores con trampas fueron quienes redescubrieron al faisán de Edwards y que el pavo real verde ha desaparecido de gran parte de su área en Vietnam y Laos, sobre todo por caza (Fuller y Garson, 2000). El Handbook cuenta que, en torno al pavo del Congo, se había comprobado la desaparición en un radio de hasta 25 km alrededor de aldeas, pistas y carreteras en la selva ecuatorial (McGowan, en HBW 2, 1994). Hay además amenazas menos obvias: la recogida de hierbas medicinales y de setas en primavera perturba a los tragopanes occidentales y a los orejudos marrones, y la hibridación del gallo rojo con la gallina doméstica puede amenazar la pureza genética de las poblaciones silvestres (Fuller y Garson, 2000).
El riesgo es mayor para las aves grandes, de bosque y de áreas pequeñas. El Handbook recoge, para los fasiánidos, los numídidos y los megapódidos del taller de Amberes, que el 80 % de los taxones africanos se consideraba a salvo de la extinción, el 52 % en el subcontinente indio, el 48 % en China y el 40 % en el sudeste de Asia; y concluye que la amenaza es mayor en los bosques del sudeste de Asia, el Himalaya y China, con los faisanes de mayor tamaño en el mayor riesgo (McGowan, en HBW 2, 1994).
Qué se hace
Fuller y Garson ordenan la acción de conservación en una secuencia: aclarar las unidades taxonómicas, reunir información (censos, ecología), recomendar prioridades, proteger hábitat y regular la caza, y mantener poblaciones en cautividad (Fuller y Garson, 2000). Entre los instrumentos, citan un análisis de McGowan y colaboradores (1999), basado en más de 5.000 registros de más de 100 especies de galliformes del este de Asia, que identificó un mínimo de 82 áreas protegidas capaces de dar refugio a cada especie amenazada en al menos tres de ellas (Fuller y Garson, 2000). La World Pheasant Association, fundada en 1975 (Johnsgard, 1986), trabaja con los grupos de especialistas de la UICN y de BirdLife (Madge y McGowan, 2002); según los objetivos que reproduce Howman en 1979, se propuso promover la conservación de todos los galliformes, con énfasis inicial en los Phasianidae, fomentar una avicultura sólida, crear un banco de datos, apoyar la investigación y la educación y establecer colecciones de reserva de especies amenazadas, en colaboración con los gobiernos de los países de origen y con criadores autorizados (Howman, 1979). Las instituciones de cría en cautividad completan el cuadro (Hernández García, 2014). En 1986, Johnsgard ya subrayaba la importancia de mantener muchas colecciones dispersas de faisanes raros, para evitar que una enfermedad u otra calamidad local destruya todo el acervo genético de una población cautiva (Johnsgard, 1986). Esta guía se ocupa de ese vínculo entre aviculturistas y conservación en los capítulos de avicultura y conservación y aviarios.
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions. Introducción de la familia Phasianidae (Pheasants and Partridges), por P. J. K. McGowan.
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vol. I. Nueva York: edición del autor. Ilustraciones de J. Wolf, J. Smit y J. G. Keulemans.
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Robertson, P. (1997). Pheasants. Stillwater (Minnesota): Voyageur Press (1.ª ed. británica: Swan Hill Press, 1996).
Cómo citar este capítulo: Hernández García, I. (2026). Caracterización de los faisanes. La subfamilia Phasianinae. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/caracterizacion.php.