El día y la noche: ritmo de actividad y dormideros
Madrugar, comer, descansar a la sombra, volver a comer y subir a dormir: un horario que se repite en casi todos los faisanes, con variantes por géneros.
La mayoría de los faisanes siguen un día partido en dos jornadas de alimentación, una a primera hora de la mañana y otra al final de la tarde, separadas por unas horas centrales de reposo a cubierto, y duermen cada noche en un sitio que cambian poco si nadie los molesta (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002). Este apartado reúne lo que dicen los manuales y los estudios de campo sobre ese horario y sobre los dormideros, que varían bastante de un género a otro.
Conviene avisar de la calidad de los datos. De muchas especies solo se tienen las observaciones que hicieron Beebe y otros naturalistas a comienzos del siglo XX, las notas que recogió Johnsgard en 1986 y unos pocos estudios modernos de campo; de otras, sobre todo de los argus, los tragopanes y los monales, la observación directa es escasa y lo que se dice de una especie se extiende a veces por analogía a sus parientes (Beebe, 1918; Johnsgard, 1986; Madge y McGowan, 2002). Las fichas de esta web, de las que se toma buena parte de lo que sigue, citan sus fuentes una a una (Fichas de la web, 2026).
La jornada típica
El faisán común es el caso mejor descrito. Según la síntesis de Birds of the World y Johnsgard, el canto de los machos puede empezar antes del amanecer; las aves dejan entonces el dormidero y se alimentan durante dos o tres horas, van después al agua (sobre todo en regiones secas), pasan las horas más cálidas en zonas sombreadas donde se acicalan, toman baños de polvo y duermen, y vuelven a comer al atardecer, a menudo visitando fuentes de gravilla, hasta casi el anochecer (BOW, 2022 (faisán común); Johnsgard, 1986). En invierno, en Finlandia, solo estaban activos entre 25 y 90 minutos cada 24 horas, y con frío extremo podían permanecer inactivos durante días (BOW, 2022 (faisán común)).
El patrón se repite con pocas diferencias en otras especies de los géneros Gallus y Phasianus. El gallo rojo forrajea desde el amanecer hasta las nueve de la mañana y de nuevo desde las tres o cuatro de la tarde hasta el crepúsculo, y descansa en los árboles del dormidero o cerca de ellos durante las horas de más calor; en la estación seca visita cada día los puntos de agua, para beber a primera hora y de nuevo por la tarde (Johnsgard, 1986). El gallo de Lafayette empieza a cantar en la oscuridad previa al alba, hacia las 5:15 en la costa seca de Ceilán según Beebe, y alcanza el máximo del coro hacia las 5:30; sale pronto a los claros y se alimenta hasta que aprieta el calor, y entonces se retira a la sombra, donde toma baños de polvo, dormita o se limpia de garrapatas (Beebe, 1921; Johnsgard, 1986). El gallo de Sonnerat aparece al amanecer en caminos, bordes de campo y claros del bosque, vuelve a cubierto cuando sube el calor, descansa a mediodía en el suelo o en ramas bajas y reanuda la actividad por la tarde; en días nublados puede andar al descubierto todo el día (Beebe, 1921; Johnsgard, 1986). Johnsgard destaca además su puntualidad: forrajea día tras día en el mismo lugar y a la misma hora, y Beebe recogió el caso de un viejo macho que visitaba por la mañana un claro del bosque y por la tarde una plantación, a casi un cuarto de milla de distancia, sin invertir nunca el recorrido (Beebe, 1921; Johnsgard, 1986).
En los tragopanes el horario es parecido, pero con un componente de altitud. El tragopán satyr, según Beebe y Johnsgard, sube a las laderas altas durante unas dos horas por la mañana para comer, baja después a pasar el resto de la mañana en el valle y vuelve a salir por la tarde; en el este de Nepal las aves dormían en el fondo de los valles y comían bastante más arriba, de modo que hacían dos recorridos diarios, cuesta arriba y cuesta abajo (Beebe, 1918; Johnsgard, 1986). El koklas se alimenta sobre todo a primera hora de la mañana y a última de la tarde, sube comiendo despacio desde el agua del fondo del valle, casi siempre en pareja y con el macho delante, y baja a beber por la tarde; Johnsgard resume que se le encuentra mañana tras mañana y tarde tras tarde en los mismos claros (Beebe, 1922 (vol. III); Johnsgard, 1986; Madge y McGowan, 2002).
Las horas de calor y el agua
Las horas centrales son para descansar a la sombra, asearse y, donde hay polvo, bañarse en él. Beebe, en el Yangtsé, vio que la ocupación favorita del faisán común en las horas calurosas era el baño de polvo, el acicalado y el sueño a la sombra, y que en las rocas tomaba el sol en los días fríos de principios de primavera u otoño (Beebe, 1922 (vol. III)). El faisán verde, según Johnsgard a partir de Bohl (1964), pasa el mediodía en laderas, preferentemente arenosas, donde también se baña en el polvo (Johnsgard, 1986). Los pavos reales aparecen en el mismo cuadro: el pavo real azul bebe una hora después del amanecer, busca comida en claros y campos durante las primeras horas, pasa el calor a la sombra, a menudo cerca del agua, vuelve a alimentarse al final de la tarde y bebe otra vez al anochecer (Fichas de la web, 2026; Johnsgard, 1986). Beebe siguió en el río Pahang a un grupo de pavos reales verdes (un macho adulto, dos hembras y un joven) y anotó que bajaban en silencio a un banco de arena a beber y arreglarse el plumaje, comían varias horas en una zona de termiteros, dormitaban y se acicalaban al mediodía en otro banco de arena y volvían al agua hacia las cinco de la tarde (Beebe, 1922).
No todas las especies necesitan beber a diario. Beebe no vio que los cheer bajaran cada día a beber, como hacen los impeyanos y los koklas, y supuso que quizá su dieta de insectos les aporta la humedad suficiente; Delacour y Gerrits coinciden en que necesitan poca agua de bebida (Beebe, 1922 (vol. III); Delacour, 1977; Gerrits, 1974). En la costa de Java, los gallos verdes de Beebe bajaban al atardecer a beber y comer un poco, después de que algunos hubieran vuelto, cuando apretaba el sol, a las cuevas de las crestas (Beebe, 1921).
Los argus y el reclamo crepuscular
El gran argus invierte parte del horario. Con radiotelemetría, Davison comprobó en noviembre que dos machos dedicaban periodos cortos al forrajeo por la mañana y por la tarde y pasaban el resto del día perchados, entre el 81 y el 90 % de las horas de luz; en la pista de baile, el macho pasaba más del 80 % del tiempo inactivo, llamaba un 13 %, se acicalaba un 2 % y exhibía menos del 1 % (Johnsgard, 1986). Beebe, que lo oía cada noche desde su hamaca, lo calificó de crepuscular o nocturno en lo que se refiere al reclamo, que empieza casi siempre en la puesta del sol y gana fuerza al cerrarse la noche (Beebe, 1922).
Dónde duermen
Los dormideros se reparten entre el suelo, las ramas bajas y las copas, y no siguen la taxonomía de forma estricta: dentro de una misma especie varían con la presión de los depredadores y con el terreno. El faisán común es el ejemplo más claro. Johnsgard y Delacour señalan que el dormidero depende de las circunstancias y no de la edad o la estación: a veces es un árbol, pero mucho más a menudo un matorral denso, un carrizal u otra cobertura espesa (Delacour, 1977; Johnsgard, 1986). Beebe observó que en el Yangtsé las aves dormían en el suelo aunque hubiera árboles adecuados, y que solo donde abundan los depredadores terrestres usaban lo que encontraban, como la copa de robles bajos; Kozlowa, en el Amu Daria, vio que los adultos dormían siempre en el suelo en primavera, verano y otoño, mientras que los jóvenes medio crecidos dormían en las ramas (Beebe, 1922 (vol. III); Delacour, 1977). Dormido, adopta una postura inclinada hacia delante con la cola colgando, y con mal tiempo hasta 15 machos pueden acurrucarse en una rama (BOW, 2022 (faisán común)).
| Especie | Dónde duerme | Fuente |
|---|---|---|
| Faisán común | Mayoritariamente en matorral denso o carrizal y en el suelo; árboles donde abundan los depredadores terrestres | Johnsgard, 1986; Delacour; Beebe (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986) |
| Faisán verde | Suelo, matorral y a veces árboles; en invierno, «camas» de bandada en el suelo, con las aves mirando hacia fuera; tres machos en un bambú inclinado | Beebe; Johnsgard (Beebe, 1922 (vol. III); Johnsgard, 1986) |
| Gallo verde | Repisas de una cueva de caliza, ramas bajas de cactos, un bambú curvado y un islote de manglar | Beebe, 1921 (Beebe, 1921) |
| Gallo rojo | Parte alta de cañas de bambú arqueadas y árboles; grupos de unas cinco aves, con un caso de treinta en una caña | Beebe; Johnsgard (Beebe, 1921; Johnsgard, 1986) |
| Gallo de Lafayette | Dentro del follaje de árboles, a 2,5–3 m en acacias de la zona seca; solo, en pareja o en grupos de cuatro | Beebe, 1921 (Beebe, 1921) |
| Gallo de Sonnerat | Árboles: bambú inclinado o perennifolios densos; ¿solo o en grupo?, según la fuente | Beebe; Johnsgard; Madge y McGowan (Beebe, 1921; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán dorado | Ramas horizontales de pinos a menos de unos 3,5 m; en pajarera, árboles de hoja perenne | Beebe, 1922 (Beebe, 1922) |
| Faisán de Lady Amherst | Ramas a 1,8–3,5 m entre follaje denso; dormidero muy fijo en la cría | Yang et al., 1992 (Yang et al., 1992) |
| Gran argus | Árboles, junto a la pista de baile, a unos diez pies del suelo (higuera silvestre) | Beebe, 1922 (Beebe, 1922) |
| Pavo real azul | Árboles altos y abiertos; cinco higueras reunían a unas 100 aves | Beebe; Johnsgard (Beebe, 1922; Johnsgard, 1986) |
| Pavo real verde | Árboles altos y muertos, a los que sube saltando de rama en rama; cuatro o cinco, a veces siete, en el mismo árbol | Beebe, 1922 (Beebe, 1922) |
| Koklas | Siempre en árboles, en coníferas densas; pareja en primavera, el macho solo si la hembra incuba | Beebe (Beebe, 1922 (vol. III)) |
| Monal del Himalaya | Ramas de robles o castaños; en el límite del arbolado, nichos de acantilados orientados al sur | Beebe, 1918 (Beebe, 1918) |
| Faisán ensangrentado | En grupo: abetos, rododendros, matorral o suelo al abrigo de una peña | Beebe; Johnsgard (Beebe, 1918; Johnsgard, 1986) |
| Tragopanes | Árboles; el satyr, a unos 3,7 m en un magnolio; el occidental, en perennifolios bajos de ramaje denso | Beebe; Johnsgard (Beebe, 1918; Johnsgard, 1986) |
| Faisán Wallich | Fuentes enfrentadas: suelo bajo un césped o una roca (Beebe, Delacour, Gerrits) y árboles achaparrados o roquedos (Baker, Ali y Ripley) | Varias (Beebe, 1922 (vol. III); Delacour, 1977; Gerrits, 1974; Johnsgard, 1986) |
Resumen de los datos de las fichas de la web y de las obras citadas. La tabla recoge lo observado en cada caso, no una regla de cada especie.
Dormideros inesperados
Los casos más llamativos los recogió Beebe del gallo verde en Java. Localizó dormideros en ramas bajas de cactos y otras plantas espinosas, en un bambú curvado al pie de un acantilado y, sobre todo, en una caverna de caliza cerca de la cima de una cresta, con repisas angulosas aisladas del suelo; calculó que al menos una docena de gallos dormía allí cada noche (Beebe, 1921). Otro dormidero era un islote de manglar a unas 75 yardas de la costa: tres jóvenes del año salían al caer la tarde, picoteaban en la línea de marea alta y volaban en línea recta sobre las olas hasta los mangles, y repetían el trayecto a diario (Beebe, 1921). Beebe propuso que el hábito nació de un peligro en la marea baja, y relacionó estos refugios con el miedo a los carnívoros terrestres de su territorio (Beebe, 1921).
En el gallo rojo, el dormidero preferido es la parte alta de una caña de bambú arqueada, que oscila con el viento y de la que pocos depredadores pueden trepar por el tallo liso; los grupos de dormidero suelen ser de unas cinco aves, aunque Beebe cita un caso de treinta machos y hembras en una misma caña, en Tenasserim (Beebe, 1921; Johnsgard, 1986). El gallo de Lafayette, según Beebe, se posa dentro del follaje y no en una rama expuesta ni cerca del tronco, con lo que nota la vibración de la rama si se acerca un carnívoro arborícola (Beebe, 1921).
El monal del Himalaya y el faisán ensangrentado muestran el otro extremo, el de las grandes alturas. Beebe halló que, en el límite del arbolado, los monales machos elegían el lado protegido, al sur o sureste, de un acantilado y dormían en los nichos de la pared; al amanecer bajaban en picado a beber a un torrente alimentado por la nieve antes de que la luz plena los expusiera a una rapaz (Beebe, 1918). Los ensangrentados duermen juntos, en abetos en invierno, en rododendros bajos o matorral en primavera, o en el suelo, donde se agrupan al abrigo de una peña mirando hacia fuera; la idea antigua de que se entierran en la nieve, tomada de una frase de Hooker, la pusieron en duda Beebe, Grahame y Johnsgard (Beebe, 1918; Johnsgard, 1986).

Búsqueda de alimento: rascar, cavar, picotear y trepar
Qué hace un faisán para encontrar su comida y cómo cambia la técnica según el género y el terreno; la dieta en sí se trata en el capítulo de ecología.
Johnsgard afirmaba en 1986 que, aunque los faisanes varían individual, geográfica y taxonómicamente en sus alimentos y en sus adaptaciones para buscarlos, es difícil generalizar: todos son en gran parte vegetarianos y la mayoría están adaptados a comer semillas, pero algunos, como el koklas, consumen una proporción sorprendentemente alta de material verde, y otros, como los monales, cavan mucho en busca de materia vegetal subterránea (Johnsgard, 1986). Lo que sigue se centra en el comportamiento de forrajeo (cómo se busca) y deja la composición de la dieta para el capítulo de ecología.
Lo que dicen los manuales sobre las preferencias
Johnsgard repasa, a partir de estudios en gallina doméstica, que cada ave suele tener preferencias por ciertos alimentos basadas en la forma y el color, quizá con ayuda del tacto, mientras que las diferencias de sabor parecen poco importantes; los alimentos brillantes pueden preferirse a los poco llamativos, hay una preferencia innata por los granos alargados frente a los redondeados, se prefieren los granos enteros mayores a los fragmentos pequeños y las aves son capaces de elegir los alimentos que forman una dieta adecuada frente a los que son deficientes (Johnsgard, 1986). Son resultados de la gallina doméstica, que Johnsgard considera aplicables con cautela al resto del grupo.
En todas las Phasianidae, según el mismo autor, las crías consumen en las primeras semanas una alta proporción de alimento animal, sobre todo insectos, que baja deprisa durante el crecimiento; en los adultos, probablemente más del 90 % de la ingesta procede de plantas. De ahí su idea de que el forrajeo del polluelo se basa sobre todo en detectar y capturar presas vivas, mientras que el del adulto depende más del reconocimiento de alimentos inanimados (Johnsgard, 1986). El capítulo sobre crecimiento y desarrollo trata cómo se aprende esa transición.
Rascar con las patas
Los faisanes de los géneros Gallus, Phasianus y buena parte de los demás obtienen el alimento en el suelo rascando con las patas y picoteando. El faisán común toma el alimento sobre todo en el suelo, rascando o escarbando con el pico, y puede alcanzar raíces o semillas a 8 cm de profundidad; también busca frutos, hojas y brotes en arbustos y árboles, y recoge frutos colgantes saltando (BOW, 2022 (faisán común)). El forrajeo se concentra en dos periodos: de una a dos horas tras la salida del sol y desde unas tres horas antes de la puesta (BOW, 2022 (faisán común)).
El gallo rojo es el rascador por excelencia: obtiene el alimento rascando el suelo y picoteando, y en un estudio de Collias y Collias, citado por Johnsgard, los individuos rebuscaban solos entre la hojarasca y la jerarquía de picoteo del bando determinaba quién accedía a los mejores puntos (Fichas de la web, 2026; Johnsgard, 1986). Beebe dedujo, a partir de la costumbre de rascar de ambos sexos, que los insectos son parte importante de la dieta de los pollos, y señaló que el macho ayuda a encontrar la comida de los pollos cuando tienen una semana o más (Beebe, 1921). El gallo de Lafayette rasca como un gallo doméstico, primero con un pie y luego con el otro, y en el matorral seco el ruido de las hojas removidas se oye desde lejos y delata su presencia; Beebe vio a un macho abrir una termitera con fuertes golpes de las patas durante dos minutos largos antes de picotear a toda prisa (Beebe, 1921). Madge y McGowan señalan que el gallo de Sonnerat busca el alimento rascando con las patas y cavando con el pico, y que picotea a menudo el estiércol de grandes mamíferos; el gallo verde forrajea cerca de ungulados que pastan, ya sea capturando los insectos que levantan o picoteando su estiércol (Fichas de la web, 2026; Madge y McGowan, 2002).
Los gallos y otros faisanes tragan además piedrecitas. La molleja del gallo rojo suele contener guijarros brillantes que selecciona, y en una gallina se hallaron diecisiete zafiros; el gallo de Lafayette tenía seis piedrecitas rojizas en la molleja de una hembra examinada por Beebe; y el faisán común visita a menudo fuentes de gravilla durante su turno de la tarde (Beebe, 1921; BOW, 2022 (faisán común)).
Cavar con el pico
Otro grupo trabaja el suelo más con el pico que con las patas. Beebe señaló del monal del Himalaya que su pico grande y solapado es una adaptación para cavar: mientras la nieve no cubra el suelo o el mantillo no esté helado, pasa gran parte del día cavando entre el musgo y las hojas, y apenas rasca con los pies, algo casi universal en los galliformes (Beebe, 1918). Johnsgard lo describe como una pala que a veces llega a un pie de profundidad, y que cuando encuentra una mata de hierba o de bambú cava alrededor hasta dejarla sostenida solo por las raíces o derribarla; Birds of the World da hasta 25 cm de profundidad y menciona las zonas removidas características que deja en las laderas (Beebe, 1918; Fichas de la web, 2026; Johnsgard, 1986). Gerrits recuerda que el pico de los monales se utiliza casi constantemente para desenterrar larvas, raíces y bulbos (Gerrits, 1974). Los monales de Sclater y chino, por la forma del pico y los datos escasos, parecen trabajar igual (Fichas de la web, 2026; Gerrits, 1974; Johnsgard, 1986).
El faisán Wallich es el otro gran cavador. Beebe lo describe como un excavador del suelo como los impeyanos: macho y hembra suelen trabajar uno junto a otro, salvo cuando ella incuba, tienen lugares favoritos y, donde abundan las larvas o los tubérculos, cavan un pie o más de profundidad, con el cuerpo casi oculto y la larga cola desplegada contra la tierra, y cada pocos segundos asoman la cabeza para mirar; en terreno herboso y blando araban el césped a lo largo de varias yardas (Beebe, 1922 (vol. III)). Delacour y Gerrits relacionan el hábito con el pico potente y curvo de los monales y de los orejudos (Delacour, 1977; Gerrits, 1974). En el koklas, en cambio, Beebe vio en Garhwal a las parejas rascar entre las agujas del suelo del bosque en busca de larvas e insectos, y también salir a laderas rocosas abiertas y escarbar hoyos profundos en el césped, en terreno de monales (Beebe, 1922 (vol. III)).
Una diferencia de estilo la anota Beebe entre el tragopán satyr y el kalij: el tragopán concentra el esfuerzo en unos pocos puntos prometedores y deja agujeros aislados y bastante profundos, separados por una yarda o más, en lugar de rascar superficialmente una gran extensión (Beebe, 1918; Johnsgard, 1986). El faisán ensangrentado, por su parte, rasca con ganas, levantando enredaderas y musgo, pero, a diferencia de los monales, no tiene lugares fijos de rascado (Beebe, 1918; Johnsgard, 1986). En invierno, el tragopán de Temminck escarba en la nieve con el pico en busca de tallos de hierba y helechos (Fichas de la web, 2026; Madge y McGowan, 2002).

Picotear en el suelo y en la hojarasca
El gran argus busca de otro modo. Según las observaciones que resumen Birds of the World y Johnsgard, camina despacio y de manera sinuosa, picoteando la hojarasca o removiéndola para ver lo que hay debajo, a veces picotea las hojas de los arbustos, y tras cada picotazo levanta la cabeza para vigilar; Davison no observó que escarbara en busca de alimento enterrado (Fichas de la web, 2026; Johnsgard, 1986). El pavo del Congo obtiene presas y semillas picoteando en el suelo o rascando en la hojarasca; la presencia de larvas de termita en los contenidos intestinales sugiere que puede cavar en los termiteros, como otros faisanes tropicales (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002). El pavo real azul se alimenta siempre en el suelo, en grupos pequeños, rascando y ayudándose del pico para sacar larvas y desmenuzar termiteros (Beebe, 1922; Fichas de la web, 2026).

El faisán de Lady Amherst añade variantes: según Cheng (1963), citado por Johnsgard, escarba entre los guijarros y la grava al pie de los bambúes sombríos y puede vadear aguas poco profundas, dando la vuelta a los cantos para buscar invertebrados; Beebe vio a una pareja voltear piedras mayores que un huevo con vigorosos arañazos y buscar insectos entre la arena húmeda (Beebe, 1922; Johnsgard, 1986). Los autores de la ficha distinguen dos técnicas: picotear en el suelo los frutos caídos, los tallos, las hojas y los invertebrados, o volar a una rama y picotear los frutos y hojas de su extremo (Fichas de la web, 2026).
Comer en los árboles
Que los faisanes busquen alimento en ramas es menos conocido, pero está documentado. El faisán común puede coger frutos colgantes saltando y se encarama a árboles y arbustos para tomar brotes y frutos; en el Zaidam, vlangalii se alimenta en otoño e invierno de bayas que come posado en las ramas (Beebe, 1922 (vol. III); BOW, 2022 (faisán común)). El tragopán de Temminck recoge a comienzos del invierno los frutos de serbales y Viburnum entre las ramas, y Madge y McGowan suponen que el tragopán occidental se alimenta también en los árboles, sobre hojas de roble (Fichas de la web, 2026; Madge y McGowan, 2002). Beebe, con prismáticos potentes, vio a un macho de tragopán satyr trepar por las ramas desnudas de un magnolio y picotear aquí y allá el musgo largo (Beebe, 1918). El tragopán de Cabot comía, según los encuentros que recoge la ficha, tanto en el suelo como sobre el arbusto Daphniphyllum, que usa además como posadero nocturno (Fichas de la web, 2026).
Comer en grupo y vigilar mientras se come
La alimentación en grupo no implica relajación. Beebe describe el comportamiento de catorce machos adultos de monal del Himalaya que, en pleno periodo de nidificación y sin una sola hembra, llegaron uno a uno a un claro de Garhwal o Cachemira y escarbaron en comunidad durante más de media hora, concentrados en los bordes de la zona removida, sin pelear salvo algún forcejeo por un tubérculo; algunos cavaban hoyos de un pie y solo se veía su dorso brillante, y cada pocos segundos levantaban la cabeza para escrutar el cielo (Beebe, 1918; Johnsgard, 1986). El gallo rojo, según Collias y Collias, se jerarquiza incluso en el forrajeo (Johnsgard, 1986). El faisán común, por su parte, levanta la cabeza cada uno o dos segundos al comer, según Beebe, y el crujido de una ramita basta para poner en alerta a la bandada (Beebe, 1922 (vol. III)). Los cheer y los monales asoman la cabeza cada pocos segundos (Beebe, 1918; Beebe, 1922 (vol. III)).

Locomoción y vuelo: correr primero, volar después
Casi todos los faisanes confían más en las patas que en las alas, pero cuando vuelan lo hacen con una explosión que sorprende; hay planeadores, voladores pesados y aves que apenas se alejan del suelo.
Los faisanes son aves terrestres de patas fuertes y alas cortas y redondeadas. La respuesta habitual al peligro es esconderse o correr a cubierto; el vuelo se reserva para el último momento, para cruzar un obstáculo o para subir a dormir. Cuando se produce, es una salida casi vertical, ruidosa y muy rápida que se sigue de un planeo o de un vuelo corto y recto (Beebe, 1922; Beebe, 1922 (vol. III); BOW, 2022 (faisán común)).
Andar y correr
El faisán común camina con un andar pavoneante y digno, con paradas frecuentes para mirar y escuchar, pero puede correr lejos y deprisa; si se alarma, a menudo prefiere correr a cubierto antes que huir volando. La distancia entre huellas suele ser de 10–13 cm, y al correr ladea la cola unos 45° (BOW, 2022 (faisán común)). Beebe recogió dos casos que dan idea de su resistencia: una gallina herida que cruzó nadando un arroyo y un viejo macho que se escapó corriendo a cubierto a unos 700 yardas de distancia de un perro de muestra (Beebe, 1922 (vol. III)).
La confianza en las patas es todavía mayor en otras especies. El faisán dorado, según Beebe, es eminentemente terrestre y muy difícil de obligar a volar: prefiere escabullirse corriendo y, si lo sorprenden en campo abierto, a veces abre un poco las alas y se ayuda con una especie de semiplaneo; solo una vez vio a un macho saltar una peña de unos tres metros con aleteo rápido y planear después ladera abajo hasta posarse en el bambú (Beebe, 1922). El gallo verde confía en la velocidad de sus patas, y Beebe lo describe como un ave fuerte en el vuelo que, sin embargo, no usa las alas a menos que se vea forzado a ello (Beebe, 1921). El gallo de Lafayette escapa sobre todo a pie, con la cola baja salvo en el canto, el cortejo o el ataque (Beebe, 1921).
El gran argus camina con paso lento y corre a gran velocidad con sus patas robustas; Beebe compara su silueta, con las alas plegadas, con un velero amarrado a puerto sin velas, y solo en la exhibición, la carrera o el vuelo la encuentra bella. Beebe, Delacour y Gerrits coinciden en que el macho es un volador pesado y poco eficaz y la hembra vuela bien (Beebe, 1922; Delacour, 1977; Gerrits, 1974). El monal del Himalaya tiene, según Beebe, un paso bamboleante y esforzado en terreno llano, quizá por adaptación a trepar laderas de hierba áspera (Beebe, 1918); Delacour lo describe, igual que a los demás monales, andando a pasos bruscos y entrecortados (Delacour, 1977). El faisán ensangrentado camina con paso lento de gallina y la cola baja, como una perdiz, y rara vez vuela: si se le sorprende, la bandada se levanta en todas direcciones en un vuelo plano y breve y, al posarse, prefiere correr cuesta arriba hasta el abrigo del rododendro (Beebe, 1918; Johnsgard, 1986).
La explosión de vuelo
La forma de vuelo más extendida es el despegue casi vertical. Las alas cortas del faisán común, con un batido rápido y potente, permiten ese despegue casi vertical; puede alcanzar los 61 km/h y suele volar menos de 180 m en línea relativamente recta, y hay un registro excepcional de un faisán que cruzó 6,5 km de agua; sin viento, el vuelo sostenido se limita probablemente a menos de 1,6 km (BOW, 2022 (faisán común)). Beebe señala que el vuelo es más débil que el de otros faisanes y que un macho puede subir casi en vertical unos 30 pies y salir luego a gran velocidad (Beebe, 1922 (vol. III)). El criadero Chintaguay lo describe como un ascenso casi vertical de 8 a 10 m con aleteo intenso y ruidoso, seguido de un desplazamiento de unos centenares de metros alternando aleteo y planeo (del Campo, 2006). Para alcanzar las perchas más altas el faisán encadena series escalonadas de aleteos (BOW, 2022 (faisán común)).


La explosión de vuelo tiene también un reverso para el criador. Corder advierte de que los faisanes alarmados suben en vertical con una acción explosiva y que la velocidad del ascenso puede causar lesiones graves en la cabeza o la muerte, y Delacour recomendaba cortar las diez primarias de un ala en las aves proclives a lanzarse contra el techo (Corder, s. f.; Delacour, 1977). Es una de las razones por las que el diseño del techo y la mansedumbre de las aves son decisivos en un aviario; véase el capítulo de aviarios.
Planeo y vuelo en picado en las montañas
En las especies de ladera, el vuelo es sobre todo una caída controlada. El faisán Wallich da pocos aleteos rápidos y se lanza ladera abajo con las alas casi pegadas al cuerpo, para abrirlas de golpe en el último momento y virar con un barrido de la cola; Beebe lo considera probablemente el de vuelo más débil de la familia y a la vez quizá el más rápido, y explica que esa rapidez se debe a la gravedad, ya que en llano o cuesta arriba solo recorrería distancias cortas; tras el vuelo, vuelve a pie por un camino indirecto (Beebe, 1918; Beebe, 1922 (vol. III)). Madge y McGowan lo resumen como un ave que prefiere agazaparse o correr cuesta arriba, pero que puede lanzarse como un cohete ladera abajo (Madge y McGowan, 2002). El koklas, si debe volar, lo hace ladera abajo, esquivando los troncos, y en una cuesta larga y despejada cierra casi las alas y se deja caer como una piedra (Beebe, 1922 (vol. III)).
Los monales hacen un vuelo parecido. Ante un mamífero terrestre, el monal del Himalaya asciende de golpe a un árbol; ante una rapaz, estalla del suelo y se lanza a gran velocidad hacia el abrigo más cercano, y siempre que puede se deja caer ladera abajo con el mayor ángulo posible (Beebe, 1918). Beebe reproduce descripciones de un viejo macho que sale disparado horizontalmente de la ladera, centelleando al sol, y luego cae como una piedra con las alas cerradas (Beebe, 1918). El monal de Sclater sale del suelo, en palabras de Beebe, como bombas vivas a pocos pies del observador y desaparece al instante (Beebe, 1918; Delacour, 1977).
Volar por encima del agua y de los obstáculos
El faisán verde es quizá el que mejor ilustra la capacidad de vuelo sostenido. Vuela recto, con potentes batidos, y es probablemente capaz de mantener el vuelo algunos kilómetros; Birds of the World piensa también que sabe nadar cuando es necesario (BOW, 2022 (faisán verde)). Beebe cita a F. J. Norman, que abatió numerosos faisanes en una isla separada de la costa por milla y media de mar, y todos eran machos en bandadas de cinco o seis, lo que sugiere que habían cruzado volando; Green-Armytage coincide en que se sabe de aves que han cruzado esa distancia hasta una isla (Beebe, 1922 (vol. III); Green-Armytage, 2002). Beebe notó además que el faisán verde, aun donde hay árboles, suele posarse en el suelo, a diferencia del cobrizo, que más a menudo se encarama para otear (Beebe, 1922 (vol. III)). El aleteo del macho es tan habitual que, según Beebe, imitarlo con un par de alas de macho montadas en una caña era uno de los métodos más usados en Japón para atraerlo a tiro (Beebe, 1922 (vol. III)).

Los pavos reales y el tren
Los pavos reales corren más que vuelan, pero su despegue es potente. El pavo real azul prefiere correr a volar para evitar el peligro; el tren llevado horizontalmente a pocos centímetros del suelo no parece estorbarle, y vuela solo cuando se ve presionado, para cruzar un cauce o para subir a los árboles donde duerme (Beebe, 1922; Fichas de la web, 2026). Despega con un fuerte batir de alas y casi en vertical, incluso con el tren completo, y una vez en el aire vuela rápido y esquiva con habilidad los obstáculos del bosque; Beebe señalaba que las hembras pueden encadenar varios vuelos de varios cientos de yardas, y que los machos con tren completo son menos hábiles, hasta el punto de que a veces pueden ser atrapados a mano, mientras que Delacour insiste en que vuelan bien, incluso los machos viejos con tren (Beebe, 1922; Delacour, 1977; Fichas de la web, 2026). El pavo real verde alcanza sus dormideros saltando de árbol en árbol, y al amanecer desciende de golpe con un largo planeo (Beebe, 1922; Johnsgard, 1986). El pavo del Congo corre bajo la maleza y, si lo levantan perros, sube a los árboles con un batir pesado y ruidoso que permite seguirlo de oído (Delacour, 1977).
Comportamientos de confort: polvo, plumaje, sol y muda
Baños de polvo, estiramientos, acicalado, tomar el sol y cambiar el plumaje: lo poco que se ha descrito en libertad y lo que cuentan los criadores.
El automantenimiento es uno de los aspectos peor documentados de la conducta de los faisanes en libertad. Birds of the World admite que en el faisán común los comportamientos de mantenimiento no están bien descritos y sugiere tomar como modelo al gallo bankiva de Birmania, con sus movimientos de estiramiento y aleteo, el picoteo y peinado del plumaje, el frotamiento y rascado de la cabeza y la limpieza del pico (BOW, 2022 (faisán común)). Lo que sigue reúne observaciones sueltas de Beebe, de los estudios chinos que recoge la ficha del faisán de Lady Amherst y de los manuales de cría.
El baño de polvo
El baño de polvo es común y puede ser parte necesaria de la rutina diaria: elimina células epidérmicas muertas, grasa, suciedad, plumas viejas y vainas de plumas en desarrollo, y puede ayudar a controlar los ectoparásitos (BOW, 2022 (faisán común)). Corder lo explica desde la práctica: los faisanes no se lavan, mantienen el plumaje limpio con baños de polvo, y si no se les da una zona adecuada la crean ellos mismos, de modo que conviene ofrecer un área arenosa y polvorienta en un sitio soleado que drene bien tras la lluvia; si se pone a la sombra, las aves probablemente escarbarán una en un lugar soleado, y las galliformes más pequeñas han llegado a bañarse en el polvo en cuencos de pienso cuando no tenían otro sitio (Corder, s. f.).
Beebe describió en el faisán verde unos baños de polvo muy característicos: depresiones en forma de cuenco que usan muchas aves sucesivamente hasta que se hacen anchas y profundas y están llenas de un polvo tan fino que, cuando un ave se echa y lo lanza sobre su plumaje, sube en nubes; una vez creyó acercarse a una fuente termal con vapor y eran las aves que acababan de levantar polvo (Beebe, 1922 (vol. III)). En el territorio del faisán cobrizo, en cambio, esos baños no se veían (Beebe, 1922 (vol. III)). Del pavo real azul, Beebe vio a dos hembras bañarse en el polvo durante un cuarto de hora, abriendo cavidades y lanzándose polvo con sacudidas del ala (Beebe, 1922; Fichas de la web, 2026). En el faisán Wallich, vio a una hembra bañarse en un trozo de tierra removida, trabajando de lado y echándose el polvo con un ala, como una gallina de corral, aunque sin dejar de vigilar ni un momento (Beebe, 1922 (vol. III)). El faisán de Lady Amherst, según los observadores de Kunming, tras comer se arregla el plumaje y descansa en las ramas, o cava un hoyo en un lugar soleado, de suelo suelto y seco y bastante oculto, para darse un baño de tierra; hacia el mediodía disminuye la alimentación y aumentan el reposo y el baño de tierra (Yang et al., 1992). Los gallos verdes de Beebe, tumbados de lado levantando polvo con las alas, emitían una nota de contento (Beebe, 1921).
Los gallos de Lafayette, por su parte, se bañan en polvo, dormitan o se limpian de garrapatas a la sombra durante el calor del día (Beebe, 1921). Beebe cuenta de ellos un problema que ilustra la importancia del aseo: en las zonas áridas hallaba garrapatas pegadas a la cresta, en un macho contó 263 de todos los tamaños en un solo lado de la cresta, con la zona en carne viva y una infección bacteriana secundaria en un caso; las aves pasaban el mediodía limpiándose, pero no se limpiaban unas a otras (Beebe, 1921).
Estiramientos, aleteos y acicalado
Beebe describió con detalle una secuencia de comportamientos de confort en un macho de tragopán de Temminck que observó en Yunnan: posado en una rama, el ave se irguió, estiró con calma cada ala y cada pata empujando los dedos hacia fuera entre las primarias extendidas, como hacen las gallinas de corral, dio dos aleteos silenciosos y se sacudió hasta ahuecar y asentar el plumaje, para bajar después al suelo y picotear entre las hojas muertas (Beebe, 1918). Observó una secuencia parecida en el tragopán occidental: tras escrutar los alrededores, el macho arregló el plumaje, se sacudió, examinó las grietas de la corteza y los mechones de musgo y se posó a dormir en una rama más alta, medio oculto cerca del tronco (Beebe, 1918).
En los pavos reales verdes, Beebe anotó que los grupos de Pahang dedicaban una media hora al amanecer a beber y arreglarse el plumaje, volvían a dormitar y acicalarse hacia el mediodía, y que entraban a veces en los remansos con el tren levantado fuera del agua y llegaban a sumergir la cabeza (Beebe, 1922). Los pavos del Congo cautivos de Nueva York pasaban mucho tiempo acicalándose de un modo nervioso, como los pavos reales (Delacour, 1977).
Tomar el sol
El pavo real azul sube a montones de rocas o pajares a tomar el sol por la mañana, sobre todo si es fresca (Fichas de la web, 2026). Beebe vio que el faisán común toma el sol en las rocas en los días fríos de principios de primavera y otoño (Beebe, 1922 (vol. III)). Corder recomienda que el área de baño de polvo esté a pleno sol, y que los posaderos sean lo bastante gruesos para que las aves puedan cubrirse los dedos con las plumas del pecho: así les protegen de las heladas y de la congelación de los dedos, particularmente a las especies tropicales (Corder, s. f.).
La muda
La muda es un proceso periódico que condiciona la conducta. En el faisán común es completa y va de junio a octubre, y coincide con el fin de la agresividad de los machos, que a mediados de junio abandonan sus áreas (Fichas de la web, 2026). En el faisán de Lady Amherst, el estudio de Kunming sitúa la ocupación del territorio y el canto hasta mediados o finales de junio, cuando la hembra entra en la incubación y el macho en la muda (Yang et al., 1992). En el pavo real azul, el macho pierde el tren con la muda; la ficha lo ilustra con un macho cuya cola se está perdiendo (Fichas de la web, 2026). Johnsgard, a su vez, anota que en la gallina doméstica uno de los indicadores relacionados con la dominancia social es la ausencia de muda (Johnsgard, 1986); los plumajes de los machos y su cambio se tratan en el capítulo de desarrollo.
Territorio, jerarquía y peleas
Cómo se ordenan los machos entre sí: el orden de picoteo, la agresión ritualizada, las peleas con espolones y el territorio que se defiende, con ejemplos de campo y de cautividad.
La vida social de los faisanes se organiza en jerarquías de dominancia y, en muchas especies, en el reparto del espacio entre los machos durante la cría. Casi todo lo que se sabe del orden de picoteo procede de la gallina doméstica y del gallo rojo, y Johnsgard lo toma como modelo para el grupo, con reservas; el territorio y las peleas se conocen mejor por las observaciones de especies concretas (Johnsgard, 1986).
El orden de picoteo
Johnsgard señala que las jerarquías sociales de los faisanes, tradicionalmente llamadas órdenes de picoteo, están muy estudiadas y se descubrieron en la gallina doméstica; son, a su juicio, la base de la integración social y de las pautas de conducta de grupo. Tras los primeros encuentros se forman relaciones individualizadas de dominante y subordinado, que dan una jerarquía básicamente lineal; un lote de ambos sexos suele tener dos órdenes de picoteo, uno por sexo, porque los machos son más agresivos y las hembras suelen ser pasivas en la dominancia entre sexos. Mantener estos órdenes exige reconocer a cada compañero, y tras separaciones de dos semanas o más pueden alterarse por olvido; los indicios positivamente relacionados con el rango incluyen el tamaño de la cresta, la ausencia de muda, el tamaño corporal y la postura de amenaza (Johnsgard, 1986).
En el gallo rojo cautivo, Banks (1956) estudió 26 hembras en cuatro grupos y halló una jerarquía bien desarrollada y esencialmente lineal en cada lote, con un solo caso de inversión entre dos hembras tras traslados experimentales; los miembros más antiguos del recinto tenían un rango más alto tras reagrupar a las aves (Johnsgard, 1986). En el faisán común en libertad, Collias y Taber (1951) marcaron con colores 38 machos y 170 hembras: entre grupos de tres, nueve y ocho machos asociados a áreas de alimentación hallaron solo dos desviaciones de una jerarquía lineal, ambas por un macho que se hizo territorial y ganó una ventaja temporal; entre 14 hembras en un comedero hubo pocas desviaciones; en 85 encuentros repetidos entre las mismas dos hembras no hubo inversiones; y todos los machos dominaban a todas las hembras, aunque dejaban de picarlas poco después de empezar la cría. No lograron correlacionar el peso con la dominancia, aunque la tendencia era positiva; entre las hembras, la edad parece influir (Johnsgard, 1986).
La dominancia tiene consecuencias reproductivas. Johnsgard cita que la posición del macho en el orden de picoteo guarda relación positiva con su éxito de apareamiento, aunque el macho más dominante no siempre es el que más se exhibe ni el que más intenta montar, sino el que consigue más cópulas completas; y que las hembras más dominantes tienden a ser menos receptivas que las sumisas, pues la postura sumisa de agachamiento facilita la cópula. Añade que es posible que el macho más dominante inhiba la fertilidad del grupo al impedir que otros se apareen (Johnsgard, 1986).
En el campo se ve la jerarquía en el comedero. En el gallo rojo, según Johnsgard, dentro del bando hay una jerarquía de picoteo que regula el acceso a los mejores puntos de forrajeo, y los machos subordinados cantan mucho menos que los dominantes (Johnsgard, 1986). El faisán común muestra algo parecido, con machos que empiezan a cantar y a exhibirse antes que otros y los dominan, y con jerarquías relacionadas con la edad y quizá con el peso en ambos sexos (Johnsgard, 1986). En el monal del Himalaya, la dominancia entre machos se establece en las primeras fases de la exhibición, según Johnsgard (Johnsgard, 1986). En el faisán de Lady Amherst, los autores del estudio de Kunming interpretan que solo el macho dominante del grupo ocupa territorio, canta y tiene opción de aparearse (Yang et al., 1992).
El territorio
Los machos de muchas especies defienden en primavera un territorio o unas «rutas de crucero», pero lo documentado en libertad es modesto. En el faisán común, Johnsgard encuentra pocas pruebas de territorios bien definidos, lo que explica los tamaños tan distintos citados para las áreas de canto; Birds of the World sintetiza que los límites son plásticos, se solapan y varían con la densidad de machos, la estructura del hábitat y la comida, que los territorios medidos van de 3 a 32 ha, y que el éxito de apareamiento depende probablemente más de la calidad del macho que de la del territorio; las hembras no son territoriales, pero tienen su propia jerarquía (BOW, 2022 (faisán común); Johnsgard, 1986). Los machos establecen sus áreas a principios de primavera y los adultos suelen volver a ocupar las del año anterior; la agresión decae a mediados de junio (BOW, 2022 (faisán común)).
El estudio de Gulu (Yunnan) sobre el faisán de Lady Amherst aporta las cifras más precisas: con 14 observaciones de día completo de 9 machos, el territorio medio fue de 7,6 ha (máximo 14,5 ha, mínimo 4,1 ha); el macho no deja entrar a otro, persigue al intruso hasta matarlo y su dormidero está dentro del territorio; abatido el macho territorial, a los 3–6 días aparecía otro cantando en el mismo territorio, lo que interpretan como un relevo por machos flotantes; la fórmula local es «una cumbre, un faisán de quebrada» (Yang et al., 1992). En el gran argus, la separación entre pistas de exhibición es de unos 400 m; Davison observó que las pistas de machos muertos las ocupaban otros al año siguiente, y Beebe oyó hasta seis machos adultos llamando a la vez, de lo que dedujo una fuerte competencia por las pistas pese al carácter solitario de la especie (Beebe, 1922; Johnsgard, 1986). Para el tragopán satyr y el tragopán occidental, Johnsgard y Beebe describen machos que cantan día tras día desde una percha favorita, pero sin estimas del tamaño del territorio (Beebe, 1918; Johnsgard, 1986).
En el faisán de Reeves, Knoder (1955) observó en un gran recinto con 20 machos que, al reducirlos a ocho, el recinto se dividió aproximadamente en dos mitades, con tres machos defendiendo cada una como grupos y dos machos subordinados sumisos ante todos; hubo peleas a lo largo del límite entre los dos grupos, pero no dentro de ellos (Johnsgard, 1986).
Peleas y exhibiciones agresivas
La mayoría de los encuentros agresivos entre machos del faisán común ocurre en la temporada de cría y sigue una escalera de amenazas que puede acabar en lucha física si un ave no huye. Johnsgard describe la secuencia: dos machos que se encuentran pueden colocarse frente a frente o andar en paralelo con la cabeza alta, las barbillas hinchadas y el plumaje de la nuca erizado, emitiendo una nota ronca; pueden hacer una exhibición lateral con el ala cercana bajada y la cola inclinada, o enfrentarse con la cabeza baja y la rabadilla elevada, picoteando a veces la hierba; el combate incluye picotazos y patadas, y el perdedor se retira con las plumas pegadas al cuerpo (Johnsgard, 1986). En las peleas físicas, los machos se enfrentan pecho contra pecho, se muerden las barbillas o se lanzan saltos altos usando pico, garras y espolones; las muertes son raras, y el vencedor persigue al perdedor corriendo con la cabeza baja (BOW, 2022 (faisán común)). Beebe cuenta que, donde abundan, las peleas empiezan a finales de diciembre en años de clima abierto y duran hasta junio, y que en un caso dos machos pelearon tanto que expulsaron a la hembra del nido y destrozaron los huevos (Beebe, 1922 (vol. III)). Las hembras se intimidan sobre todo en la formación de los harenes: abren la cola, bajan las alas y se abalanzan, y el contacto físico es raro (BOW, 2022 (faisán común)).

En el faisán dorado, el enfrentamiento comienza como la exhibición lateral y termina con picotazos y patadas con el espolón, aunque estos están tan poco desarrollados que a menudo solo se usa el pico; Beebe sospechó que en libertad eran tan pendencieros como en cautividad, porque halló un lugar con numerosas plumas de macho, unas ajadas y otras casi frescas (Beebe, 1922; Johnsgard, 1986). En el gallo rojo, la longitud de los espolones y la esclavina son indicio de combates, y Beebe cree que la esclavina funciona como escudo, ya que en la lucha cara a cara las plumas del cuello se erizan como un halo y esconden las zonas vulnerables; Hume describió una pequeña loma herbosa llena de plumas donde los machos se reunían al amanecer para pelear, y Beebe halló tres lugares que le parecieron zonas de combate, siempre en claros de bambusales (Beebe, 1921). En libertad parece haber relativamente pocos combates reales entre machos de gallo rojo, aunque un subordinado puede seguir con persistencia a otro y a su harén (Johnsgard, 1986).
El monal de Sclater ofrece la cuantificación más reciente. Durante dos años de campo en Gaoligong los autores contaron una sola interacción intensa entre machos en 2015 y 45 en 2016, de las que 36 fueron persecuciones, algunas de hasta 3 km, y 9 peleas intensas; las peleas duraron de media 57 minutos, con un mínimo de 5 y un máximo de 137, y una de ellas sumó 52 ataques en 283 minutos; los autores lo interpretan como indicio de una fuerte competencia por las hembras y quizá por los escasos lugares de nidificación (Fichas de la web, 2026). El gran argus es un luchador a pesar de la ausencia de espolones: Beebe presenció a través de un escondite el combate entre un macho adulto y otro joven en una pista, con saltos al aire, golpes con patas y uñas y picotazos a la piel desnuda de la cabeza y el cuello, durante tres minutos, hasta que el joven huyó perseguido por el viejo (Beebe, 1922). En el pavo real azul, los combates de cautividad empiezan con una exhibición de ambos machos: saltan a ocho o diez pies de altura, golpeando con uno o los dos espolones y picoteando, y Beebe vio plumas volar por docenas y un ave con el pecho abierto, pero nunca una muerte (Beebe, 1922). Los pavos verdes, según Delacour, son más fieros y fuertes que los azules, y en cautividad los machos se pelean con saña (Delacour, 1977; Gerrits, 1974).
Voces generales: contacto, alarma, reunión y salida del dormidero
Qué dicen los faisanes cuando no están cortejando: llamadas de contacto, de alarma, de vuelo, de reunión de la bandada y de reunión de los pollos; los cantos de cortejo se tratan en otro capítulo.
Los faisanes no son aves cantoras y tienen una siringe poco desarrollada, pero su repertorio es rico en significados. Los observadores de Kunming, que grabaron y analizaron con espectrógrafo la voz del faisán de Lady Amherst, la clasificaron en ocho categorías según su relación con la conducta: canto del macho, contacto o reunión, alarma, amenaza, miedo, llamada de la madre a los pollos, ataque y alerta (Yang et al., 1992). Este apartado trata las llamadas de uso general; las de cortejo y los cantos de reclamo del macho se verán en el capítulo de sistemas de apareamiento y señales sociales.
Cuántas llamadas hay y cómo se codifican
Heinz y Gysel (1970), citados por Johnsgard, describieron unas 15 llamadas distintas en el faisán común: tres propias de los polluelos, seis limitadas a las hembras, tres a los machos adultos y dos (el siseo y la llamada de «picado») comunes a ambos sexos adultos; Birds of the World da entre 16 y 24 tipos para la especie (BOW, 2022 (faisán común); Johnsgard, 1986). En la gallina doméstica se han descrito 19 tipos de llamada adulta (Johnsgard, 1986). Johnsgard advierte de que clasificar y numerar las llamadas es difícil por la variación de intensidad y por las dificultades del análisis acústico, pero sí encuentra reglas generales: los sonidos que atraen a los polluelos suelen ser breves, repetitivos y ricos en notas de baja frecuencia, mientras que los que advierten de peligro son más largos, con poca repetición o segmentación y con pocas frecuencias graves; en las llamadas de los adultos, los efectos de atracción y de alerta pueden graduarse variando la duración, la tasa de pulsos, el volumen y los intervalos (Johnsgard, 1986).
Llamadas de contacto, de reunión y de salida del dormidero
Entre aves que viven en bandada, las llamadas de contacto mantienen unido al grupo. En el faisán de Lady Amherst existe una llamada de contacto o reunión, suave y fina, de dos a cinco notas (casi siempre tres), que emiten los individuos del grupo en otoño, invierno y principios de primavera; se oye sobre todo fuera de la cría, cuando el grupo se alimenta o se reúne tras un susto, y los cazadores locales la imitan con un silbato para atraerlos (Yang et al., 1992). En el faisán ensangrentado, Lelliott distinguió un trino agudo de casi un segundo, emitido por los dos sexos, y un chillido penetrante de reunión, con dos a seis notas, que reúne a los dispersos tras una separación; las aves parecen reconocer las llamadas de su propia bandada y rechazan las de otra (Johnsgard, 1986). Beebe observó que, para ser aves tan gregarias, son notablemente silenciosas, y que cuando se reagrupan emiten una nota alargada y cortada al final (Beebe, 1918; Johnsgard, 1986).
Los monales emiten llamadas de dormidero. Los machos de monal del Himalaya llaman repetidamente al amanecer desde el dormidero, menos si amanece nublado, y las llamadas cesan en cuanto empiezan a comer; Madge y McGowan describen también el canto de los machos desde la percha al anochecer (Beebe, 1918; Madge y McGowan, 2002). Lelliott distinguió tres tipos de llamada en aves silvestres: una sucesión de notas de flauta de hasta diez segundos, que emiten sobre todo las hembras al ser levantadas; la llamada de amanecer, un silbido de dos a cinco notas emitido por ambos sexos; y el silbido agudo parecido al del zarapito, solo de hembras o inmaduros, quizá como señal de ansiedad (Johnsgard, 1986). En el faisán Wallich, ambos sexos cantan al amanecer y al anochecer, y en primavera, cuando hay muchas aves, el canto anuncia siempre el nuevo día, como el gallo doméstico; los cheer cantan a veces a coro (Beebe, 1922 (vol. III)). En el koklas, varios machos vecinos se responden formando un coro, y Beebe comprobó que de cinco machos que cantaban cerca de su campamento al menos cuatro lo hacían desde su dormidero (Beebe, 1922 (vol. III); Fichas de la web, 2026). En el gran argus, los machos llaman desde el dormidero también de noche (Johnsgard, 1986). La conducta de estos cantos como reclamo territorial se estudia en el capítulo de apareamiento.
Los gallos tienen, además, llamadas de contacto cuando comen. El gallo de Lafayette emite un «chack, chack» bajo para llamar a la hembra, a veces seguido de un tremolo sofocado de contento (Beebe, 1921). En el gallo verde, Beebe anotó una nota de contento lenta y prolongada, emitida cuando se alimentan sin prisa o descansan tumbados de lado levantando polvo con las alas, y una llamada de la hembra, repetida despacio de seis a diez veces, que otras aves suelen contestar (Beebe, 1921). El faisán de Lady Amherst, por su parte, emite una llamada de alimentación de tres a cuatro notas por segundo, muy breves, parecida a la del faisán común, y Beebe notó que la hembra llama a su compañero con un cacareo bajo y suave cuando ha descubierto un lugar con mucha comida (Beebe, 1922; Johnsgard, 1986).
Alarma y vuelo
La alarma es la llamada más fácil de reconocer. En el faisán común, el macho emite una alarma grave y atragantada («gogok gogok…») cuando se inquieta o oye un ruido súbito, a veces en coro al amanecer y al atardecer; al despegar emite una serie similar espaciada cada 0,1–0,2 s, y al despegar ambos sexos producen además un sonido de alas (BOW, 2022 (faisán común)). La hembra con pollos emite un sonido abrupto y grave que hace que los pollos se desvanezcan, y un grito agudo de socorro (BOW, 2022 (faisán común)). En el faisán verde, la alarma es muy parecida a la llamada territorial, pero se oye casi siempre con el batir de alas, cuando el ave sale de una cobertura cercana y vuela a un lugar seguro (Beebe, 1922 (vol. III); BOW, 2022 (faisán verde)). El gallo de Sonnerat emite tres notas cortas y agudas, con la central acentuada, y un asustado «kakakakak» cuando huye (Beebe, 1921). En el tragopán satyr, solo cuando se asustan de verdad, como ante un perro, los dos sexos emiten una serie de notas roncas, «guak, guak», que entienden las demás aves del entorno y que a menudo recogen los cuervos; Lelliott, citado por Johnsgard, halló que más de la mitad de las aves que levantó la emitieron (Beebe, 1918; Johnsgard, 1986). En el tragopán occidental, la alarma es una serie de gemidos como los de un cordero, lentos al principio y cada vez más rápidos si el ave es acosada o va a volar (Beebe, 1918). En el gran argus, la hembra con pollos emite una nota única, aguda e indescriptible, y los machos un grito parecido a un ladrido, audible a varios centenares de metros (Beebe, 1922; Johnsgard, 1986).
| Especie | Llamada de alarma o de vuelo | Fuente |
|---|---|---|
| Faisán común | «Gogok gogok…» del macho; serie rápida al despegar; la hembra con pollos, un sonido grave y abrupto | BOW (BOW, 2022 (faisán común)) |
| Faisán verde | Parecida a la llamada territorial, junto al aleteo al salir de la cobertura | Beebe; BOW (Beebe, 1922 (vol. III); BOW, 2022 (faisán verde)) |
| Gallo verde | «Chop, chop, chop» o «op, op, op», aguda y rápida, repetida muchas veces | Beebe, 1921 (Beebe, 1921) |
| Gallo de Lafayette | «Tsek» a solas si sospecha; «clock, clock» si se alarma | Beebe, 1921 (Beebe, 1921) |
| Faisán de Lady Amherst | «Xi-ya» muy aguda, a la que la hembra con pollos suma un «gua» ronco; los demás huyen en desbandada | Yang et al., 1992 (Yang et al., 1992) |
| Koklas | Cacareo áspero al levantarse, a diferencia del kalij; «kuk! kuk!…» cerca de una hembra con crías | Beebe; Madge y McGowan (Beebe, 1922 (vol. III); Madge y McGowan, 2002) |
| Monal del Himalaya | Silbido agudo al salir volando, con notas chillonas; ante un ruido dudoso, un «cluk» grave | Beebe, 1918 (Beebe, 1918) |
| Faisán ensangrentado | Un «chic» estridente repetido; en peligro, todo el grupo emite notas bruscas | Lelliott; Beebe (Beebe, 1918; Johnsgard, 1986) |
| Pavo real azul | «Kok-kok-kok-kok» al levantar el vuelo; reclamo que suele delatar al depredador | Beebe; BOW (Beebe, 1922; Fichas de la web, 2026) |
| Pavo del Congo | Cloqueo con el cuello estirado | Johnsgard; Roles (Johnsgard, 1986; Roles, 1976) |
Selección de los casos descritos; las transcripciones son del oído de cada autor.
Las alarmas no solo informan a los de la misma especie. Beebe observó que en el tragopán satyr hay aves que interpretan sin vacilar las voces de alarma de cuervos y charlatanes y se alejan antes de haber visto el peligro; el koklas se asocia estrechamente a los charlatanes de garganta blanca, que suben a los arbustos, ven más lejos y dan la alarma a gritos; y el pavo real azul pone sobre aviso con su reclamo a otras especies, que lo usan para detectar depredadores (Beebe, 1918; Beebe, 1922 (vol. III); Fichas de la web, 2026). Beebe relata que el koklas responde a cualquier ruido fuerte: después de un disparo, todos los machos a menos de media milla gritan a la vez, y lo mismo ocurre con un trueno (Beebe, 1922 (vol. III)); los faisanes verdes, según el mismo autor, se excitan igualmente con un trueno o con disparos (Beebe, 1922 (vol. III)); algo similar describió Beebe del gran argus, que reacciona con un grito a un disparo o a un trueno, incluso a mediodía (Beebe, 1922). En el faisán verde japonés, la creencia de que los faisanes gritan antes de un terremoto procede de relatos y no se ha comprobado científicamente en las obras consultadas (Fichas de la web, 2026).
Voces de los polluelos y de la madre
Los polluelos tienen su propio repertorio. Heinz y Gysel (1970) describieron en el faisán común tres llamadas de pollos hasta las siete semanas: de «contento», cuando están calientes, descansan con otros jóvenes o se acomodan para dormir, de dos sílabas con énfasis en la segunda; de «precaución», ante un objeto extraño; y de angustia, para los separados de la hembra o los pollos aislados, hambrientos o con frío (Johnsgard, 1986). La madre tiene, según la misma fuente, una llamada de «precaución de cría», parecida a la alarma de suelo de la gallina doméstica, y una llamada de «reunión de la cría» (un cloqueo o ladrido) que emite cuando, tras alzar el vuelo, aterriza y vuelve poco a poco al punto de partida para reunir a sus pollos dispersos; las hembras con pollos hacen también una llamada de vuelo (Johnsgard, 1986). En el monal del Himalaya, Beebe describe el silbido de la hembra y de sus pollos, en que el de los jóvenes es más agudo que el de la madre, y una nota materna baja y nasal; los pollos emiten un chirrido silbado que se va transformando en la llamada adulta (Beebe, 1918). El faisán de Lady Amherst tiene una llamada de la madre a los pollos, «guo guo guo», más tenue y lenta que la de la gallina doméstica, y un «zizizi» de los pollos que buscan a la madre (Yang et al., 1992).
Antipredación y alarma: huir, quedarse quieto o pasar inadvertido
Los sentidos, la vigilancia, el camuflaje de las hembras y los jóvenes, y las tres respuestas habituales ante un depredador: correr, volar o agazaparse.
Un faisán vive rodeado de depredadores terrestres y aéreos, y su defensa depende de ver y oír antes que ser visto, de avisar a los compañeros y de elegir entre huir y esconderse. Este apartado trata la conducta; los depredadores concretos de cada especie y su peso en la población se examinan en el capítulo de ecología.
Los sentidos
Johnsgard repasa lo que se sabe de la gallina doméstica y lo da por aplicable en líneas generales al grupo. La visión es relativamente aguda por el gran número de conos de la retina; el campo visual total ronda los 300°, con unos 26° de visión binocular, y el color es importante en la conducta, lo que ayuda a explicar la frecuencia de colores vivos en el macho como señal social. El oído se centra, según ensayos con pollos, entre 100 y 2.800 Hz, un intervalo en el que caen también las vocalizaciones; el gusto se considera pobre y el olfato, poco desarrollado (Johnsgard, 1986). En la práctica, los naturalistas que los observaron en libertad insistieron en la agudeza de sus sentidos. Beebe, entre los faisanes comunes del Yangtsé, anotó que levantan la cabeza cada uno o dos segundos al comer, que el crujido de una ramita alerta a la bandada, que el menor ruido de un pie en la grava hace que todas se agazapen y que los cazadores vestidos de blanco para cazarlos sobre la nieve eran detectados a cien yardas; aprenden además a distinguir a los campesinos inofensivos de los hombres con escopeta (Beebe, 1922 (vol. III)). Del gran argus dice que su oído y su vista son notablemente superiores a los de otros faisanes, y atribuye a esa alerta que sobreviva pese a anunciarse con un reclamo tan potente (Beebe, 1922). Y el gallo de Lafayette aprende a distinguir grados de peligro: el mismo camino que recorrían a pie los hacía huir a cien yardas, pero en un carro tirado por bueyes dejaba acercarse a las aves a treinta o cuarenta (Beebe, 1921).
Huir, volar o agazaparse
Ante un depredador, el faisán común suele retirarse a cubierto y esconderse, aunque también puede volar, agazaparse o correr (BOW, 2022 (faisán común)). Hay patrones propios de cada especie y, dentro de cada una, de cada sexo. En el faisán dorado, Beebe describió una diferencia sorprendente: cuando el peligro llegaba y el macho estaba lejos de la espesura, zigzagueaba velozmente entre rocas y piedras hasta que la vegetación verde lo ocultaba; la hembra, en cambio, se agazapaba al instante y permanecía inmóvil mientras creyera que había sospecha de peligro, y nunca la vio correr más de cinco metros hacia el refugio; su plumaje se confunde tan bien con las rocas erosionadas que no la habría localizado de no tenerla ya marcada (Beebe, 1922). Beebe resumió el patrón en 1926: en los faisanes dimórficos, si la alarma viene de lejos, los machos echan a volar enseguida mientras las hembras se agazapan durante más o menos tiempo, según el grado del peligro, como comprobó en el dorado y en el de Lady Amherst, entre otros (Beebe, 1926). Y de los jóvenes, anota Beebe que los monales juveniles se agazapan hasta que vuelan bien, mientras que los adultos reaccionan según el peligro: ante un mamífero terrestre, ascienden de golpe a un árbol; ante una rapaz, estallan del suelo hacia el abrigo más cercano (Beebe, 1918).
El faisán Wallich lleva la inmovilidad al extremo. Beebe subraya que tanto machos como hembras confían en el camuflaje y se agazapan en vez de correr o volar: casi se puede poner el pie sobre un macho acurrucado entre la hierba rala, y cuando se alarman de verdad es casi imposible hacerlos levantar sin perro; los cazadores le contaron que se les había derribado con un palo e incluso cogido con la mano. Wilson, citado por Beebe, dice que, si el terreno es abierto, corre muy deprisa hasta doscientas o trescientas yardas antes de volar, y que tras esconderse permanece tan quieta que, aun con los mejores perros, más de la mitad no se vuelve a levantar (Beebe, 1918; Beebe, 1922 (vol. III)). El koklas hace algo parecido: cuando el perro de Beebe apareció, el macho voló a un árbol gritando mientras la hembra y los polluelos se agachaban inmóviles hasta que el perro tropezó con ellos (Beebe, 1922 (vol. III)). En el gallo verde las hembras recién capturadas a veces se agachaban hasta que uno se acercaba mucho y luego aleteaban como locas, mientras que los machos se lanzaban a un lado y a otro intentando escapar (Beebe, 1921). El gran argus, por su parte, se aplasta contra el suelo: una hembra permaneció inmóvil durante la algarabía de unos gibones, y su plumaje se confundió con la hojarasca (Beebe, 1922).
Los ensangrentados y los monales representan el extremo contrario, el de la vigilancia sin esconderse. Beebe describe a los ensangrentados como poco recelosos, curiosos ante los objetos extraños: la bandada transmite sus sospechas con la postura más que con la voz, y cuando un ave se yergue y mira fijamente algo, todas dejan de comer y se quedan inmóviles hasta que pasa la sospecha (Beebe, 1918). Johnsgard los considera quizá el más manso de todos los faisanes, y precisamente por ello expuesto a la extinción local si no se controla la caza (Johnsgard, 1986). El monal del Himalaya, en cambio, confía en la vista y actúa de inmediato sin esconderse; Beebe nunca supo de un adulto que se agachase para pasar inadvertido; las hembras, mejor camufladas, parecen más tranquilas que los machos, y en invierno la alarma se contagia, mientras que en primavera cada ave espera a verse amenazada por sí misma (Beebe, 1918). Beebe hizo notar también que la coloración del macho (negro por debajo, mancha blanca en el dorso) no responde a ningún camuflaje, y que la protección del ave está en la vigilancia y la huida (Beebe, 1918). Johnsgard señala que, donde se les protege, como en el parque nacional de Sagarmatha, los monales se vuelven bastante mansos, y donde se les caza son extremadamente cautelosos (Johnsgard, 1986).
Camuflaje de hembras y jóvenes
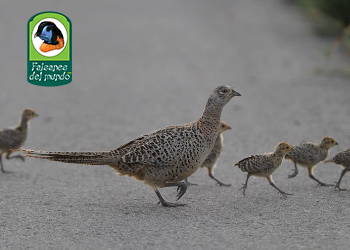
El plumaje críptico de las hembras y de los jóvenes es el primer recurso para quedarse quieto. Beebe lo documentó en varias especies. En el cheer, confundió con un pequeño felino a un ave que avanzaba entre los tallos de hierba seca, con las plumas moteadas del color de las briznas; en el dorado, la hembra se confunde con rocas erosionadas; y en el argus, la hembra se fundía con hojarasca roja y caladios (Beebe, 1922; Beebe, 1922 (vol. III)). A la quietud de los polluelos contribuye la alarma de la madre: en el faisán común, la hembra con pollos emite un sonido grave y abrupto y los pollos se desvanecen (BOW, 2022 (faisán común)). En el monal chino, Johnsgard recoge de Schafer que los jóvenes, cuando se alarman, se esconden bajo las alas de la madre (Johnsgard, 1986). Los machos de colores vivos dependen de la distancia: el macho del faisán dorado llama la atención a primera vista incluso inmóvil, y Beebe prefería dejar la cuestión del color protector a las propias aves (Beebe, 1922).
Defensa activa, engaño y centinelas
A veces la defensa es activa. En el faisán común, según Birds of the World, las hembras a veces hacen una exhibición de ala rota con los pollos o encaran a pequeñas rapaces hasta que la nidada se pone a cubierto, y el macho puede atacar a las rapaces; Beebe recoge varios relatos de gallinas que se enfrentaron a pequeños gavilanes y cubrieron la retirada de sus pollos (Beebe, 1922 (vol. III); BOW, 2022 (faisán común)). El gallo rojo hembra con pollos puede fingir una herida para alejar al intruso mientras los pollitos se quedan inmóviles entre las hojas muertas, aunque Beebe lo interpretó más como un espasmo de miedo que como una estrategia (Beebe, 1921). En el faisán verde, Birds of the World anota que los adultos permanecen inmóviles durante un periodo prolongado, más que el común en situaciones similares, y que los pollos son menos vocales ante un depredador (BOW, 2022 (faisán verde)). Ali y Ripley, según Johnsgard, citan en el monal de Sclater una alarma que repite a veces un «centinela» desde un peñasco que domina la ladera (Johnsgard, 1986). Y los pavos reales azules hostigan a las serpientes: Beebe vio a uno atosigar a una víbora de Russell durante unos diez minutos sin acercarse a distancia peligrosa; Johnsingh observó a dos pavos picotear a una cobra y retroceder con las plumas del cuello erizadas cuando levantaba la capucha (Beebe, 1922; Fichas de la web, 2026).
La compañía de otras especies es otra defensa. Los charlatanes (Timaliidae) acompañan a gallos, koklas y gallos de Sonnerat, levantan su alarma y se benefician de los insectos que los faisanes remueven; en el caso del koklas, el faisán se escapa en la misma dirección que el vuelo de los pájaros (Beebe, 1921; Beebe, 1922 (vol. III)). Los gallos verdes, por el contrario, parecían a Beebe muy aislados de las demás aves de la zona (Beebe, 1921). Beebe anotó además que los koklas se quedan inmóviles cuando pasa una tropa de langures (Beebe, 1922 (vol. III)).
Cuidado parental: la hembra y el macho
Lo estrictamente conductual: quién cuida y cómo, hasta cuándo siguen los pollos a la madre y qué papel tiene el macho; los nidos, la incubación y las cifras de puesta se tratan en el capítulo de reproducción.
En todos los faisanes de los que se tiene noticia incuba únicamente la hembra, y el cuidado de los pollos recae sobre todo en ella; el papel del macho es menor o nulo en la mayoría de las especies, con gradaciones y dudas en otras que se detallan más abajo (Johnsgard, 1986; Madge y McGowan, 2002). Los datos de incubación, tamaño de puesta y nido están en el capítulo de biología reproductiva y los de crecimiento y aprendizaje de los pollos en el de desarrollo; aquí se recoge solo lo que ocurre en el comportamiento social.
La hembra con la pollada
Johnsgard resume, con datos de la gallina doméstica, que los polluelos reconocen a su madre por pistas acústicas y visuales, que la madre aprende a reconocer a su propia pollada mediante un proceso complejo de «reconocimiento-impresión» que abarca a toda la pollada, y que un pollo extraño se acepta si se comporta como el resto, mientras que los claramente distintos pueden ser atacados; en la gallina, los pollos siguen a la madre en contacto físico estrecho los diez a doce primeros días, luego se alimentan por su cuenta pero siguen durmiendo bajo ella, y la pollada se deshace gradualmente cuando tienen de seis a ocho semanas; en los faisanes, las polladas tienden a deshacerse en esas mismas fechas (Johnsgard, 1986). Birds of the World da para el faisán común que los pollos siguen a la madre de 70 a 80 días (BOW, 2022 (faisán común)). Las hembras con pollos permanecen a menos de 100 m del nido la primera semana y después se alejan hasta 1.000 m; en el norte de Iowa se midieron 155 m de media entre el dormidero y el lugar de la mañana (BOW, 2022 (faisán común)).

En los pavos reales y sus parientes, Johnsgard destaca una forma peculiar de empollar: la hembra cobija típicamente a un pollo bajo cada ala, con los pollos mirando hacia delante y a veces con la cabeza asomando por el borde del ala, lo cual coincide con la puesta normal de dos huevos; la escena puede ocurrir en grandes ramas de árboles además de en el suelo (Johnsgard, 1986). Cuando los pollos del monal chino se alarman, se esconden bajo las alas de la madre (Johnsgard, 1986). En el faisán de Lady Amherst, según el estudio de Kunming, desde la puesta hasta que los jóvenes son subadultos los pollos siguen a la madre en grupo, y no se vio a ningún macho agruparse con las hembras y las crías (Yang et al., 1992).
La madre protege a la pollada con voz y con engaño. Las llamadas de precaución y de reunión se trataron en el apartado de voces; en cuanto a las defensas, la hembra puede hacer una exhibición de ala rota o encarar a pequeñas rapaces hasta que los pollos se escondan, y en el pavo azul se vio a una hembra con dos pollos adoptar posturas amenazadoras ante un drongo real (BOW, 2022 (faisán común); Fichas de la web, 2026). En el pavo del Congo, la hembra que defiende el nido o las crías puede bajar tanto las alas que las muñecas casi tocan el suelo, según Jeggo, y en la amenaza extrema los ejemplares cautivos con crías bajan el pecho casi hasta el suelo y mantienen alas y cola casi verticales (Johnsgard, 1986; Roles, 1976). En el koklas, una hembra con crías responde a la alarma del macho agachándose con los polluelos, inmóviles (Beebe, 1922 (vol. III)). Y en el tragopán satyr, según los cazadores locales y Beebe, una hembra y uno o dos de sus pollos casi crecidos permanecen juntos buena parte del invierno, y entonces las aves callan, salvo la madre, que se comunica con sus jóvenes con el mismo cloqueo bajo que usó cuando eran pollos (Beebe, 1918; Johnsgard, 1986).
El papel del macho
En casi todas las especies el macho se mantiene al margen, pero hay gradaciones documentadas. En el koklas, Beebe halló al macho, mañana, mediodía y tarde, siempre a menos de cien yardas de la hembra que incubaba, y observó que, ante una molestia, emitía una señal de sospecha o de miedo, al parecer en beneficio de la hembra (Beebe, 1922 (vol. III)). En el gallo rojo, Beebe señala que el macho ayuda a encontrar la comida de los pollos cuando tienen una semana o más, y que a veces se ve a una familia completa con macho, hembra y dos jóvenes durmiendo juntos (Beebe, 1921). En el kalij, Johnsgard cree que el macho es facultativamente poligínico, abandona a su primera hembra cuando empieza a incubar pero permanece con la última para ayudar a criar a los pollos, o vuelve a su única hembra cuando eclosiona la pollada si no ha tenido éxito con otras (Johnsgard, 1986). En el faisán de Reeves, en cambio, Johnsgard destaca la aparente falta de interés del macho por cuidar a los jóvenes (Johnsgard, 1986). En el faisán Wallich, Beebe vio a macho y hembra cavar juntos en busca de comida, salvo cuando ella incuba, y Johnsgard supone que los grupos de invierno son familias que se mantienen unidas hasta la siguiente cría (Beebe, 1922 (vol. III); Johnsgard, 1986). Entre los monales del Himalaya, Beebe vio a catorce machos adultos reunidos en un claro durante el periodo de nidificación, sin una sola hembra, y supuso que cada uno tendría una hembra incubando en el bosque; en las laderas contiguas estaba seguro de que solo había dos nidos (Beebe, 1918).
Johnsgard recuerda, además, que no parece posible estimular a los machos de gallina doméstica a empollar huevos, aunque sí a cobijar pollos, y que la presencia de polluelos aún con plumón puede inducir a la hembra a cuidarlos incluso sin haber incubado antes (Johnsgard, 1986). Son datos de la gallina doméstica, y no se dan para otras especies.
Comportamiento en cautividad: carácter, picaje, ovofagia y pánico
Los vicios y las respuestas del faisán a la vida en recinto, según manuales de Delacour, Gerrits, Howman, Roles y Corder y los documentos de un criadero chileno, con las fechas de cada fuente.
La cautividad cambia el comportamiento de un faisán de tres maneras: lo concentra en un espacio pequeño donde la huida no es posible, lo priva de buena parte de sus tareas diarias (buscar comida, desplazarse, defender un territorio) y le obliga a convivir con congéneres con los que no se asociaría en libertad. De ahí salen los problemas que describen los criadores desde hace décadas: pánico con lesiones, agresión de los machos a las hembras, picaje de plumas, canibalismo y ovofagia. Casi todo lo que se escribe sobre ello son manuales de práctica, no estudios; los datos que se citan van fechados.
Carácter: de la timidez a la mansedumbre
La respuesta al cautiverio varía mucho de una especie a otra y de un individuo a otro. Delacour describía a los faisanes cautivos como a menudo tímidos y salvajes, aves que se lanzan contra la malla y se lesionan la cabeza, y recomendaba disponer escondites desde el principio en un recinto nuevo para aves tímidas (Delacour, 1977). Aun así, algunas especies se amansan: Delacour decía del dorado que es mansa y fácil de criar, y del tragopán de Cabot que es quizá la más mansa y gentil de todos los tragopanes (Delacour, 1977; Delacour, 1978); Roles y Delacour describen al pavo del Congo como comparativamente manso y estable en cautividad, y al gran argus capturado en el campo como relativamente dócil (Delacour, 1977; Roles, 1976); en los orejudos, Gerrits habla de una gran mansedumbre y poca inclinación a volar (Gerrits, 1974). En el cheer, Delacour escribe que los ejemplares capturados en libertad suelen mantenerse esquivos, pero que los criados en casa suelen ser mansos (Delacour, 1977). Howman (1979, 1993) escribe de los firebacks de cresta de Borneo que sus machos se vuelven mansos y a veces belicosos en cautividad (Howman, 1979; Howman, 1993).
Pánico y «locura de jaula»
Casi todos los manuales destacan el pánico. Corder advierte de que los faisanes alarmados suben en vertical de forma explosiva y de que la velocidad del ascenso puede causar lesiones graves en la cabeza o la muerte; propone pasar tiempo con las aves hasta que no se alarmen con la presencia humana, acolchar las vigas o colgar una cortina de malla del techo para amortiguar los golpes si se produce un pánico nocturno (Corder, s. f.). Roles señala que un gato sobre el techo del aviario puede provocar un pánico ciego, en el que las aves se escalpelan o se rompen el cuello (Roles, 1976). Corder añade que un monal con plumas blancas en la nuca tenía su origen en un golpe contra una viga en un pánico, y que en una granja de caza las aves metían una y otra vez la cabeza por la malla de 3 pulgadas intentando escapar, con contusiones en el cuello que producían plumas blancas (Corder, s. f.). Delacour recomendaba cortar las diez primarias de un ala en las aves que tienden a lanzarse contra el techo, y algunos criadores prefieren pinzar el ala para evitar de forma permanente las pérdidas por pánico, salvo en hembras de especies cuyos machos son peligrosos (Delacour, 1977).
Estereotipias
Corder describe una conducta que conoce cualquier criador: los faisanes «traquetean» el alambre, yendo y viniendo y arrastrando el pico por la malla hasta desgastar un camino en un punto elegido. Lo hacen sobre todo cuando están estresados, pero, según él, puede convertirse en una conducta estereotipada si el entorno no los estimula; los troncos y las rocas bien colocados lo evitan y enriquecen el recinto, y además permiten las exhibiciones de aves como los tragopanes, que a menudo no crían sin ellos (Corder, s. f.).
Agresión entre machos y de los machos a las hembras
Delacour (1977) decía que los faisanes son extremadamente pendencieros y que, en general, solo se puede alojar una pareja, o un macho con dos o tres hembras, en el mismo recinto; que a veces se pueden tener varios machos sin hembras en una gran pajarera, pero hay que esperar accidentes, y que los miembros de géneros muy distintos rara vez pelean (Delacour, 1977). Añade que los machos muy a menudo acosan y acaban por matar a las hembras, sobre todo en confinamiento estrecho, y que como remedios se emplean mucho espacio y escondites, «anteojos» metálicos, el recorte del pico o el pinzado del ala; en casos extremos, si el macho no puede sustituirse, el último recurso es mantener separados a los dos (Delacour, 1977). Corder, en el material de los talleres de la WPA, insiste en lo mismo: en el aviario, la hembra no puede escapar de las atenciones constantes de un macho que está en condición y quizá ella no, y puede acabar acosada, herida o muerta; la solución es una zona donde pueda quedar fuera de la vista del macho (Corder, s. f.). Gerrits (1974) desaconseja alojar varios pavos reales verdes machos juntos y, del gran argus, dice que las hembras no deben ir juntas ni conviene alojar espoloneros en el mismo recinto (Gerrits, 1974). Corder anota también el acoso entre polluelos de especies distintas: un polluelo de faisán de Swinhoe criado con dos de faisán pavo gris fue arrinconado por ellos hasta que se le separó para alimentarlo aparte (Corder, s. f.).
Picaje de plumas y canibalismo
El picaje (o «pterofagia») es el vicio de arrancar plumas propias o ajenas. El criadero Chintaguay (Chile, 2006) lo describe como una conducta que aparece bajo estrés, que afecta normalmente a las plumas del pecho cuando son las propias y a la cabeza, el cuello y la espalda cuando son de otros; si el estrés continúa se extiende al ano y los dedos, las heridas sangrantes excitan más el picoteo y puede degenerar en canibalismo, con muerte de las aves atacadas. Es más frecuente en el faisán común y el de Reeves, en la muda y en el primer mes de vida y entre los 3 y 4 meses de edad, y se agrava en jaulas pequeñas, con exceso de calor y fuerte iluminación (del Campo, 2006 (TTT)). Las causas que cita son una dieta pobre en proteína (aminoácidos azufrados), vitamina C o sal, alta densidad, incubación a temperaturas demasiado altas, la mezcla de edades y de especies (un ejemplo es criar juntos faisanes comunes y especies de Lophura, cuyas carúnculas rojas bajo los ojos llaman la atención de los comunes), la luz intensa o blanca, la falta de acceso a comida o agua, dejar heridos o muertos a la vista, la falta de refugios y el estrés ambiental (del Campo, 2006 (TTT)). Como medidas propone prevenir con espacio y dieta, vigilar y separar a agresores y víctimas, distractores como alimentos vivos o atados de verdura, luz atenuada o roja en las criadoras, no mezclar edades ni especies, no trasladar aves en los periodos críticos, y, si hace falta, el despique (del Campo, 2006 (TTT)).
Los manuales clásicos dicen cosas parecidas. Gerrits (1974) atribuye el picaje de plumas entre los polluelos a un cuidado deficiente, con falta de espacio y escasez de proteínas o de celulosa, y señala que cuesta mucho acabar con el vicio una vez iniciado; en los orejudos adultos, en recintos pequeños, picotean las plumas de la cola por falta de celulosa en la dieta y por aburrimiento, y los polluelos de orejudo tienen la costumbre de picarse los dedos (Gerrits, 1974). Delacour (1978) señala que el deseo de dominar se vuelve más fuerte hacia las dos o tres semanas de edad y que el canibalismo puede aparecer en cualquier momento; recomienda comprobar la temperatura de la criadora, aumentar los comederos, oscurecer la criadora o usar luces rojas, dar verde jugoso, ofrecer mucha maleza cuando se produce después de la tercera semana, retirar a las aves picadas y no criar edades distintas en el mismo corral (Delacour, 1978). Más espacio ayuda: veinte a veinticinco pies cuadrados por ave en corrales de retención para evitar el canibalismo en aves destinadas a la suelta (Delacour, 1978).
Recomendación editorial: los tres documentos coinciden en lo esencial (espacio, refugios, verde y proteína adecuados, vigilancia y separación temprana de las aves agredidas); el despique, las «anteojeras» y otros recursos físicos que mencionan los criadores de hace décadas son medidas de último recurso, y conviene intentar antes las correcciones de espacio, luz, dieta y densidad.
Ovofagia
La ovofagia es el vicio de picar y comerse los huevos. Howman (1979, 1993) la considera un problema grave, casi seguramente propio de las condiciones de cautividad, que con algunas parejas no ocurre nunca y con otras, una vez iniciada, no se detiene; la causa básica suele ser la falta de cobertura de nidificación, y probablemente empieza cuando las aves golpean el objeto nuevo, el huevo, en su recinto; casi siempre la empieza el macho (Howman, 1979; Howman, 1993). Los documentos de Chintaguay (2006) la ven sobre todo en el faisán común y en el plateado, que ponen en el suelo, y a veces en el de Swinhoe; añaden que la gran mayoría de las especies se habitúa a picar y comerse los huevos si se les facilita, salvo el dorado y el de Reeves, que rara vez muestran la tendencia (del Campo, 2006 (TTT)). Roles señala que es un problema recurrente en todas las especies de Crossoptilon; Delacour (1978) contaba que había probado casi de todo sin éxito, y que lo mejor fue dejar huevos cocidos por el recinto hasta que se hartaron (Delacour, 1978; Roles, 1976).
Las medidas son parecidas en todas las fuentes: recoger los huevos cuanto antes, ofrecer nidos y huevos señuelo de madera, piedra o yeso, y, si el culpable es el macho, separarlo de la hembra durante la postura, pues la fertilidad no exige que estén juntos siempre. Chintaguay añade que los espermatozoides pueden permanecer viables hasta 15 días en las glándulas de almacenamiento de la hembra, y que basta con juntarlos unas horas durante tres o cuatro días; las «anteojeras» y el despique son recursos ulteriores; y los huevos rellenos de picante o los podridos son recursos de último orden: Chintaguay admite que algunas aves se los comen igual, y Corder y Howman dicen que estas pruebas rara vez dieron resultado (Corder, s. f.; del Campo, 2006 (TTT); Howman, 1979). Corder precisa que en algunas especies, como el dorado y el de Lady Amherst, basta una sola cópula para fecundar todos los huevos de la hembra, mientras que en el monal parece necesaria la fecundación de cada huevo, de modo que con un monal ovófago hay que apartar al macho el día en que la hembra va a poner, esto es, cada tercer día (Corder, s. f.). Corder concluye que la mejor forma de evitar la ovofagia es lograr que las aves se comporten con naturalidad y empollen sus huevos (Corder, s. f.). Además, las hembras que ponen en perchas cuando los machos las hostigan demasiado rompen los huevos; el remedio es dar más protección a la hembra (del Campo, 2006 (TTT)).
| Problema | Quién lo describe | Medidas habituales |
|---|---|---|
| Pánico y golpes en el techo | Delacour, 1977; Roles, 1976; Corder (s. f.) (Corder, s. f.; Delacour, 1977; Roles, 1976) | Aves mansas, techos acolchados o cortina de malla, cortar primarias, evitar gatos en el tejado |
| Agresión del macho a la hembra | Delacour, 1977; Corder (Corder, s. f.; Delacour, 1977) | Espacio y escondites, separación del macho, anteojos metálicos |
| Picaje y canibalismo | Gerrits, 1974; Delacour, 1978; Chintaguay, 2006 (del Campo, 2006 (TTT); Delacour, 1978; Gerrits, 1974) | Espacio, dieta (proteína, celulosa, verde), luz atenuada o roja, no mezclar edades, separar a los agredidos |
| Ovofagia | Howman, 1979; Roles, 1976; Delacour, 1978; Corder; Chintaguay, 2006 (Corder, s. f.; del Campo, 2006 (TTT); Delacour, 1978; Howman, 1979; Roles, 1976) | Recoger huevos, nidos y señuelos, separar al macho, anteojeras o despique |
| Estereotipias en la malla | Corder (s. f.) (Corder, s. f.) | Troncos y rocas, entorno estimulante |
Los manuales citados son de épocas distintas: la edición de 1977 de Delacour recoge su experiencia de la primera mitad del siglo XX; el material de Corder es sin fecha de edición y el de Chintaguay es de 2006.
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1922). A Monograph of the Pheasants, vol. III. Londres: H. F. Witherby (para la New York Zoological Society). Se cita para el koklas, el faisán común, el faisán verde y el faisán Wallich (cheer), en la lectura directa del volumen y, para los pasajes que citan las fichas de esta web, a través de ellas.
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association (Warrington). Folleto sin fecha de edición, redactado desde la práctica del Reino Unido; cita como obra más reciente sobre el tema la de Howman (1993) y la de Cooper (2003).
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Campo Palacios, P. P. (2006). TTT: Picaje y canibalismo (v. 2.1, 10 de noviembre de 2006) y TTT: Ovofagia (v. 3.1, 10 de noviembre de 2006). Serie «Técnicas, trucos y trampas» del criadero Chintaguay, Concepción (Chile); material de distribución gratuita, faisanes.cl.
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978). Revisión, hecha por Delacour en 1977, del manual de C. F. Denley, Ornamental Pheasants: Their Breeding and Care (1935); los capítulos de alojamiento conservan en lo esencial el texto de Denley.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Giudice, J. H., Ratti, J. T. y Mlodinow, S. G. (2022). Ring-necked Pheasant (Phasianus colchicus), versión 1.1. En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe1. Se cita a través de la ficha del faisán común de esta web, que consultó la página.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2026). Fichas monográficas de especie de Faisanes del Mundo (en especial las del faisán común, el verde, el dorado, el de Lady Amherst, el Wallich, el argus de Rheinard, el gran argus, el ensangrentado, los tragopanes y los monales), cada una con sus fuentes. Fundación Zoo Koki, faisanesdelmundo.com. Se citan cuando el dato procede de una ficha y no se ha podido contrastar con la fuente que ella recoge.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Kirwan, G. M., McGowan, P. J. K. y Boesman, P. F. D. (2021). Vietnamese Crested Argus (Rheinardia ocellata), versión 1.1. En Birds of the World (G. M. Kirwan, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/crearg1. Se cita a través de la ficha del faisán argus de Rheinard de esta web, que consultó la página.
- Limparungpatthanakij, W. L. y Pyle, P. (2022). Green Pheasant (Phasianus versicolor), versión 1.0. En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe2. Se cita a través de la ficha del faisán verde de esta web, que consultó la página.
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Yang Lan (杨岚) et al. (1992). 中国雉类 白腹锦鸡 [The Chinese Phasianids: Lady Amherst’s Pheasant]. Pekín: China Forestry Publishing House. Libro en chino con resumen en inglés; se cita solo a través de lo que recogen las fichas del faisán dorado y del faisán de Lady Amherst de esta web (datos de ADN mitocondrial).
Otras obras consultadas
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Cómo citar este capítulo: Hernández García, I. (2026). Comportamiento general y social de los faisanes. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/comportamiento.php.
Organización social: solitarios, parejas, familias y bandadas
Cuántos faisanes se ven juntos, de qué sexo y edad, y cómo cambia el tamaño del grupo con la estación; un cuadro por especies con las discrepancias entre los autores.
La organización social de los faisanes cubre todo el espectro, de los argus, casi siempre solos, hasta los ensangrentados y los orejudos, que forman bandadas de decenas de aves. Beebe, en 1918, los clasificó por su comportamiento en solitarios, de pareja y gregarios, y colocó al faisán Wallich entre los que se ven por parejas o tríos; Delacour lo agrupa con los tragopanes, los koklas y los faisanes de cola larga y dorados, más frecuentes en parejas (Beebe, 1918; Delacour, 1977; Fichas de la web, 2026). Pero esa clasificación esconde mucha variación estacional y local: casi todas las especies que forman bandos solo lo hacen en invierno o ante un recurso concentrado.
Una pauta estacional
La pauta más repetida es la de bandos invernales que se deshacen en primavera. En el faisán común, según Collias y Taber (1951) en Norteamérica, las aves forman en invierno bandadas temporales de miembros cambiantes que se desplazan y se alimentan como una unidad más o menos coherente; los machos y las hembras comen a veces juntos y a veces en grupos de un solo sexo; los dormideros invernales reúnen de dos a más de veinticuatro aves, más numerosos con frío intenso; y esas agrupaciones se transforman gradualmente, al avanzar la estación, en harenes de hembras dominados por un macho (Johnsgard, 1986). Según la síntesis de Birds of the World, los machos adultos son solitarios durante la cría y forman a menudo, fuera de ella, pequeños grupos de hasta diez aves, a veces con varias hembras; las hembras son más gregarias y pueden formar grupos de hasta 30 en invierno, con bandadas mixtas de hasta 50 (BOW, 2022 (faisán común)).
El faisán verde sigue una pauta parecida en miniatura. Johnsgard, a partir de Kuroda (1981), anota que los machos en invierno pueden permanecer solos, formar grupos de hasta cuatro o verse como parejas aparentes, y que las hembras forman a menudo grupos de hasta seis; las crías parecen permanecer con ellas solo hasta septiembre (Johnsgard, 1986). Beebe describía parejas o pequeños grupos en invierno, emparejamiento en primavera y reunión en bandadas familiares en otoño, con varias bandadas durmiendo juntas en la estación fría (Beebe, 1922 (vol. III)).
El faisán de Lady Amherst es la especie con el seguimiento más fino del año social. Según el estudio de Kunming, desde la puesta los pollos siguen a la madre en grupo y no se vio a machos agruparse con las hembras y las crías; a partir de octubre se juntan hembras, subadultos y machos de familias distintas y forman los grupos de alimentación y dormida del invierno, cuyo máximo observado en diciembre de 1986 superaba las 20 aves y cuyo mínimo era de 5, con grupos algo mayores de 10 como lo más frecuente; desde principios de marzo, cuando los machos se pican a menudo entre sí, los grupos se deshacen (Yang et al., 1992). Beebe ya había descrito cómo varias familias se juntan en otoño y los jóvenes de plumaje de hembra dan la impresión de una gran mayoría de hembras en los grupos (Beebe, 1922).
Los números son los que dan los autores en cada caso; no son medias de población. «BOW» designa Birds of the World, citado a través de las fichas de la web.
Segregación de sexos y reunión alrededor de un recurso
En el monal del Himalaya, Beebe documentó una clara segregación de los sexos fuera de la cría: en otoño las hembras y los jóvenes de ambos sexos bajaban antes y llegaban a altitudes menores que los machos de plumaje completo, de modo que en el lado expuesto de una ladera podían verse decenas de hembras y jóvenes sin un solo macho; la separación se prolonga hasta la primavera y se acentuó, según él, por la persecución de los machos adultos por sus plumas (Beebe, 1918; Johnsgard, 1986). Subrayó que la sociabilidad del monal es muy laxa y depende más de la comida que de un verdadero instinto gregario: cuando el alimento (larvas, tubérculos) es escaso y local, se reúnen de una docena a treinta aves en pocos metros, y si es abundante y está repartido, pasan los meses fríos solitarios y a distancias considerables (Beebe, 1918). La reunión por el alimento es todavía más espectacular en el gallo de Sonnerat: Beebe recoge el testimonio de que cuando el matorral de Strobilanthes de los montes Pykarra dio semillas, los gallos se reunieron por cientos durante más de quince días y luego se dispersaron (Beebe, 1921).
Familias: el vínculo de la hembra con sus crías
En casi todas las especies, el grupo familiar básico es la hembra con sus pollos; el papel del macho se trata en el apartado de cuidado parental. Beebe encontró que en el gallo verde los jóvenes permanecen con los progenitores al menos seis o siete meses (Beebe, 1921). En el koklas, las polladas de jóvenes permanecen más o menos unidas hasta principios de primavera, cuando se separan y emparejan (Beebe, 1922 (vol. III)). En el faisán Wallich, Johnsgard considera que los grupos de invierno son probablemente familias que se mantienen unidas hasta la siguiente época de cría (Johnsgard, 1986). El capítulo sobre los sistemas de apareamiento trata si las parejas y harenes son monógamos o poligínicos.