La estación reproductora
Cuándo empieza y cuándo termina la cría en cada zona, y qué la marca: la luz, la lluvia, la altitud, la nieve y la comida.
En la mayoría de los faisanes la cría es claramente estacional: coincide con la primavera en las regiones templadas y con la estación de lluvias en las más tropicales (Johnsgard, 1986). Dentro de esa regla general hay mucha variación entre especies, entre subespecies y entre años, y para una buena parte de ellas casi todo lo que se sabe procede de un puñado de nidos hallados por naturalistas de principios del siglo XX, de los registros de aves capturadas en época de cría y de las colecciones de cautividad.
Este capítulo reúne lo que dicen los grandes manuales (Johnsgard, Madge y McGowan, el Handbook of the Birds of the World), los apartados de reproducción de las fichas de esta web y los documentos de criadores. Siempre que una cifra procede de aves en cautividad se dice, porque la cautividad suele adelantar o prolongar la estación y aumentar el tamaño de la puesta. Los periodos de incubación, el embrión y el polluelo se tratan en el capítulo sobre crecimiento y desarrollo; los sistemas de apareamiento y el cortejo, en el de apareamiento; el manejo en cautividad se reserva para el de avicultura.
Qué fija la fecha
La explicación más aceptada es doble. Johnsgard, a partir de los estudios del faisán común en Wisconsin, recoge que el momento en que empieza la puesta parece estar fijado por controles ambientales bastante rígidos, como el fotoperiodo, mientras que el comportamiento de nidificación y de cría depende más de factores que cambian cada año, como la temperatura de primavera (Johnsgard, 1986). En esos mismos estudios la fecha media de eclosión varió poco entre años (siempre entre el 12 y el 21 de junio en el periodo 1946–1956), pero las 5.985 fechas estimadas de eclosión se repartieron entre mediados de abril y finales de agosto, una dispersión de 21 semanas causada sobre todo por las puestas de reposición (Johnsgard, 1986). Para el mismo faisán, Johnsgard añade que cada hembra concreta empieza a poner dentro de los límites que impone el fotoperiodo según su edad, la temperatura local de ese año y su condición física al final del invierno, es decir, la rapidez con que reúne las reservas de energía que exige la puesta (Johnsgard, 1986).
Los criadores llegan a la misma conclusión. Howman (1979) señala que, dejando aparte la luz artificial, los factores principales de la fecha de la primera puesta en cautividad son las horas de luz, el tiempo, la edad de las aves y la calidad del alimento; el frío intenso retrasa la puesta y una primavera sin sol puede traer una temporada tardía y poca fertilidad, y las aves de primer año ponen una o dos semanas más tarde que las adultas (Howman, 1979). El criadero Chintaguay (Chile) afirma lo mismo de otro modo: los faisanes son fotosensibles, se reproducen en primavera y verano (de septiembre a abril en el hemisferio sur) y la puesta puede inducirse fuera de época añadiendo luz artificial durante al menos tres semanas (del Campo, 2006).
La lluvia y la comida mandan donde no hay una primavera marcada. El pavo real azul cría siempre ligado a las lluvias: empieza con el monzón en unas zonas y de enero a abril donde llueve pronto, y Sharma (1972, citado por Johnsgard) confirmó que el inicio coincide con la llegada de la lluvia (Johnsgard, 1986). El gallo verde de Java cría sobre todo durante el primer mes o dos del monzón del este, que es una época de insectos abundantes y brotes nuevos (Beebe, 1921; Johnsgard, 1986). Davison (1981, en Johnsgard) sitúa la cría del faisán noble en Malasia entre junio y agosto, en un periodo de gran disponibilidad de fruta; y la del gran argus y del faisán pavo malayo parece ligada a la comida, de modo que varía dentro de un mismo año y entre años (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002). En el gallo de Lafayette, Beebe vio en la reproducción «elástica» de los trópicos el efecto de los nidos destruidos por depredadores y no la prueba de dos épocas distintas: las puestas de reposición escalonan los huevos a lo largo del año (Beebe, 1921).
La altitud y la nieve retrasan la cría de las especies de montaña. En el koklas la puesta se retrasa a medida que se sube por la ladera (Fichas de la web, 2026), y en el cheer los nidos de las cotas bajas se empiezan hacia finales de abril, mientras que algunas aves de las cotas más altas no ponen hasta principios de junio (Johnsgard, 1986). En el faisán ensangrentado un nido de la forma kuseri con dos huevos seguía rodeado de nieve a unos 12.000 pies, y en Nepal la puesta coincide con la floración de los rododendros (Johnsgard, 1986). A 3.900 m, en el área del monal chino, la temperatura de abril ronda los 4–7 °C y puede caer a –10 °C con mucha nieve (del Hoyo et al., 1994). En el tragopán de Cabot, de 15 nidos seguidos en el campo, 13 se perdieron y dos de ellos por mal tiempo (nevadas durante la puesta o lluvia continua durante la incubación) (del Hoyo et al., 1994).
Cuándo cría cada especie
La tabla siguiente reúne la época de puesta en libertad que dan Johnsgard (1986), Madge y McGowan (2002), el Handbook of the Birds of the World (1994) y las fichas de esta web, sin mezclarla con las fechas de aves cautivas (que aparecen aparte). Las especies de las que no se conoce ningún dato de campo no figuran.
| Especie | Época de cría o de puesta en libertad | Fuente |
|---|---|---|
| Faisán ensangrentado | De mediados de abril a finales de junio; la mayoría de los nidos, en mayo. En Nepal, la puesta coincide con la floración de rododendros | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán occidental | Llamadas de marzo a junio; nidos hallados a finales de mayo y en junio | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Tragopán satyr | Mayo y junio; algunas aves de las cotas más altas, en julio; la puesta cae un mes después del máximo de llamadas del macho | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Temminck | Puesta desde principios de mayo; pollos recogidos en el Tíbet a primeros de julio, lo que sitúa el comienzo de la incubación hacia el 1 de junio | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Tragopán de Blyth | De principios de abril a mediados de mayo; más tarde en algunas zonas | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Cabot | Marzo–mayo; nidos hallados desde el 1 de abril; el único nido descrito por los clásicos, el 17 de mayo | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Koklas | Abril–junio (un nido a mediados de julio en Cachemira); en la forma nominal, de mediados de mayo a finales de junio | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal del Himalaya | En la India, de mediados de abril a finales de junio (huevos del 20 de abril al 27 de junio); abril–julio en el noreste de Afganistán y el Tíbet | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Monal de Sclater | En un estudio de campo en Yunnan, puesta desde finales de marzo y eclosión en mayo; aves en condición de cría a mediados de mayo en el Tíbet | (Fichas de la web, 2026; Johnsgard, 1986) |
| Monal chino | Marzo–junio, al parecer antes que otros faisanes alpinos de Sichuan | (del Hoyo et al., 1994) |
| Gallo rojo | Marzo–mayo en la época seca de la India (huevos hallados de enero a octubre); marzo–junio en Bangladés; diciembre–mayo en la península malaya, con máximo en enero y febrero; febrero–mayo en China | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo de Sonnerat | Sobre todo de febrero a mayo; en los Nilgiris occidentales, quizá de octubre a diciembre; en Travancore, de marzo a julio y a veces agosto | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Gallo de Lafayette | Huevos hallados en todos los meses; febrero–mayo es lo más habitual; en el norte de Sri Lanka, de febrero a agosto | (Beebe, 1921; Johnsgard, 1986) |
| Gallo verde | En Java, sobre todo de junio a noviembre; 16 nidos registrados de marzo a noviembre, ocho de ellos en mayo y junio; antes en el este que en el oeste | (Beebe, 1921; Johnsgard, 1986) |
| Faisán kalij | Siempre incluye abril y mayo; según la subespecie, desde febrero hasta octubre | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán plateado | En China, desde mediados de marzo en el centro de Guangdong y desde abril en el resto; marzo–mayo en el norte de Birmania y Tailandia | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Swinhoe | En Taiwán, de marzo a mayo (rara vez febrero); algunos registros hasta octubre atribuidos a puestas de reposición | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán cola rosa malayo | Huevos hallados desde mediados de marzo hasta junio (abril y junio en la península malaya) | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán noble | En Malasia, de junio a agosto según Davison, en un periodo de mucha fruta; Madge y McGowan dan abril–junio | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Bulwer | Estación larga o variable: inmaduros recogidos en agosto implican puestas hacia abril; el único nido conocido, en Brunéi en noviembre | (del Hoyo et al., 1994) |
| Orejudo blanco, marrón y azul | Blanco: mayo–junio; marrón: abril–junio; azul: abril–junio (mayo o principios de junio según Beebe) | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Wallich (cheer) | De finales de abril a principios de junio; a menor altitud, hacia finales de abril, y las aves de las cotas más altas hasta principios de junio | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Elliot | En el oeste de Zhejiang, de mediados de marzo a finales de mayo | (del Hoyo et al., 1994) |
| Faisán Hume | Nidos hallados de marzo a mayo | (Johnsgard, 1986) |
| Faisán Mikado | En Taiwán, hacia finales de abril y principios de mayo (por el estado de hembras recogidas); desde finales de abril según Madge y McGowan | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán cobrizo | Desde marzo en las zonas meridionales y de abril a mayo en las septentrionales; de finales de marzo a principios de julio según Delacour | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán venerado | En el bosque de Tuoda, de mediados de abril a mediados de julio | (del Hoyo et al., 1994; Madge y McGowan, 2002) |
| Faisán común | Muy variable: de finales de febrero en Jiangsu, abril en Turkmenistán y mayo–junio en Amurlandia; de principios o mediados de marzo hasta junio en la mayor parte de su área, con puestas de reposición hasta agosto | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán verde | Hacia mediados de marzo en el sur de Kyushu y en abril–mayo en Honshu; reposiciones de finales de junio a agosto | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán dorado | Abril–mayo según Beebe y Johnsgard; marzo–junio según los autores chinos que recogen Yang y colaboradores | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán Lady Amherst | Desde mediados de abril (territorios desde mediados de marzo); abril–junio según Johnsgard | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán pavo gris | Marzo–junio, sobre todo abril–mayo | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán pavo de Germain | Febrero–abril al menos; casi todo el año según Delacour | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán pavo de Rothschild | Desde febrero, quizá antes (una hembra sobre huevos en enero en Malasia); depende del tiempo | (Madge y McGowan, 2002) |
| Faisán pavo malayo | Incierta; cuatro nidos conocidos, en marzo, abril y agosto, probablemente ligada al alimento | (del Hoyo et al., 1994; Madge y McGowan, 2002) |
| Argus de Rheinard y gran argus | Rheinard: se cree que empieza en marzo. Gran argus: huevos hallados de principios de marzo a principios de julio en la Malasia peninsular, y a finales de julio en Borneo | (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986) |
| Pavo real azul | Ligada a la lluvia: enero–abril en el sur de la India y Sri Lanka; octubre–diciembre en Injar (Tamil Nadu); desde mediados de junio, con el monzón, al pie del Himalaya (junio–agosto en el área de Sharma); junio–septiembre en el norte de la India según la ficha | (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo real verde | Enero–abril en el noreste de la India (y julio–septiembre); abril–mayo en Bangladés; noviembre–mayo en la península malaya; agosto–octubre en Java | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Pavo del Congo | Sin época conocida; quizá en cualquier momento, según las lluvias locales; aves jóvenes encontradas en enero–febrero a 300 km al sur del ecuador | (del Hoyo et al., 1994; Fichas de la web, 2026) |
Fechas de puesta o de nidos con huevos, en aves silvestres, salvo que se indique otra cosa. Madge y McGowan (2002) y HBW (1994) no siempre separan los datos de campo de los de cautividad.
La cautividad y el hemisferio sur
Howman (1993) da, para el Reino Unido, el centro de Europa, el sur de Canadá y el norte de Estados Unidos, el comienzo de la puesta de cada especie en cautividad: principios de marzo para el faisán común y el gallo rojo; mediados de marzo para el plateado, el de Swinhoe y el de Elliot; fines de marzo para el dorado y el Mikado; abril para el koklas, el kalij, los monales y los tragopanes; fines de abril para los faisanes orejudos marrón y azul; mayo para el faisán cola rosa; y enero o febrero para el faisán pavo de cola bronceada y el de Salvadori (Howman, 1993). El criadero Chintaguay (Chile, 2005) reproduce la misma secuencia desplazada seis meses (por ejemplo, principios de septiembre para el gallo rojo y el faisán común, mediados de octubre para el kalij y el cheer) y advierte de que la fecha de puesta puede variar unos días con la latitud del criadero porque depende de las horas de luz (del Campo, 2006). Esos calendarios son de cautividad: los de las aves silvestres (tabla anterior) son, en general, algo más tardíos.
El nido
Dónde ponen, qué construyen y con qué material: del simple hueco en el suelo al nido viejo de córvido, a 13 metros de altura.
Beebe veía en el nido de los faisanes un asunto de interés evolutivo: los galliformes del Viejo Mundo no suelen construir nido, y los tragopanes, los más arborícolas, se parecen en eso a los crácidos de América del Sur (Beebe, 1918). Las fuentes modernas confirman la regla: la inmensa mayoría de los faisanes pone en el suelo, en un hueco apenas acondicionado, y solo los tragopanes, y de forma ocasional algunas especies más, usan sitios elevados (del Hoyo et al., 1994; Johnsgard, 1986).
Nidos en el suelo: un hueco bajo cobertura
El Handbook of the Birds of the World resume que todos los nidos de fásidos conocidos están en el suelo, con la excepción de los tragopanes (en tocones, árboles o arbustos hasta unos diez metros de altura) y de un nido de francolín de Nahan en un hueco de árbol (del Hoyo et al., 1994). En terreno abierto la mayoría se halla al pie de una mata de hierba o de un arbusto, o junto a una roca; en el bosque, a la base de algún rasgo prominente de la vegetación, como las raíces tabulares de los grandes árboles (del Hoyo et al., 1994).
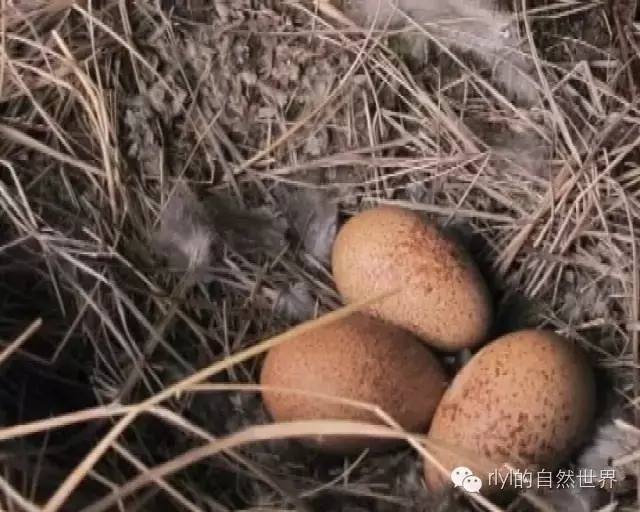
Lo que se llama «nido» es casi siempre un rascado o una depresión poco profunda, a veces sin más forro que lo que había en el lugar, a veces con hierba seca, hojas, ramitas, musgo y plumas del pecho de la hembra. El grado de forrado varía dentro de una misma especie, probablemente según las condiciones locales y las tendencias de cada ave (del Hoyo et al., 1994). Algunos casos concretos:
- Faisán ensangrentado
- Depresión forrada de tallos de hierba seca, a veces con musgo, acículas y plumas, bajo montones de paja, entre matorrales o junto a la base de los árboles; cinco nidos hallados a 3.600–3.650 m y uno a 4.000 m; un nido de la forma kuseri, bajo una mata de bambú todavía rodeada de nieve, y otro, en Bután, en un talud bajo un arbusto (Fichas de la web, 2026; Johnsgard, 1986).
- Koklas
- Un rascado en el suelo bajo una cubierta densa, forrado en parte con ramitas y hojas, casi siempre bajo arbustos espesos de hoja perenne en laderas de bosque de coníferas, a veces escondido entre helechos o zarzas, o encajado entre las raíces de un árbol; Beebe vio que eran depresiones hechas por el peso del ave, no huecos excavados, y en uno el hueco era tan somero que un huevo rodó un pie y su embrión murió (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002).
- Monal del Himalaya
- Un rascado en la hierba, a menudo al abrigo de una roca o de un árbol caído, en una ladera bastante empinada y casi siempre sin forro; Beebe halló tres nidos en el Himalaya occidental, cada uno con media docena o más de plumas blandas del pecho de la hembra; uno medía 39 cm de ancho y 3 cm de profundidad; nidos registrados entre 2.100 y 4.500 m (Fichas de la web, 2026; Madge y McGowan, 2002).
- Gallos
- Hueco poco profundo en bosque secundario denso, bambú o matorral, bajo un arbusto o dentro de una mata de bambú, forrado de hierba seca y hojas (gallo rojo); en pequeños huecos a la sombra de un arbusto o de bambú, y rara vez sobre un tocón (gallo de Sonnerat); en un hoyo del suelo entre vegetación densa, a veces sobre un helecho arborescente (gallo verde) (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986).
- Cheer (faisán Wallich)
- En laderas empinadas con encinar o pinar abierto, al pie de un peñasco o de un risco casi vertical, bien escondido en hierba, matorral o helechos, sin llegar a hacer un verdadero rascado (del Hoyo et al., 1994; Johnsgard, 1986).
- Faisán común
- En el suelo, entre hierba, maleza o arbustos, en depresiones de 1–8 cm de profundidad; el cuenco medio mide unos 18 cm de diámetro y 7 cm de profundidad, con un forro de hierbas más finas, plumas y plumón; la hembra no puede acarrear material y solo recoge el que alcanza lanzándolo hacia su cuerpo (BOW, 2022 (faisán común); Johnsgard, 1986). Beebe describió los nidos del Yangtsé sobre lechos de agujas de pino, sin material añadido (Beebe, 1922 (vol. III); Fichas de la web, 2026).
- Faisán de Lady Amherst
- En seis nidos seguidos en Yunnan (Yang y colaboradores), todos en el suelo, en una depresión poco profunda, forrada con pocas hojas secas y algunas plumas de la hembra, bajo ramas secas o en matorral denso y con una sola entrada; los cinco nidos medidos tenían, de media, 9,2 cm de altura, 7,5 cm de profundidad y unos 25 × 29 cm de diámetro exterior (Fichas de la web, 2026; Yang et al., 1992).
- Argus y pavos reales
- Gran argus: Beebe vio un nido recién eclosionado, de la forma malaya, a unos 2.000 pies (según Johnsgard) en una ladera de palmeras y bambúes, y Madge y McGowan citan un nido silvestre que era un rascado entre contrafuertes forrado de tallos de hierba; pavo real azul: depresión somera de unos 35 × 25 × 6 cm, a veces rascada por la hembra, oculta en arbustos espinosos (Lantana, Zizyphus) o hierba alta; pavo real verde: en el suelo en sitios protegidos pero con buena visibilidad (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002).
Nidos en árboles y en nidos de otras aves
Los tragopanes son el caso extremo. Del tragopán de Temminck, HBW cuenta ocho nidos confirmados, todos en árboles, entre 0,5 y 8 m del suelo, de hojas secas y ramas y forrados de plumas, mientras que Beebe solo conocía un nido silvestre, en el suelo, con seis huevos (del Hoyo et al., 1994; Fichas de la web, 2026; Madge y McGowan, 2002). El del satyr, descrito por Baker, era una maraña de ramas viejas y podridas a unos 20 pies (unos 6 m) de altura, en un bosque de rododendros y robles, que parecía un montón de palos hallado y aprovechado; otro nido, en hierba larga a 10 m del borde del bosque, a 3.160 m (del Hoyo et al., 1994; Johnsgard, 1986). Del occidental se conocen nidos a unos 3 m de altura en el hueco que dejó una rama arrancada en un cerezo silvestre, y a unos 13 m en un viejo nido de córvido al que la hembra aportó un forro fresco de ramitas de picea, hojas de roble y hierbas, además de nidos en el suelo (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002). En el de Blyth ningún naturalista ha visto el nido, pero los nagas dicen que está siempre en árboles, tocones o arbustos pequeños, entre 2 y 6 m del suelo (de 6 o 7 a 20 pies según Baker), hecho de palos gruesos y forrado de ramitas y a veces de hierba (del Hoyo et al., 1994; Johnsgard, 1986). Del de Cabot, de 15 nidos conocidos, 13 estaban a menos de 20 m del borde del bosque, 10 de ellos en Pinus taiwanensis y cinco en árboles de hoja ancha, y uno ocupaba una vieja ardillera (del Hoyo et al., 1994; Madge y McGowan, 2002).
Johnsgard, siguiendo a Delacour, señala que los tragopanes pueden aprovechar nidos viejos de cuervos y otras aves, aunque las hembras también construyen y forran bastante (Johnsgard, 1986). Beebe vio en ello el primer paso hacia la adquisición del instinto de construir nido, a partir de la adopción de nidos hechos por otras aves y por mamíferos arborícolas con un ligero forro de hojas y ramitas (Beebe, 1918; Fichas de la web, 2026). Para el tragopán de Blyth añadió una razón ecológica: de todos los tragopanes es el que más motivos tiene para anidar en alto, porque así evita no solo a los depredadores del suelo, sino también las inundaciones de la estación de lluvias, que barren la vegetación baja (Beebe, 1918; Fichas de la web, 2026).
Fuera de los tragopanes, hay casos de nidos elevados dispersos por la familia:
- Gallo de Lafayette
- Normalmente en el suelo (entre arbustos, bajo troncos, entre raíces), pero también en tocones o ramas hasta 4 m, en nidos viejos de ardilla y en uno de córvido a unos 10 m; Beebe se preguntaba cómo bajarían los pollos de un nido a 30 pies (unos 9 m) (Beebe, 1921; del Hoyo et al., 1994; Madge y McGowan, 2002).
- Gallo de Sonnerat
- Beebe cita numerosos casos de huevos puestos sobre troncos o tocones secos y podridos, a entre 60 cm y 1,2 m, una costumbre que le pareció creciente (Beebe, 1921; Fichas de la web, 2026).
- Faisán Mikado
- Un empleado forestal de Taiwán dijo a Wayre que había visto tres o cuatro nidos, todos hechos de tallos de bambú sobre el tronco o las ramas de un árbol caído a unos 3 o 4 pies (aprox. 1 m) del suelo; dos hembras cautivas a las que Wayre ofreció cajas en el suelo y elevadas eligieron las elevadas, y Johnsgard sugiere que en una zona de lluvias intensas un nido elevado puede ser una ventaja frente a las inundaciones (Johnsgard, 1986; Madge y McGowan, 2002).
- Faisán común y pavo real azul
- El faisán común usa algunas veces pilas de paja o viejos nidos de otras aves o de ardillas (BOW, 2022 (faisán común); Johnsgard, 1986); el pavo real azul, donde hay riesgo de inundación, se sirve de la horcadura de una higuera (Johnsgard, 1986).
- Monal de Sclater
- En un estudio de campo en Yunnan, los nidos estaban en plataformas hundidas de acantilados orientados al sur, a una altura media de unos 7 m, de 68–76 cm de largo; se reutilizaban de un año a otro, lo que los autores interpretan como señal de que los lugares aptos son escasos, y atribuyen la preferencia por repisas al sur a una menor depredación y a un mejor desarrollo de los embriones (Fichas de la web, 2026).
Cuánto material y de qué clase
El «nido» más trabajado es el de los tragopanes y el de los gallos de la India; los demás son poco más que una depresión en la que el peso del ave aprieta lo que hay. Algunas dimensiones y detalles registrados: el nido del faisán de Elliot, de 24 cm de largo por 19 de ancho (en el oeste de Zhejiang); el del faisán Hume, de entre 25 y 30 cm de diámetro, de hojas secas, ramitas de Pinus yunnanensis, lianas y plumas del cuerpo de la hembra; el del faisán de Reeves, un cuenco somero forrado de acículas de pino, hojas y hierbas (del Hoyo et al., 1994). En el faisán cola rosa malayo, una hembra de aviario construyó el nido de la manera típica de los galliformes, lanzando el material hacia los lados mientras el macho, aunque se acercaba, nunca colaboró (Johnsgard, 1986). El gran argus y el pavo del Congo no construyen propiamente nada: el segundo pone los huevos sobre una plataforma ligeramente cóncava en una rama grande, preferiblemente a menos de 1,5 m, o en el suelo (Fichas de la web, 2026; Johnsgard, 1986).
La temperatura del nido se ha medido en pocos casos: en Utah, en junio, la media en el cuenco de un nido de faisán común fue de 29,6 °C (BOW, 2022 (faisán común)). Hanson (1970, en Johnsgard) pensaba que la densidad y la altura de la vegetación influyen en la temperatura y la humedad del nido y en su visibilidad para los depredadores (Johnsgard, 1986).
Cómo elige el sitio el faisán común
Es la especie mejor estudiada, sobre todo en Norteamérica. Según la revisión de Johnsgard, los rasgos físicos del sitio (la densidad y la altura de la vegetación que cubre el nido) parecen más importantes que el tamaño del hábitat o que la distancia al borde: Hamerstrom (1936) halló que las hembras suelen colocar el nido con cobertura parcial o total desde arriba, y la tasa de eclosión de los nidos completamente tapados fue algo mayor; la altura media de las plantas junto a los nidos varió según los años entre 9,8 y 26,8 pulgadas y la penetración de la luz, entre el 9 y el 30 % (Johnsgard, 1986). Los estudios de nidos en Wisconsin (Gates y Hale, 1975) hallaron las mayores densidades en franjas anchas y densas de cobertura, y el mayor éxito en humedales permanentes; los bloques de vegetación se prefieren a las franjas, y a medida que avanza la temporada las hembras pasan de los humedales a los campos de heno y de cereales, donde la vegetación crece nueva (Johnsgard, 1986). En una síntesis de 12 estudios norteamericanos (Olsen, 1977, en Johnsgard), el 45,6 % de los nidos se hallaba en campos de heno, el 20,3 % en franjas de cobertura lineal (bordes de caminos y cercas) y el 13,7 % en cereales pequeños; el éxito de eclosión fue mayor en los humedales (32,9 %) y en los cereales (38,5 %) que en los campos de heno (20,9 %) (Johnsgard, 1986). En Gran Bretaña prefiere el bosque y el matorral al comienzo de la cría y pasa a los campos de cereal más avanzada la temporada (BOW, 2022 (faisán común)). En las hembras radiomarcadas, el nido suele quedar a menos de 1 km de la zona de invernada y hacia los límites del territorio de los machos asociados, y no se reutilizan nidos de un año a otro (BOW, 2022 (faisán común); Johnsgard, 1986).
| Grupo o género | Dónde | Construcción y material | Fuente |
|---|---|---|---|
| Ithaginis (ensangrentado) | Suelo, bajo arbusto, bambú, roca o paja; a 3.600–4.000 m | Depresión forrada de hierba seca, a veces musgo, acículas y plumas | (Fichas de la web, 2026; Johnsgard, 1986) |
| Tragopan | Árboles, tocones, arbustos y nidos viejos de córvidos y ardillas, de 0,5 a 13 m; algunos en el suelo | Palos y ramitas, hojas secas, plumas; casi siempre reaprovechan una estructura previa | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pucrasia (koklas) | Suelo, bajo arbustos espesos de bosque de coníferas, a veces entre raíces | Depresión hecha por el peso del ave; forro de hierba, hojas y musgo del lugar | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Lophophorus (monales) | Suelo, bajo roca, arbusto o árbol caído, en ladera; Sclater: repisas de acantilado | Rascado a menudo sin forro, con plumas del pecho; Sclater: nidos de 68–76 cm que se reutilizan | (Fichas de la web, 2026; Madge y McGowan, 2002) |
| Gallus (gallos) | Suelo bajo arbusto o bambú; a veces en tocón, nido de ardilla o de córvido, o helecho arborescente | Hueco con hierba seca y hojas; el gallo de Lafayette, a veces en nidos elevados | (Beebe, 1921; del Hoyo et al., 1994; Johnsgard, 1986) |
| Crossoptilon (orejudos) | Suelo en bosque de pino, alerce, abedul o bajo árbol caído | Depresión somera; un nido de orejudo del Tíbet, de corteza y pulpa forrada de musgo | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Catreus (cheer) | Suelo, al pie de roca o risco en ladera empinada | Sin rascado propiamente dicho; los huevos reposan sobre hierba | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Lophura | Suelo bajo arbusto o roca, entre raíces tabulares, en hueco de árbol; algún nido elevado (Swinhoe, 5 m) | Hueco con poco forro; los firebacks reúnen hojas, bambú y ramitas | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Syrmaticus | Suelo, bajo árbol caído o hierba; Mikado: sobre troncos caídos a 1 m | Hojas secas y acículas con plumas (Elliot, Hume); Mikado: tallos de bambú | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Phasianus | Suelo en hierba o maleza; rara vez pajares o nidos viejos | Cuenco de 18 × 7 cm; la hembra no acarrea material | (BOW, 2022 (faisán común); Johnsgard, 1986) |
| Chrysolophus | Suelo bajo arbustos, matorral o ramas secas | Depresión somera forrada con pocas hojas y plumas | (del Hoyo et al., 1994; Fichas de la web, 2026; Yang et al., 1992) |
| Polyplectron (pavo-faisanes) | Suelo: entre raíces, en bambúes o arbustos; a veces sobre un termitero | Rascado ligero o huevo directo sobre hojarasca | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Rheinardia y Argusianus | Argus: entre raíces tabulares; Rheinard: ningún nido silvestre conocido | Depresión forrada de tallos de hierba | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo y Afropavo | Pavos reales: suelo bajo arbustos espinosos o en hierba; Congo: probablemente raíces tabulares, árboles caídos o plataformas en árboles | Depresión somera, a veces con palos y hierba; el pavo del Congo no hace nido | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
Resumen de las descripciones de las fuentes. Muchos de los datos proceden de uno o dos nidos y de aves cautivas.
El huevo: forma, tamaño, peso y color
Desde el huevo de 29 g del gallo rojo hasta el de 115 g del pavo real verde, liso o moteado, blanco, crema, rosado, oliva o pardo: lo que dicen las fuentes y dónde discrepan.
Los huevos de los faisanes son ovales, de cáscara lisa y casi siempre con algo de brillo, y su tamaño sigue de cerca el de la hembra: de unos 45 × 34 mm en los gallos y en los faisanes de cola larga a unos 70 × 52 mm en los pavos reales (Johnsgard, 1986). Lo que más varía es el color. Pasa del blanco puro y el crema sin manchas de los gallos, del dorado, de Lady Amherst y de muchos orejudos a los fondos rosados o ante densamente moteados de los tragopanes, los monales, el koklas y el ensangrentado, y al oliva uniforme del faisán común (Johnsgard, 1986; Madge y McGowan, 2002).
Las medidas de la tabla son las que da Johnsgard (1986) en el apartado de medidas de cada especie, que en su mayoría vienen de Delacour, de Baker, de Beebe y de registros de zoos; los pesos son estimas de peso fresco que él calculó a partir de las dimensiones, salvo cuando dice lo contrario. El color procede de Madge y McGowan (2002), de las descripciones de Beebe que recogen las fichas y, cuando se indica, de los criadores. Las fuentes no siempre coinciden en las dimensiones: Beebe, Delacour y Johnsgard dan rangos o medias algo distintos para una misma especie, y las fichas de la web los recogen uno por uno (Fichas de la web, 2026; Johnsgard, 1986).
| Especie | Medias (mm) | Peso fresco estimado (g) | Color y marcas | Fuente |
|---|---|---|---|---|
| Faisán ensangrentado | 48 × 33 | 28,8 | Rosado a pardo rosáceo con marcas rojizas y pardo oscuras; forma alargada, de aspecto de limícola (subespecie geoffroyi); blanco cremoso con manchas negruzcas en berezowskii | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán occidental | 63 × 42 | 61,3 | Pardo rojizo apagado con motas de pardo oscuro; ovalado alargado | (Fichas de la web, 2026; Johnsgard, 1986) |
| Tragopán satyr | 65 × 42 | 63,3 | Ante rojizo con puntos y manchas pardo rojizas más densas en el extremo grueso o en toda la cáscara | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Temminck | 54 × 40 | 47,7 | Ante con moteado pardo, más pequeño que el de otros tragopanes salvo el de Cabot | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Blyth | 58,5 × 44 | 62 | Ante pálido, finamente moteado de pardo | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Cabot | 50 × 40 | 44,2 | Ante o crema, sin brillo, con pecas pardas o rojizas que a veces confluyen; ovalado corto y ancho | (Fichas de la web, 2026; Johnsgard, 1986) |
| Koklas | 51 × 37,5 | 40 | De amarillento pálido a ante intenso, siempre con marcas pardo rojizas | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal del Himalaya | 63,5 × 44,9 | 70,7 | Amarillo pálido a ante rojizo con marcas pardo rojizas; semejante al del pavo salvaje norteamericano | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal de Sclater | 63,2 × 45,4 | 70,5 | Crema con finas manchas pardo rojizas; en un estudio de campo, 85,8 g de media | (Fichas de la web, 2026; Johnsgard, 1986) |
| Monal chino | 71,2 × 50,4 (cinco huevos de una hembra cautiva); 73,7 × 51 (tres huevos, Cheng y colaboradores) | 99,4 | No confirmado: las fuentes difieren (véase la nota) | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo rojo | 45,3 × 34,4 | 29,6 | De blanco a ante pálido o pardo rojizo pálido, lisos; como un huevo de gallina en miniatura | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo de Sonnerat | 46,3 × 36,5 | 33,4 | Blanco, rosado o ante, normalmente sin manchas; muy variable de forma y color | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo de Lafayette | 46,3 × 34,5 | 30,4 | Crema pálido con finas manchas pardas y púrpura; en otras descripciones, lisos | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo verde | 44,5 × 34,5 | 29,2 | Blanco ante, sin manchas | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Orejudo blanco | 60 × 42 | 58,4 | De color piedra pálido a ante | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Orejudo azul | 59 × 40 | 52,1 (31 huevos frescos medidos por Rimlinger: 63 de media) | Sin descripción en Madge y McGowan | (Johnsgard, 1986) |
| Orejudo marrón | 53 × 39 | 44,5 (58 huevos frescos: 60 de media) | Verde piedra pálido | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Orejudo del Tíbet | — | — | Gris verdoso | (Madge y McGowan, 2002) |
| Faisán Wallich (cheer) | 53,4 × 49,3 (cifra tal como la da Johnsgard) | 71,6 | Amarillo grisáceo muy pálido, a veces con pecas rojizas hacia el extremo grueso; en algunas puestas, moteados por toda la cáscara | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán kalij | — | 37,4 (subespecie melanota) | De blanco cremoso a ante rojizo, como un huevo de gallina | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán plateado | 51 × 39 (nycthemera) | 42,8 | Ante rosado pálido a oscuro | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Edwards | 45 × 36 | 32,2 | Parecidos a los del faisán imperial, pero más pequeños | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán imperial | 53 × 40 | 46,8 | De crema a ante rosado, con pequeños hoyuelos blancos en la cáscara | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Swinhoe | 51 × 38 | 40,6 | De rojizo a ante cremoso | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Prelado | 48 × 38 | 38,2 | Ante rosado pálido; bastante redondeado | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán cola rosa malayo | 47,8 × 35,5 | 33,2 | Rosado o blanco ante | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán noble | 54 × 40 | 47,6 | De blanco cremoso a ante cremoso; relativamente redondos | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Bulwer | 50,7 × 40,3 | 45,3 | Rosa crema pálido | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Elliot | 46 × 34 | 30,2 | De crema a blanco rosado | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Hume | 48,7 × 35 (46 × 34 en burmanicus) | 32,9 | — | (Johnsgard, 1986) |
| Faisán Mikado | 55 × 39 | 46,2 | Blanco cremoso | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán cobrizo | 47,7 × 34,9 (scintillans) | 32 | Crema, relativamente pequeños | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán venerado | 46 × 37 | 34,8 | De oliva pardusco a oliva crema | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán común | 45 × 36 | 32,2 | Pardo oliváceo uniforme, a veces verdoso, azulado o gris oliva; liso y brillante | (BOW, 2022 (faisán común); Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán verde | 43,3 × 34 | 27,8 | Pequeños, sin manchas, gris oliva | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán dorado | 44 × 34 | 28,1 | Ante pálido a crema, sin manchas; liso y bastante brillante, oval ancho | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán Lady Amherst | 46 × 35 | 31,1 | Beige a crema, sin manchas (blancos según la ficha original) | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán pavo de Sumatra | 49 × 36 | 35 | Blanco ante (buffy-white en Madge y McGowan) | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán pavo de Rothschild | 53,2 × 37,0 | 40,2 | Blanco ante, bastante alargados | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán pavo gris | 48 × 37,5 (bakeri) | 37,3 | De crema pálido a ante chocolate rico, con motas blancas | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán pavo malayo | 46 × 37 | 39–42 (Bruning) | Ante con hoyuelos blancos | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán pavo de Palawan | 45 × 36 | — | De rosa a blanco ante | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Argus de Rheinard | 64,5 × 46 | 75,3 | Rosa ante intenso, con finas motas pardo purpúreas | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gran argus | 68 × 44,5 | 74,3 | Ante rojizo pálido con pecas pardas | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo real azul | 69,7 × 52,1 | 103,5 | Crema pálido o café con leche a beige; rara vez con manchas rojizas | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo real verde | 72,7 × 53,7 | 114,9 | Crema pálido, entre café y beige; algo mayores que los del pavo real azul | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo del Congo | 59 × 47 | 71,9 | Crema oscuro, rufo ante, sin manchas | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
Medidas medias y pesos frescos estimados de Johnsgard (1986); color de Madge y McGowan (2002) y de las fichas. Un guion indica que la fuente no da el dato. En la fila del faisán Prelado, Johnsgard lo llama «Siamese fireback»; en la del faisán noble, «crested fireback».
Forma, superficie y color
Las diferencias de forma son pequeñas pero constantes. Los huevos de los tragopanes son ovales y relativamente redondeados y poco brillantes (el de Temminck más corto que el de los otros; el de Cabot, todavía más corto y ancho), mientras que los de los monales son ovalados anchos y de cáscara firme y brillo escaso; el del tragopán occidental es alargado y comprimido hacia el extremo agudo, más esbelto que el del monal (Fichas de la web, 2026; Madge y McGowan, 2002). Los huevos del faisán noble y del prelado son relativamente redondos y los del faisán pavo de Rothschild, alargados, y en los faisanes pavo malayo e imperial la cáscara muestra unos hoyuelos o poros blancos muy visibles (Madge y McGowan, 2002). La del pavo real está finamente picada (Fichas de la web, 2026).
- Rosados y ante con motas
- Tragopanes, monales, koklas y ensangrentado. Beebe, que describió los huevos del ensangrentado de Sichuan como alargados, lisos y casi brillantes, de fondo ante rojizo y manchas irregulares, señaló que por su forma y su pigmentación se parecen más a los de limícolas y láridos que a los de otros faisanes, y entre los galliformes, a los de lagópodos y urogallos; los del monal se parecen tanto a los del pavo salvaje norteamericano que algunos son casi indistinguibles (Fichas de la web, 2026). El patrón de marcas es muy variable: puntos finos y apretados, manchas de unos 2 mm o grandes manchas irregulares más densas en el centro o en uno de los extremos (Fichas de la web, 2026).
- Blancos y crema, lisos o casi
- Gallos (el de Lafayette, con finas motas en algunas descripciones), orejudos, faisán dorado y de Lady Amherst, Mikado, Elliot, pavo del Congo y la mayoría de los faisanes pavo (el gris, con un punteado blanco). Beebe observó que en el cheer los huevos de fondo piedra pálido a crema tienen pocas o muchas pecas pardo rojizas, como los de las perdices rojas (Alectoris), y por eso el cheer queda aislado en este rasgo del cálido tono de café con leche de los monales, del koklas y del kalij (Fichas de la web, 2026).
- Oliva y pardo oliváceo
- Faisán común, faisán verde y faisán venerado. En el faisán común el huevo es de un pardo oliváceo uniforme, con el tinte variable entre los huevos de una puesta; los tres primeros y los tres últimos de las hembras de un año pueden tener la cáscara más clara que los intermedios (BOW, 2022 (faisán común)).
- Crema, ante y café con leche
- Argus, pavos reales y kalij. En el argus de Rheinard el huevo es rosa ante intenso, más o menos finamente moteado de pardo purpúreo; en el gran argus, ante rojizo pálido con pecas pardas; en los pavos reales, crema pálido a café con leche, rara vez con manchas (Beebe contó uno de cada cinco con ellas) (Fichas de la web, 2026; Madge y McGowan, 2002).


Variación dentro de la especie y entre fuentes
La variación individual es grande. Los huevos del tragopán satyr son «bastante variables» de color según Johnsgard, y Beebe vio uno, puesto en agosto por una hembra cautiva, con tal exceso de pigmento que las manchas rojizas casi eran confluentes (Fichas de la web, 2026; Johnsgard, 1986). Los del gallo de Sonnerat varían en forma, color y tamaño desde un óvalo largo de cáscara crema pálida, como la de una gallina doméstica, a un óvalo ancho de ante intenso, de textura gruesa y con poros muy visibles (Fichas de la web, 2026); Beebe describió en el gallo de Lafayette huevos desde blanco liso hasta ante o café con leche con o sin moteado pardo rojizo, y un nido de cinco huevos con una pigmentación peculiar, de una sola hembra (Beebe, 1921; Fichas de la web, 2026). En el monal del Himalaya hay huevos casi sin marcas, con numerosas pequeñas motas como poros, con manchas de unos 2 mm, o con grandes manchas más densas en el centro o en un extremo (Fichas de la web, 2026). En el koklas, de los puntos finos y apretados a unas pocas manchas grandes (Fichas de la web, 2026).
Cuánto pesa el huevo en relación con la hembra
Lack (1968) observó que los fásidos que ponen solo de dos a cuatro huevos tienden a poner huevos proporcionalmente mayores que la media de la familia, y los que ponen diez o más, huevos proporcionalmente menores; y que en dos géneros, Tragopan y Argusianus, el huevo proporcionalmente grande va unido a polluelos especialmente precoces, que a Johnsgard le parece de importancia ecológica en algunos hábitats (Johnsgard, 1986). Johnsgard recalculó el peso relativo del huevo y de la puesta completa respecto a la hembra adulta en las especies para las que halló datos (adaptado de Ridley, en prensa). El huevo pesa entre el 3 y el 6 % de la hembra en la mayoría de los casos, y en los faisanes pavo, hasta el 7,6–10 %; la puesta completa, de alrededor del 15 al 50 % del peso de la hembra, y la del cheer, según esa tabla, del 63 % (Johnsgard, 1986). HBW cita esa misma cifra como supuesta para el cheer (del Hoyo et al., 1994).
| Especie | Huevo (g) | Hembra (g) | Huevo, % del peso de la hembra | Puesta, % del peso de la hembra |
|---|---|---|---|---|
| Orejudo marrón | 44,5 | 1.650 | 2,6 | 16,9 |
| Monal del Himalaya | 70,7 | 1.950 | 3,6 | 21,6 |
| Gallo de Ceilán (Lafayette) | 30,4 | 550 | 5,5 | 16,5 |
| Faisán Mikado | 46,2 | 1.015 | 4,5 | 33,8 |
| Gallo rojo | 29,6 | 500 | 5,9 | 35,4 |
| Tragopán de Blyth | 62 | 1.250 | 5,0 | 15,0 |
| Tragopán occidental | 61,3 | 1.325 | 4,6 | 16,1 |
| Tragopán de Temminck | 47,7 | 1.035 | 4,6 | 18,4 |
| Gran argus | 74,3 | 1.600 | 4,6 | — |
| Faisán pavo de Germain | 30,4 | 400 | 7,6 | 15,2 |
| Faisán pavo gris | 37,3 | 480 | 7,8 | 15,6 |
| Faisán pavo de Palawan | — | 320 | 10,0 | 20,0 |
| Faisán de Lady Amherst | 31,1 | 700 | 4,4 | 39,6 |
| Faisán dorado | 28,1 | 600 | 4,7 | 42,3 |
| Faisán kalij (melanota) | 37,4 | 890 | 4,2 | 50,4 |
| Faisán Wallich (cheer) | 71,6 | 1.200 | 6,0 | 63,0 |
Johnsgard (1986, tabla 20), con pesos de huevo y de hembra estimados; la puesta se calcula con el punto medio de los intervalos de su tabla 21. Se omiten las filas cuyas cifras no se leen con claridad en el ejemplar consultado o no concuerdan con las de las fichas de especie de Johnsgard (como el faisán de Elliot, cuyo peso de huevo difiere entre la tabla y el texto).
Johnsgard no halló relaciones claras entre el sistema de apareamiento y la inversión de la hembra en huevos y puestas: las especies monógamas y las poligínicas de borde de bosque ponen huevos del 3 al 6 % del peso de la hembra y puestas del 15 al 50 %, y solo entre las especies de bosque poligínicas o promiscuas hay puestas pequeñas (con el faisán dorado y el de Lady Amherst como excepciones notables), huevos relativamente grandes (en especial en Polyplectron) y una inversión baja en la puesta completa, un conjunto que relaciona con la ventaja de producir pocos descendientes bastante precoces en un bosque con poco alimento para la hembra y para los pollos (Johnsgard, 1986).
La puesta: cuántos huevos, a qué ritmo y cuántas veces
De un solo huevo en el faisán pavo malayo a una docena o más en el faisán común: tamaño de puesta en libertad y en cautividad, intervalo entre huevos, reposiciones y puestas comunales.
El tamaño medio de puesta de los faisanes va de uno a doce huevos según la especie, en la comparación de Johnsgard entre los grupos de aves galliformes. Las puestas grandes son propias de las especies de campo abierto, de borde de bosque y comedoras de grano (Phasianus, Gallus), y las pequeñas, de hasta solo dos huevos, de las de bosque (Polyplectron, Argusianus) (Johnsgard, 1986). La explicación más repetida, que Johnsgard toma de Lack (1968), es la cantidad de alimento de que dispone la hembra en la época de puesta; y HBW añade que en la selva tropical, donde el alimento no puede preverse en el calendario, las puestas son menores que en los climas estacionales, en los que los pollos nacen cuando la comida es abundante (del Hoyo et al., 1994; Johnsgard, 1986).
Hay que tener presente que en cautividad, donde la hembra recibe alimento abundante y a menudo se le retiran los huevos a diario, las puestas y la producción por temporada son mucho mayores que en libertad; el propio criadero Chintaguay lo advierte al decir que en la naturaleza las hembras ponen e incuban entre 6 y 12 huevos por temporada (del Campo, 2006). Por eso la tabla separa las dos cosas.
| Especie | En libertad (según las fuentes) | En cautividad: Johnsgard (tabla 21) / Howman (1993) | Intervalo entre huevos y puestas por temporada | Fuente |
|---|---|---|---|---|
| Faisán ensangrentado | 2–7 (Madge y McGowan; HBW); nidos hallados con 2, 3, 4, 6 y 7 huevos | 5–12 / 5–15 | Intervalos de 2–3 días; dos hembras cautivas pusieron 15 huevos entre el 20 de abril y el 16 de mayo, a veces en el nido de la otra | (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán occidental | 2–6 en los nidos conocidos (HBW: 3–6) | 3–6 / 3–4 | Un huevo cada dos días (tragopanes, en cautividad) | (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986) |
| Tragopán satyr | 2–3; los nativos dicen que nunca más de cuatro | 2–4 / 2–4; 4–6 en otras descripciones de cautividad | Cada dos días; si se retiran, repone, hasta tres o cuatro veces por temporada | (Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Temminck | 3–5 (HBW, Madge y McGowan); un nido silvestre con 6 | 2–6 / 2–4 | Un día (Madge y McGowan) o dos (HBW, Delacour); 3–6 huevos en nidos de suelo y solo 1–2 en nidos elevados en siete casos de Beebe | (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Blyth | 2–5, a menudo 3–4 (informes locales) | 2–4 / 2–4; en un centro de cría, 25 hembras pusieron 76 huevos (3,1 por hembra) | — | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Tragopán de Cabot | 3–5 (rara vez 2 o 6); el único nido clásico, 4 huevos | 2–4 / 2–4 | Tres o cuatro puestas por temporada, 12–14 huevos en total (Sivelle) | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Koklas | 5–7 normal, 9 máximo registrado, 6 lo más frecuente | 5–7 / 9–12 | Días alternos; si se retiran, hasta 30 huevos por temporada | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal del Himalaya | 4–5 lo más habitual, 3 frecuente, a veces 2; el 8 es dudoso | 4–8 / 4–8 | Reposición si se retira o fracasa la primera puesta | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Monal de Sclater y chino | Sclater: 2–3 en cuatro nidos estudiados (media 2,75); chino: sin datos de campo | Chino: 3–5; cinco en San Diego | — | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo rojo | 5–6, a menudo 4, rara vez 9 | 4–8 / 8–10 | Una puesta al año; la reposición es de 3–4 huevos | (Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo de Sonnerat | 4–5 (3–5 según Madge y McGowan); 6–7 quizá de dos hembras | 4–8 / 4–8 | Aumenta de norte a sur (véase el texto) | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo de Lafayette | Normalmente 2, a veces 3, rara vez 4; las de hasta 8 serían puestas múltiples o completadas artificialmente | 2–4 / 2–4 | — | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Gallo verde | 3–4 probable; 6–12 según Beebe (excesivo, según Johnsgard) | 4–6 / 6–10 | Hasta unos 40 huevos por temporada en cautividad | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Orejudo blanco | Nidos con 9 y 4 huevos | 4–7 / 4–7; hasta 15 por pareja con retirada de huevos | Cada 2–3 días, rara vez 4 (Tierpark Berlín); la puesta dura unos dos meses | (del Hoyo et al., 1994; Howman, 1993; Johnsgard, 1986) |
| Orejudo azul | 6–12, típicamente 8 (Cheng); 5–14 (Felix) | 5–8 / 5–8; hasta 30 huevos por hembra y año | — | (del Hoyo et al., 1994; Howman, 1993; Johnsgard, 1986) |
| Orejudo marrón | 4–14, hasta 22; media 8,8; probable 5–8 | 5–8 / 5–8 | Días alternos; las puestas menores pueden ser de hembras de primer año o de reposición | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Wallich (cheer) | 9–10 lo habitual; 13–14 registrados | 9–12 / 9–12 | 15–25 huevos por temporada | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán kalij | 6–9 (5–10); 14–15 quizá de dos hembras | 9–15 / 9–15 | — | (del Hoyo et al., 1994; Howman, 1993; Johnsgard, 1986) |
| Faisán plateado | Media de 7, hasta 12 (Madge y McGowan; en el suroeste de China, hasta 12) | 4–6 / 4–6; 4–14, con hasta unos 24 por hembra y temporada (Cheng) | — | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Swinhoe | 3–8 en Taiwán (2–12 citados) | 6–12 / 6–12 | Las reposiciones explican los registros tardíos | (del Hoyo et al., 1994; Howman, 1993; Johnsgard, 1986) |
| Faisán de Edwards y imperial | Sin datos de campo | Edwards: 5–6 / 4–7; imperial: 5–7 | Edwards: segunda puesta diez días después de la primera (una hembra, 1925); cinco huevos en dos días alternos | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán de Salvadori | Un nido con 2 huevos | 2 / 2 | — | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Prelado, cola rosa y noble | Cola rosa: 3–6 (un nido con 5 en Selangor); prelado y noble: 4–8 (poco datos de campo) | Prelado 5–8; cola rosa 3–6; noble 4–8 | Cola rosa: seis huevos en 12 días en un aviario | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán Bulwer | Un huevo en el único nido conocido (Brunéi); 2 según Beebe (sin nido); 5 según Sivelle | 3–8 / 3–8 | Una hembra de Sivelle puso 18 huevos en 1976 | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán de Elliot | Típicamente 5–8 (HBW) | 6–8 / 6–8; media de 14,3 huevos por hembra y temporada en Ohio | Cada dos días; dos hembras de un mismo recinto pusieron 61 huevos | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán Hume | 6–10 (media de cinco nidos, 7,6) | 6 o más; menos en hembras de primer año | Cada dos días, hacia el atardecer | (del Hoyo et al., 1994; Johnsgard, 1986) |
| Faisán Mikado | Sin datos de campo | 5–10 / 5–10; normal, unos 5 | En cautividad, a menudo tres puestas entre finales de marzo y mediados de julio | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán cobrizo | — | 6–12 / 6–12 (7–13 en las puestas) | De 21 a 31 huevos al año entre los 3 y 6 años de edad | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán venerado | Un nido silvestre con 8; en Ohio, 6–14 (media 9,5) en diez nidos de hembras sueltas | 7–14 / 7–14; en un recinto, media de 4,4 por puesta, pero 118 huevos caídos (unos 11 por hembra) | — | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán común | 8–14 en el área nativa (1–28 registrados); 7–15 según HBW | 8–12 / 8–14 | Un huevo cada 1,3–1,4 días; reposición hasta tres veces (véase el texto) | (BOW, 2022 (faisán común); Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán verde | 6–12 (extremo 15); lo habitual, 7–9 | 8–12 / 8–14 | — | (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán dorado | En China, 6–8 (BOW); un nido hallado en un bambusal | 5–12 / 6–12 | Unas 24 h entre huevos; Gerrits: 10–12 por temporada en hembra joven y 30–40 en mayores de un año | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán Lady Amherst | 6–7 (cuatro nidos con 6 y uno con 7 en Yunnan); dos puestas silvestres de 4 y 7 | 6–12 / 6–12 (hembras de dos años o más) | Probablemente diaria | (del Hoyo et al., 1994; Fichas de la web, 2026; Johnsgard, 1986) |
| Faisanes pavo (Polyplectron) | Rothschild y gris: 2; pavo gris de la forma bakeri, 3–4 y alguna de 5–6; malayo: 1; Palawan: sin datos de campo | 1–2 (malayo y Borneo 1; resto 2) | Tres a seis puestas por temporada con unos 21 días entre ellas; 8–14 huevos por hembra y temporada en el gris; en el de Palawan, 4,7 de media | (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Argus de Rheinard y gran argus | 2 (ningún nido silvestre del Rheinard) | 2 / 2 | Dos días entre los dos huevos; 18–27 días entre puestas; una hembra del gran argus puso 30 huevos en 15 puestas en 12 meses | (Fichas de la web, 2026; Johnsgard, 1986) |
| Pavo real azul | 3–6 (hasta 8); 3–9 en 57 nidos, moda 6 (Sharma); media de 6,1 en zonas frondosas y 5,1 en áridas | 4–8 / 4–8 | — | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Pavo real verde | 3–6; en Java, 3–4 | 4–6 / 4–6; hasta 8 | — | (Fichas de la web, 2026; Johnsgard, 1986) |
| Pavo del Congo | 2–3 (cautividad, ningún nido silvestre descrito) | 2–3 / 3–4 | Cada tres días; media de 3,09 huevos por puesta y 2,2 puestas por pareja y año en Amberes (554 huevos en 179 puestas) | (Fichas de la web, 2026; Johnsgard, 1986) |
En libertad: Johnsgard (1986), Madge y McGowan (2002), HBW (1994) y las fichas. En cautividad: tabla 21 de Johnsgard (con datos adaptados de Delacour, 1977, y Howman, 1979) y la «Laying Chart» de Howman (1993), que se reproduce en el capítulo sobre desarrollo. Un guion indica que la fuente no da el dato. En cautividad, las cifras se obtienen casi siempre retirando los huevos.
Por qué varía el tamaño de la puesta
La relación con el hábitat es la más sólida. HBW señala que los gallofaisanes (Lophura) de selva tropical ponen menos huevos que los más septentrionales: cuatro o cinco el cola rosa; siete de media el plateado, que llega a doce en el suroeste de China, y de seis a nueve, o incluso quince, la subespecie occidental del kalij del Himalaya (del Hoyo et al., 1994). El faisán pavo malayo es, según HBW, el único fásido que se sabe que pone un solo huevo (del Hoyo et al., 1994).
Dentro de una misma especie se ha apuntado un gradiente con la latitud. Beebe señaló en el gallo de Sonnerat una gradación de norte a sur: nidadas de 3 huevos y nunca más de 4 en Kanara, de 6 o 7 al sur del monte Abu, y de 8, 9 o hasta 13 en los Nilgiris y más al sur, junto a aves del norte mayores y más pesadas que las del sur; Johnsgard, con datos de Baker y de Ali y Ripley, da en cambio puestas de no más de 4 o 5 (Fichas de la web, 2026; Johnsgard, 1986). En el pavo real azul, la puesta media fue de 6,1 huevos en zonas frondosas y de 5,1 en zonas áridas (Fichas de la web, 2026). En el faisán común, las medias regionales van de 8,8 (sur de Idaho, 25 nidos) a 13,0 en los primeros nidos de Nueva York (20 nidos); las de Suiza (236) e Inglaterra (210) son de 11,9 y 11,8, y la de 4.940 puestas de Norteamérica y Nueva Zelanda, de 10,6, con medias locales entre 8,6 y 12,6 (Fichas de la web, 2026; Johnsgard, 1986). Las fuentes consultadas casi no comparan la puesta entre altitudes dentro de una especie.
También depende del lugar donde se pone. Beebe, con tragopanes de Temminck cautivos, vio que las hembras con nido elevado ponían una o dos huevos, mientras que las mismas aves ponían de tres a seis en el suelo, y lo interpretó como una adaptación de la puesta a la pequeña plataforma de los nidos arbóreos; la disección de dos hembras muertas en plena temporada mostró varias yemas bien desarrolladas por delante de las puestas (Fichas de la web, 2026; Johnsgard, 1986). En el faisán común, la puesta disminuye con la estación: 12,5 huevos antes del 15 de mayo y 10,0 después en Wisconsin (574 puestas), 12,6 en los primeros nidos y 9,9 en las reposiciones en el norte de Iowa, y 13,0, 9,7 y 8,0 en los primeros, segundos y siguientes nidos de Nueva York; el descenso fue de 0,08 huevos por día en Iowa (BOW, 2022 (faisán común); Johnsgard, 1986).
El ritmo de puesta
El intervalo entre huevos es un rasgo constante de cada grupo: el faisán común pone algo menos de uno al día, con una media de 1,4 días para una puesta completa, y el dorado y, probablemente, el de Lady Amherst, uno diario; los tragopanes, el koklas, el orejudo marrón, el Hume y el de Elliot, uno cada dos días; el ensangrentado y el orejudo blanco, cada dos o tres días; y y los faisanes pavo (al menos el de Rothschild y el gris) y los argus, dos huevos separados por dos días; el pavo del Congo, uno cada tres según Johnsgard (de 1 a 3 días según la ficha original) (Fichas de la web, 2026; Johnsgard, 1986). En el faisán común, las hembras pasan una o dos horas en el nido al poner los dos primeros huevos y más tiempo cuanto más crece la nidada; los primeros huevos caen con frecuencia al azar fuera del nido y la hembra hace varios intentos falsos antes de poner (BOW, 2022 (faisán común)). En el Hume, la puesta ocurre hacia el atardecer, y en el cobrizo, a última hora de la tarde o por la noche (en cautividad) (Johnsgard, 1986). La incubación empieza, en la mayoría de las especies, con el último huevo o con el penúltimo, de modo que los pollos nacen casi a la vez (del Hoyo et al., 1994; Johnsgard, 1986); en un nido de faisán cola rosa de aviario, no empezó hasta dos días después del último (Johnsgard, 1986).
Puestas de reposición y número de puestas por temporada
En un número considerable de especies la hembra repone la puesta cuando pierde la primera (Johnsgard, 1986). En el faisán común el comportamiento está bien estudiado: según Seubert (1952), el 57 % de 132 hembras que habían sido molestadas o abandonaron el primer nido hicieron un segundo, y el 7,5 % de las perturbadas en el segundo hicieron un tercero; Dumke y Pils (1979) hallaron que el 69 % (32 de 47) de las hembras sin éxito renidificó una vez, el 41 % (al menos 11 de 27) una segunda y una de 11 una tercera, con una media de 1,8 nidos por hembra y un 75 % estimado de hembras que sacaron una nidada; y se conocen cuatro hembras que volvieron a anidar tras perder la nidada ya eclosionada (Johnsgard, 1986). BOW añade que una hembra puede iniciar hasta cinco nidos en una temporada; que, tras perder el nido, volvieron a anidar 4 de 74 hembras radiomarcadas (5,4 %) en Wisconsin y 3 de 12 en Nueva York; y que la distancia media entre nidos sucesivos en Wisconsin fue de 396 m (63–2.264 m), con un 79 % de cambios de tipo de cobertura; no hay pruebas, ni en Europa ni en Norteamérica, de que una hembra que ha criado con éxito una nidada intente otra, aunque en Nueva Zelanda se han citado dos nidadas criadas hasta el volantón (BOW, 2022 (faisán común)). Beebe, en cambio, escribe que en el este de Asia dos nidadas al año no son raras (Beebe, 1922 (vol. III)).
En el gallo rojo la hembra cría una sola vez al año, pero repone si los huevos se destruyen antes de eclosionar, con tres o cuatro huevos en el segundo intento (Johnsgard, 1986). Las diferencias de calendario de los gallos de Lafayette y de Sonnerat, según Beebe, se explican por nidos destruidos y vueltos a empezar más que por dobles puestas (Beebe, 1921). En el pavo real verde, Baker (1928) sospechó que en algunas zonas podrían criarse dos nidadas al año, algo sin probar (Johnsgard, 1986).
En los grupos de puesta pequeña, la repetición compensa. Los faisanes pavo (Palawan, de Germain, gris) ponen en cautividad de tres a seis puestas de uno o dos huevos por temporada, con unos 21 días entre una y otra (Flieg, 1973), y Beebe da un máximo de cuatro puestas, ocho huevos en total, para el de Germain y de ocho a catorce huevos por temporada para el gris; el malayo pone un huevo cada tres o cuatro semanas y puede criar hasta diez meses al año; el de cola bronceada repuso en menos de un mes y puso una tercera vez en la misma temporada (Fichas de la web, 2026; Johnsgard, 1986). El argus de Rheinard puso cuatro puestas de dos huevos en un año en Japón, con 20–27 días entre ellas (y 18 días en Francia); una hembra del gran argus puso 30 huevos en 15 puestas en 12 meses en el zoo de Washington, y otra, 17 en nueve puestas en San Diego en 1983 (Fichas de la web, 2026; Johnsgard, 1986). El tragopán de Cabot da tres o cuatro puestas por temporada (12–14 huevos) y el satyr, si se le retiran los huevos, repone hasta tres o cuatro veces (Johnsgard, 1986). En el pavo del Congo, algunas hembras llegaron a cinco o seis puestas en un año (Johnsgard, 1986).
En cautividad, con retirada de huevos, las cifras se disparan. Johnsgard cita hembras de faisán común que pusieron hasta 140 huevos, y señala que las hembras del faisán común han puesto más de 100 huevos al año y las gallinas domésticas, más de 300, de modo que el riesgo para la hembra de la retirada continuada es probablemente poco si la dieta es plenamente adecuada (Johnsgard, 1986). El faisán de Elliot puso una media de 14,3 huevos por temporada en Ohio y dos hembras de un mismo recinto, 61 (Johnsgard, 1986). Beebe hablaba, en la misma línea, de 30 a 45 huevos fértiles por temporada para dorados con libertad, mientras que una hembra silvestre de gallo rojo pone como máximo unos 40 o 50 huevos en toda su vida, frente a los 3.000 de una gallina de postura (Fichas de la web, 2026). El Chintaguay da, para cría con retirada de huevos, 40–80 huevos en el faisán común, 20–50 en el venerado, 20–30 en el dorado, 20–50 en el de Lady Amherst, 12–18 en el plateado y 10–18 en el de Swinhoe (del Campo, 2006). Esas cifras no deben leerse como las de aves silvestres.
Puestas comunales y huevos en nidos ajenos
Entre los faisanes no se ha descrito un verdadero parasitismo de puesta entre especies distintas (las fuentes consultadas no lo recogen), pero sí hay puestas depositadas por varias hembras en un mismo nido o huevos soltados al azar. Para el faisán común, Wagner y colaboradores (1965, citados por Johnsgard) sugieren que la incidencia del «nido basurero», donde varias hembras ponen y ninguna incuba, varía de un año a otro porque el comienzo de la puesta es bastante fijo mientras que el de la nidificación no lo es; en el estudio de Wisconsin que resume Johnsgard (Gates y Hale, 1975), los huevos puestos al azar, fuera de un nido, suponían el 3,3 % del total (Johnsgard, 1986). BOW considera que las puestas de más de 18 huevos del faisán común proceden probablemente de dos hembras (BOW, 2022 (faisán común)), y HBW señala que los extremos de la familia (18 huevos o más en la perdiz chukar, la perdiz griega, el francolín negro, el orejudo marrón y el faisán común) son situaciones inusuales en las que se sospecha que contribuyó más de una hembra (del Hoyo et al., 1994).
Algo parecido se sospecha en otras especies: las puestas de 14–15 huevos del kalij, de hasta 9 del gallo de Lafayette (y una nidada de siete pollos que podría ser el resultado de dos hembras), de 6–7 del gallo de Sonnerat y de hasta 10 del gris (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002); en el pavo real azul, BOW cita hasta 18 huevos de dos hembras en un nido (Fichas de la web, 2026); y en cautividad, dos hembras del ensangrentado ponían a veces en el nido de la otra, según Grahame (Johnsgard, 1986). En todos esos casos se trata de una sospecha basada en el tamaño de la puesta, no de una comprobación directa.
La incubación en libertad
Quién incuba, cuántas horas pasa la hembra sobre el nido, qué ocurre cuando se la molesta y lo poco que se sabe de las temperaturas del nido.
En todas las especies de las que hay noticia incuba solo la hembra (del Hoyo et al., 1994; Johnsgard, 1986). El macho puede permanecer cerca, vigilando, o desentenderse del todo; en la inmensa mayoría de los faisanes no calienta los huevos. Las excepciones son casos aislados: Tegetmeier citó un caso de incubación por un macho de faisán común; en cautividad, un jefe de cuidadores del zoo de Londres afirmó en 1869 que algún macho de tragopán compartía la incubación, algo que Delacour consideraba anómalo en ese grupo, y BOW recoge que en el de Temminck el macho incuba ocasionalmente en cautividad (BOW, 2022 (faisán común); Fichas de la web, 2026).
Cuánto dura la incubación en cada especie, cómo se forma el embrión y cómo es el polluelo recién nacido se trata en el capítulo sobre crecimiento y desarrollo, con la tabla comparada de periodos. Aquí se recoge solo lo que se ha observado en los nidos: cómo se comporta la hembra y qué le afecta.
Cuánto dura, en una frase
Los periodos conocidos van de 18 a 29 días. Johnsgard los resume así: los más largos, de los géneros Argusianus, Pavo, Lophophorus y Crossoptilon; los de menos de 23 días, de Pucrasia, Chrysolophus y Polyplectron (Johnsgard, 1986). El Handbook of the Birds of the World añade que en la mayoría de los fásidos dura de 18 a 25 días y que en el pavo real azul llega a 28–30 (del Hoyo et al., 1994). Los valores se refieren casi siempre a aves cautivas; los que se han medido en libertad son pocos. Para el faisán común, Johnsgard da 23–28 días en condiciones naturales, con una media de 23–23,5, y relaciona los periodos más largos con distintos grados de molestia a la hembra (Johnsgard, 1986). Para el gallo rojo se citan unos 20 días en condiciones naturales tropicales (Baker, 1930) y de 18 a 20 (Cheng y colaboradores) (Johnsgard, 1986); en el kalij, unos 20 días en las zonas cálidas y hasta 22 en las más altas y frías (del Hoyo et al., 1994; Johnsgard, 1986); en el monal de Sclater, un estudio de campo siguió un nido durante 32 días y otros durante 18–32 (BOW da 28 días para la especie) (Fichas de la web, 2026). La ficha del faisán ensangrentado recoge, de una de sus fuentes, unos 37 días en libertad, frente a 26–29 en cautividad; no hay otra fuente que lo confirme (Fichas de la web, 2026).
Cuántas horas pasa la hembra en el nido
La dedicación varía entre especies. Los datos más precisos son de unas pocas:
- Monal de Sclater
- En un estudio en Yunnan con registradores de temperatura y observación desde una tienda camuflada, la hembra pasó el 97,2 % del tiempo sobre los huevos (entre el 95,7 y el 98,4 % según el nido), en sesiones de unas 25,7 horas de media y con salidas de apenas 1,04 horas, aproximadamente una al día o cada dos días, para alimentarse. Los autores lo comparan con otros faisánidos de montaña: menos del 85 % en la perdiz de Sichuan, el faisán ensangrentado y la perdiz de nieve, y el 93,11 % en el faisán venerado (Fichas de la web, 2026).
- Faisán común
- En un estudio de Ohio la hembra salió del nido entre 26 y 112 veces durante los 23–24 días de incubación; otros dos hallaron que, si no se la molesta, sale una sola vez al día, con las pausas concentradas entre las 7:00 y las 9:30 y entre las 16:00 y las 18:00 y una duración media de 55,1 minutos (36–78); suele alimentarse a más de 50 m del nido (BOW, 2022 (faisán común)). Al comienzo de la incubación la hembra se levanta con facilidad y en silencio, corre diez o quince pasos y emprende el vuelo, sin fingir nunca estar herida; al acercarse la eclosión se vuelve muy clueca y no revela su nido, y si se la levanta dos o tres veces en dos días, lo abandona (Kozlowa, en Delacour) (Fichas de la web, 2026).
- Pavo real azul
- Según Sharma (1972), la hembra incuba casi 24 horas al día, y la eclosión suele ocurrir el día 29, algunos el 30 (Johnsgard, 1986).
- Pavo del Congo y argus
- En cautividad, la hembra del pavo del Congo permanece completamente inmóvil, con la cabeza baja sobre el lomo, y solo sale unos momentos a comer y beber (Roles, citado por Johnsgard); la del argus, según los criadores franceses, estuvo sentada sin levantarse para beber, comer ni defecar los 24 días, algo que Beebe no cree que pueda ser cierto, y supone que se alimenta de noche (Fichas de la web, 2026; Johnsgard, 1986).
- Faisán cola rosa malayo
- En el único nido seguido, la hembra incubó día y noche del 26 de febrero al 28 de marzo, y salía solo unos momentos para comer, beber o bañarse en polvo; los huevos eran infértiles (Johnsgard, 1986).
- Monal del Himalaya y gallo de Lafayette
- Beebe observó que la hembra del monal estaba tan inmóvil que no pestañeaba y apenas se movió cuando él pasó a seis metros; la hembra de Lafayette se sienta muy pegada al suelo y no deja los huevos hasta que el peligro está sobre ella (Fichas de la web, 2026).
Cuando la hembra se aleja a comer, algunas cubren los huevos: dos observadores, situados en los extremos del área del gallo de Sonnerat, cuentan que los tapa con hojas secas, aunque Beebe no obtuvo una confirmación reciente (Fichas de la web, 2026). La coloración protectora de la hembra de Lady Amherst favorece la incubación, y en el gallo de Lafayette las hojas secas del nido camuflan perfectamente a la hembra que incuba (Fichas de la web, 2026). Algunos nidos llevan un forro de plumas del pecho de la hembra (monal del Himalaya, Hume, Elliot, faisán común) (BOW, 2022 (faisán común); del Hoyo et al., 1994; Fichas de la web, 2026).
| Especie | Papel del macho durante la incubación | Fuente |
|---|---|---|
| Faisanes orejudos marrón y azul, cheer, koklas | Se mantiene muy cerca; en el marrón, parece ayudar a defender el nido; en el cheer, se une a la familia tras la eclosión | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán noble | Hace guardia a unos metros del nido y lo defiende con fiereza; se une a la hembra al eclosionar los pollos (aves cautivas de Beebe) | (Johnsgard, 1986) |
| Faisán plateado | No participa, aunque visita a la hembra una o dos veces al día | (Johnsgard, 1986) |
| Faisán dorado y de Lady Amherst | No defiende el nido ni cuida de los pollos; el dorado tiende más bien a distraer y acosar a las hembras | (Johnsgard, 1986) |
| Kalij, verde, Swinhoe, Hume, Mikado, venerado | No hay indicios de que defienda el nido ni proteja la puesta | (Johnsgard, 1986) |
| Monal del Himalaya | En la literatura hay alguna sugerencia de que ayuda a cuidar a los pollos, pero lo típico es que no participe | (Johnsgard, 1986) |
| Pavo del Congo | Pasa largos ratos junto al nido pero nunca incuba | (Johnsgard, 1986) |
| Gran argus y pavos reales | Gran argus: ningún indicio de que defienda el nido ni de que permanezca cerca; pavo real azul: la hembra se ocupa de todo el nido y la cría | (Johnsgard, 1986; Madge y McGowan, 2002) |
El papel del macho en la cría de los pollos se trata en el apartado de cuidado parental y en el capítulo sobre comportamiento.
Temperatura y humedad en el nido
Casi no hay datos de campo. En un nido de faisán común en Utah, en junio, la temperatura media en el cuenco fue de 29,6 °C (BOW, 2022 (faisán común)). Corder estima que, durante la incubación, la hembra mantiene los huevos, con su parche incubatriz, a unos 37,5 °C de media (Corder, s. f.). Según BOW, en el faisán común la incubabilidad bajó del 75 % a 17 °C al 42 % a 31 °C, y los huevos que no se incuban toleran, por periodos cortos, hasta –12 °C durante un total de 5,5 horas (BOW, 2022 (faisán común)). En el monal chino, a 3.900 m, la temperatura de abril ronda los 4–7 °C y puede caer hasta –10 °C con nieve, y la hembra incuba sola (del Hoyo et al., 1994). En la práctica de cautividad, las pautas de temperatura y humedad de incubadora se recogen en desarrollo y en el capítulo de avicultura.
Abandonos y perturbaciones
La molestia en el nido es una de las causas de abandono. En los dos estudios del faisán común que Johnsgard compara, la pérdida de nidos por abandono fue del 10,1 % de los fracasos en Wisconsin y del 50,8 % en Iowa, mientras que las pérdidas atribuidas a la maquinaria agrícola fueron del 40,5 % y del 7,2 % respectivamente (Johnsgard, 1986). Como ya se ha dicho, una hembra que ha sido levantada varias veces abandona la incubación, y los periodos de incubación más largos se asocian con más molestias (Fichas de la web, 2026; Johnsgard, 1986). En los seis nidos de faisán de Lady Amherst seguidos por Yang y colaboradores, cinco estaban a 50–150 m de las sendas del monte; los autores lo relacionan con que los depredadores atacan menos donde hay actividad humana y ganadera (Fichas de la web, 2026). En un nido del faisán Wallich, la hembra, de plumaje poco visible, se mantiene muy quieta sobre los huevos, cuyo color delata más que ella a los cuervos y monos que podrían atacarlos (Fichas de la web, 2026).
La eclosión en el nido
Los huevos eclosionan de forma casi sincrónica. En el faisán común, el proceso dura unas 12 horas, con una diferencia de 8–12 horas entre el primer y el último pollo; la hembra emite una llamada de maullido al final de la incubación; el pollo abre un orificio de unos 2 mm en el extremo grueso y, unas horas después, una hendidura circular casi completa; tras salir descansa una o dos horas hasta que el plumón se seca, y los nacidos por la mañana suelen dejar el nido por la tarde (BOW, 2022 (faisán común); Fichas de la web, 2026). Las cáscaras se quedan en el nido y los pollos se alejan poco después (Johnsgard, 1986). Corder explica la diferencia entre 22 y 23 días que dan algunos libros por el hecho de que la hembra que ha incubado sus propios huevos permanece sentada sobre los pollos todo el día siguiente a la eclosión, quizá para que se absorba el saco vitelino y los pollos aprendan a reconocer su llamada (Corder, s. f.).

Éxito reproductor, fracasos y supervivencia de los pollos
Cuántos nidos llegan a eclosionar, por qué se pierden y cuántos pollos llegan a la independencia: casi todas las cifras proceden del faisán común y de sus poblaciones introducidas.
El éxito de una población de faisanes depende de un encadenamiento de factores: la edad de la primera cría, el tamaño de la puesta, la fertilidad, el éxito del nido, la eclosión, la supervivencia de los pollos. Johnsgard señala que la medida más sencilla del resultado global es la tasa de reclutamiento del otoño o del comienzo del invierno, el porcentaje de aves jóvenes en la población, porque es el producto final de todas las variables (Johnsgard, 1986). Para el faisán común norteamericano, la proporción de jóvenes del año en las capturas de otoño fue, en promedio, de unos 60 %, valor cercano a la mortalidad media estimada de las hembras adultas (el 66 %) (Johnsgard, 1986). Para casi todas las demás especies, las cifras publicadas son escasísimas.
- 15–46 %de los nidos de faisán común llegan a eclosionar (8 estudios)
- 43–88 %de las hembras sacan al menos una nidada (media 57,6 %)
- 42 %de mortalidad de pollos entre la eclosión y el 1 de octubre (Wisconsin)
- 25 %de los pollos de gallo rojo cautivo superaron los dos primeros meses (San Diego)
El faisán común: lo mejor medido
Johnsgard resume, a partir de ocho estudios recogidos por Gates y Hale (1975) y de otros, los parámetros de las poblaciones silvestres norteamericanas (Johnsgard, 1986):
| Parámetro | Intervalo | Media |
|---|---|---|
| Éxito global de los nidos | 15–46 % | 26,4 % |
| Hembras que sacan una nidada | 43–88 % | 57,6 % |
| Huevos fértiles | 89–95 % | — |
| Huevos fértiles que eclosionan (nidos con éxito) | 85–96 % | 90,7 % |
| Todos los huevos que eclosionan (nidos con éxito) | 75–91 % | 84,8 % |
| Nidos destruidos por labores agrícolas | 0–74 % | 29,6 % |
| Nidos destruidos por depredadores | 3–78 % | 31,1 % |
| Jóvenes en la población de otoño | 47–83 % | 59,7 % |
Johnsgard (1986, tabla 15). Medias sin ajustar por tamaño de muestra. Los valores se leen en un ejemplar con ruido de escaneo; los que no se leen con claridad se han omitido.
La media de nidos con éxito es baja, pero más de la mitad de las hembras acaba sacando una nidada, lo que indica una fuerte capacidad de reposición; con una media estimada de 2,2 nidos por hembra, la mayoría de las que fracasan debió de anidar al menos una segunda vez (Johnsgard, 1986). En Inglaterra se estimó un 61 % de nidos con éxito (345 nidos) y un 83 % de éxito de eclosión de los huevos (210 nidos), cifras muy cercanas a las norteamericanas (Johnsgard, 1986). En un estudio de Wisconsin, Gates y Hale estimaron que el 88 % de las hembras que no habían sacado la primera nidada hicieron un segundo intento, aunque en esa zona las labores agrícolas causaban una gran mortalidad de nidos tardíos (Johnsgard, 1986).
| Dato | Wisconsin (Gates y Hale, 1975) | Iowa (Baskett, 1947) |
|---|---|---|
| Nidadas totales | 4.120 | 533 |
| Nidadas con éxito | 1.235 (29,9 %) | 136 (25,5 %) |
| Huevos que eclosionan | 90,7 % | 82,8 % |
| Éxito de los nidos (todas las nidadas) | 30,0 % | 32,4 % |
| Nidadas por hembra | 1,8 | — |
| Huevos por hembra | 18,6 | — |
| Fracasos por maquinaria agrícola | 40,5 % | 7,2 % |
| Fracasos por depredación | 39,2 % | 37,6 % |
| Fracasos por abandono del nido | 10,1 % | 50,8 % |
| Otras causas o desconocidas | 10,2 % | 4,4 % |
Johnsgard (1986, tabla 16). Los dos estudios dan un éxito de eclosión del nido casi idéntico con causas de pérdida muy distintas.
Johnsgard concluye que las pérdidas locales de una causa concreta, sea depredación, tiempo o actividad humana, pueden compensarse mediante la reposición, y que zonas con ambientes muy distintos pueden tener éxitos de eclosión y tasas de reclutamiento notablemente parecidos (Johnsgard, 1986). El Handbook of the Birds of the World y BOW añaden otras cifras: en el Reino Unido, de 52 nidos de hembras silvestres eclosionó el 49 % y de 30 nidos de hembras criadas a mano el 22 %; en 450 nidos, la supervivencia del nido fue del 28 % en la puesta, del 37 % en la incubación y del 10 % global; el éxito del nido fue del 62,3 % en bloques de hábitat no perturbados frente al 44,8 % en hábitats pequeños, lineales o perturbados (Iowa), del 23 % en zonas de control frente a un 53 % tras eliminar depredadores (Idaho), del 18,6 % y el 28,9 % en Minnesota (843 nidos), y del 20–25 % en campos de heno de Illinois frente al 60 % en cereales pequeños (BOW, 2022 (faisán común)). La estimación de BOW de producción por hembra y año es de 10 huevos × 0,25 de éxito de eclosión × 0,65 de supervivencia de los pollos, es decir, 1,6 pollos por hembra que llegan a las seis semanas (BOW, 2022 (faisán común)).
En otras especies
Los datos de otras especies son anecdóticos:
- Tragopán de Cabot
- De 15 nidos seguidos, 13 se perdieron: nueve por depredación, dos por mal tiempo (nevada durante la puesta o lluvia continua durante la incubación) y dos por otras causas (del Hoyo et al., 1994).
- Pavo real azul
- Sharma (1972) halló un éxito de eclosión del 64 % (206 pollos de 321 huevos) (Johnsgard, 1986).
- Faisán de Elliot
- En cautividad en Ohio, la fertilidad fue de alrededor del 52 % en casi 5.000 huevos y la eclosión, del 68 % de más de 2.500 huevos fértiles (Knoder, 1983) (Johnsgard, 1986).
- Faisán venerado
- En Ohio, nueve hembras sueltas pusieron entre el 7 de abril y el 7 de mayo, con el máximo de eclosiones entre el 21 y el 31 de mayo, y no hubo indicio de reposición en esa pequeña muestra (Johnsgard, 1986).
- Faisán plateado y monal de Sclater
- En Guangdong, un nido de 12 huevos los vio eclosionar todos (del Hoyo et al., 1994); en Yunnan, los 11 huevos de cuatro nidos del monal de Sclater eclosionaron, un 100 % que contrasta con la tasa del faisán común (Fichas de la web, 2026). El faisán dorado alcanzó el 90 % de eclosión en un estudio chino (Fichas de la web, 2026).
- Koklas y monal chino
- En cautividad, el koklas tiene una infertilidad del 35–40 % según el libro del autor; en el monal chino, los censos de Baoxing sugieren que la especie puede tardar varios años en alcanzar la madurez y quizá no cría todos los años (Fichas de la web, 2026).
Por qué se pierden nidos y pollos
- Depredación
- Es la causa mejor documentada de pérdida de nidos y de pollos: del 3 al 78 % de los nidos de faisán común norteamericano (media del 31,1 %), según el estudio, y, en Iowa, el 85 % de la mortalidad de pollos se atribuyó a mamíferos y el 15 % al clima (BOW, 2022 (faisán común); Johnsgard, 1986). El tragopán de Cabot pierde sus nidos sobre todo por esa causa (del Hoyo et al., 1994). Véase el capítulo de ecología para los depredadores y su efecto en las poblaciones.
- Labores agrícolas
- En el faisán común, hasta el 74 % de los nidos de un estudio, y el 40,5 % de los fracasos en Wisconsin, se debieron a maquinaria (siega del heno, sobre todo) (Johnsgard, 1986).
- Abandono y molestia
- El 50,8 % de los fracasos de Iowa (Johnsgard, 1986); véase el apartado anterior.
- Clima
- La lluvia, el frío, la nieve y las inundaciones eliminan nidos y pollos. Los pollos de faisán común son muy sensibles al frío y a la humedad en los primeros días (BOW, 2022 (faisán común); Johnsgard, 1986); el tragopán de Blyth y el pavo real azul pueden situar el nido en alto para evitar las crecidas (Fichas de la web, 2026; Johnsgard, 1986); en el monal chino y el ensangrentado, la nieve rodea todavía a veces los nidos (del Hoyo et al., 1994; Johnsgard, 1986).
Supervivencia de los pollos hasta la independencia
El periodo de cría es crítico: es en las primeras semanas de vida cuando la mortalidad es más alta, y el éxito o el fracaso de una población local pueden decidirse por el tiempo y otros factores que actúan entonces (Johnsgard, 1986). Gates y Hale (1975) concluyeron que el tamaño de las nidadas observadas en el campo es un mal indicador de la mortalidad juvenil, porque los pollos de nidadas tardías tienden a mezclarse con otras; los tamaños de nidada a las cuatro a seis semanas son la mejor estima, y con ellos la mortalidad entre la eclosión y el 1 de octubre fue en promedio del 42 % en seis años (Johnsgard, 1986). Otros estudios norteamericanos dan entre el 35 y el 56 %, y la mayoría de los observadores cree que la mayor parte de las pérdidas ocurre pocos días después de la eclosión, cuando los pollos son especialmente sensibles al frío y a la humedad; algunos estudios correlacionan la eclosión tardía con más mortalidad y otros con menos (Johnsgard, 1986). En Illinois, la supervivencia de los pollos hasta las 5–6 semanas pasó del 78 % en los años cincuenta al 54 % a finales de los setenta; en el norte de Iowa, la mortalidad aumentó un 2,3 % por cada día de eclosión posterior a la fecha mediana (15 de junio) y disminuyó un 10 % por cada gramo de masa al nacer por encima de la media (BOW, 2022 (faisán común)). BOW también señala que la exposición repetida de pollos de menos de siete días a temperaturas moderadas de 20–25 °C puede retrasar su resistencia al frío y aumentar la mortalidad (BOW, 2022 (faisán común)).
Los datos de otras especies son casi inexistentes. Collias y colaboradores (1966) estimaron que solo el 25 % de los pollos nacidos en la población semisilvestre de gallo rojo del zoo de San Diego sobrevivió hasta la disolución de la familia, es decir, una mortalidad de alrededor del 75 % en los dos primeros meses, y otro 76 % murió desde entonces hasta el final de su primer año, cifras no muy distintas del 81,4 % de mortalidad del faisán común danés en el primer año (Paludan, 1959) y del 82,4 % anual de los jóvenes radiomarcados en Wisconsin (Dumke y Pils, 1973) (Johnsgard, 1986). En el pavo real verde, Beebe vio en Pahang a una hembra seguida por seis pollos, pero parece que solo dos suelen llegar a la madurez (Fichas de la web, 2026). HBW reconoce que la mortalidad de los pollos es muy poco conocida y que faltan datos para la mayoría de los fásidos; en el faisán común se sugiere que los cambios bruscos de tiempo, que mojan y enfrían a las aves, explican las pérdidas (del Hoyo et al., 1994). Para la mortalidad posterior y las densidades, véase el capítulo de ecología.
Cuidado parental en libertad
Qué hacen la hembra y el macho con la nidada, cuánto dura la familia y qué se sabe de las nidadas que se mezclan.
Los pollos de los faisanes son nidífugos: nacen con plumón, los ojos abiertos y las patas desarrolladas, y se alimentan por sí mismos poco después de salir del cascarón (del Hoyo et al., 1994; Johnsgard, 1986). Eso hace que la tarea parental se reduzca a calentar a los pollos, guiarlos hacia el alimento y vigilar a los depredadores, y que, según el Handbook of the Birds of the World, la presencia de un segundo adulto rara vez duplique la eficacia con que se hacen esas tareas; por eso en muchas especies la familia queda formada solo por la hembra y los pollos (del Hoyo et al., 1994). Lo que sigue se limita a lo observado en libertad o a lo que las fuentes señalan como general; el comportamiento de la madre y de las crías (llamadas, escondite, impronta) está en el capítulo sobre comportamiento, y el cuidado artificial, en el de avicultura.
La hembra: guía, calor y alimento
En los faisanes de campo abierto y de borde, como el común, el gallo rojo, el dorado o el verde, los pollos son cuidados exclusivamente por la hembra (BOW, 2022 (faisán común); Johnsgard, 1986). Tras la eclosión, la hembra del dorado apenas hace otra cosa que empollar a los pollos durante los primeros días; más tarde los llama cuando encuentra comida, que ofrece de pico a pico o deja caer delante de ellos (Fichas de la web, 2026; Johnsgard, 1986). En los argus, la hembra alimenta a los pollos de pico a pico desde que nacen: en San Diego, una hembra de gran argus abandonó el nido con sus dos pollos al día siguiente de la eclosión y siguió alimentándolos así más de 40 días, hasta que los retiraron del recinto; los empolló en el suelo la primera semana y luego en una rama muerta a unos dos pies de altura, bajo el ala, y durante la segunda semana los pollos subían medio trepando medio volando (Fichas de la web, 2026; Johnsgard, 1986). Los pollos de los tragopanes pueden volar hasta perchas elevadas a los dos o tres días y duermen bajo las alas de la madre, como los de pavos reales y argus, pero crecen despacio y son sensibles a la enfermedad y al frío (Johnsgard, 1986). Los de tragopán satyr pasan de cinco a seis noches en el nido (Fichas de la web, 2026).

El vuelo llega pronto. En el faisán común, los primeros vuelos cortos ocurren hacia los 7–12 días, y los pollos permanecen con la hembra de 70 a 80 días, hasta que la nidada se independiza y los jóvenes pasan al área de invernada a fines del otoño o comienzos del invierno (BOW, 2022 (faisán común)). En el gallo rojo, los pollos de la población semisilvestre estudiada volaron al día 12; el HBW señala 10–14 días como edad típica del primer vuelo en los fásidos y que muchos pollos tienen el tamaño de un adulto hacia los dos meses (del Hoyo et al., 1994). En el dorado, los pollos vuelan a los 12–14 días y la hembra los cuida hasta los cuatro meses, cuando están casi crecidos (Fichas de la web, 2026; Johnsgard, 1986). Johnsgard anota, además, que en pocos días los tragopanes y el argus de Rheinard alcanzan una capacidad de vuelo limitada (Johnsgard, 1986). Las fichas recogen otros casos de pollos muy precoces: los del gallo rojo siguen a la madre y se esconden casi en cuanto se secan (Beebe), los del koklas vuelan bien en pocos días (Baker) y los del monal chino, según Schafer (1934), aparecen en mayo con la madre y, al alarmarse, se esconden bajo sus alas; una nidada de cinco jóvenes buscaba alimento con ella en una mañana de niebla (Fichas de la web, 2026; Johnsgard, 1986).
El macho: de nada a mucho
El macho participa muy poco en la mayoría de las especies, pero hay excepciones. Johnsgard y las fichas recogen los casos siguientes, que se amplían en el capítulo de apareamiento:
| Especie | Papel del macho tras la eclosión | Observación | Fuente |
|---|---|---|---|
| Faisán Wallich (cheer) | Se une a la familia, ayuda a atender y a proteger a los pollos y se implica tanto como la hembra | Familias que probablemente permanecen juntas todo el invierno, origen de los grupos de 5–10 o 15 aves | (Fichas de la web, 2026; Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán ensangrentado | Los dos sexos cuidan a los pollos (Madge y McGowan) | Bandadas de invierno de familias reunidas desde octubre | (Fichas de la web, 2026; Madge y McGowan, 2002) |
| Gallo de Sonnerat y kalij | Vuelve a la nidada y busca alimento para los pollos; en el kalij, se ha visto a un macho cuidando pollos que no tenían madre | Observaciones de Beebe y de Baker | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán noble | Al eclosionar los pollos se junta con la hembra y ya no se separan | Observado por Beebe en cautividad | (Johnsgard, 1986) |
| Faisán pavo de Palawan | Ambos sexos llaman a los pollos y los ayudan a comer | Cautividad (Jeggo, 1975) | (Johnsgard, 1986) |
| Faisán pavo malayo | Los padres cuidan y empollan al pollo; mayor papel del macho de lo habitual | Una pareja cautiva (Bruning) | (Johnsgard, 1986) |
| Monal del Himalaya | En verano y principios de otoño se reúne la hembra, los pollos y, con frecuencia, el macho | Observación de Beebe; según Johnsgard, lo habitual es que el macho no participe | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán común, dorado, Lady Amherst, pavo real azul | Ninguno; en el dorado, más bien distrae a las hembras | Beebe vio a algún macho cautivo de pavo real azul acompañar a los pollos y picotear comida para ellos | (Fichas de la web, 2026; Johnsgard, 1986) |
La mayoría de los casos de participación del macho proceden de aves cautivas o de observaciones aisladas. HBW recoge que, en las especies monógamas, el vínculo dura al menos una temporada y ambos progenitores ayudan a criar; en las poligínicas, la familia se reduce a la hembra y los pollos (del Hoyo et al., 1994).
Cuánto dura la familia y cuándo se mezclan las nidadas
En muchas especies de campo abierto, las familias, con los jóvenes, se ven en grupos durante varios meses y a veces hasta el comienzo de la cría siguiente, y algunas familias se unen a otras para formar bandadas mayores (del Hoyo et al., 1994). Johnsgard supone que en el cheer los grupos de familias de cinco a diez o quince aves proceden de familias que permanecen juntas todo el invierno (Johnsgard, 1986). En el faisán ensangrentado y en el koklas hay bandadas de invierno que se forman a partir de las familias; en el koklas los jóvenes permanecen unidos hasta comienzos de la primavera (Fichas de la web, 2026).
Las nidadas se mezclan a menudo hacia el final del verano, y eso dificulta medir la mortalidad de los pollos. Según Gates y Hale (1975, en Johnsgard), las nidadas nacidas al comienzo de la temporada de eclosión mostraban poca tendencia a combinarse más adelante, mientras que las nacidas más tarde se amalgamaban con mayor frecuencia (Johnsgard, 1986). Fuera de estas observaciones, las fuentes no describen en los faisanes una cría comunal en sentido estricto, con varias hembras que críen en común: BOW dice, para el faisán verde, que el cuidado corresponde solo a la hembra y que no se ha documentado cría cooperativa (Fichas de la web, 2026). Las nidadas numerosas se atribuyen más bien a puestas de dos hembras (véase el apartado sobre puestas comunales) o a la fusión de familias (del Hoyo et al., 1994; Johnsgard, 1986).
Fecundidad, edad y condición de la hembra
Cómo cambia la puesta con la edad, la alimentación y la historia de cada línea, y qué hay detrás de las grandes diferencias entre aves silvestres y de criadero.
Una hembra de faisán no pone siempre lo mismo. La puesta depende de su edad, de su estado físico en la primavera, de la comida disponible y, en cautividad, de si se le retiran los huevos. Las fuentes sobre la fecundidad de aves silvestres de edad conocida son casi inexistentes; lo que hay procede sobre todo de criadores y de estudios con aves en recintos, y debe leerse así.
La edad
En las especies que alcanzan la madurez en el primer año, las hembras de primer año ponen menos y más tarde que las adultas. Howman (1979) afirma que las aves de primer año ponen entre una y dos semanas después que las maduras y suelen ser menos prolíficas (Howman, 1979). El mejor ejemplo numérico lo da Johnsgard para el faisán cobrizo en cautividad: las hembras ponen desde su primer año hasta al menos los siete, con un pico de 21–31 huevos al año entre los tres y los seis años de edad; las de primer año ponen una media de 10 huevos por temporada y las de dos o de siete años, menos de 20 (Johnsgard, 1986). En el faisán común, Perkić y Leporati (en Glutz, 1973, según Johnsgard) hallaron que las hembras de segundo y tercer año tienen en general mayor capacidad reproductora que las de primer año (Johnsgard, 1986). Johnsgard añade que en las especies que normalmente solo crían en su segundo año, las de un año pueden intentarlo, pero por lo general con poco éxito (Johnsgard, 1986).
| Especie | Qué se observa según la edad | Fuente |
|---|---|---|
| Faisán cobrizo (cautividad) | Primer año: media de 10 huevos por temporada; 2 y 7 años: menos de 20; 3–6 años: 21–31 | (Johnsgard, 1986) |
| Faisán común | Hembras de segundo y tercer año con mayor capacidad reproductora que las de primer año; en las de un año, los tres primeros y los tres últimos huevos pueden tener la cáscara más clara; en libertad, la supervivencia anual de las hembras adultas es del 21–46 % y la de los machos, del 7 %, de modo que casi todas las aves silvestres mueren a los tres años | (BOW, 2022 (faisán común); Johnsgard, 1986) |
| Faisán dorado | Según Gerrits, 10–12 huevos por temporada en una hembra joven y 30–40 en las de más de un año; en cautividad, las hembras de primer año ponen ya, pero los machos de esa edad no tienen todavía el plumaje ni el vigor del adulto y pocos logran aparearse | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán de Lady Amherst | Puestas de 6–12 al menos en hembras de dos años o más; las hembras suelen poner ya en su primer año, mientras que los machos no alcanzan el plumaje completo hasta el segundo | (Fichas de la web, 2026; Johnsgard, 1986) |
| Faisán Hume | Las hembras de primer año pueden poner puestas menores | (Johnsgard, 1986) |
| Orejudo marrón | Las puestas menores pueden ser de hembras de primer año o de reposición | (Madge y McGowan, 2002) |
| Faisán pavo de Palawan | La puesta es de 2, pero a veces de 1 huevo, sobre todo en hembras jóvenes | (Johnsgard, 1986) |
| Faisán plateado y pavo malayo | Ha criado al año de edad en cautividad (plateado); un macho de pavo malayo fue padre todavía con plumaje subadulto | (del Hoyo et al., 1994) |
| Monal chino y pavos reales | Los machos alcanzan la madurez a los 3 años y las hembras a los 2 (monal chino); el plumaje completo del macho de pavo real tarda hasta cuatro años | (del Hoyo et al., 1994; Madge y McGowan, 2002) |
Las edades de madurez de cada especie se comparan en el capítulo sobre crecimiento y desarrollo.
La vida media de las aves silvestres es corta: el faisán común puede vivir casi ocho años en libertad y más en cautividad, pero con las supervivencias anuales de arriba, pocas hembras llegan a su pico reproductor (BOW, 2022 (faisán común); Johnsgard, 1986). Johnsgard observa que muchas de las especies de mayor longevidad en cautividad (el gran argus, los faisanes pavo y los tragopanes) son las de menor potencial reproductor en libertad (huevos grandes, puestas pequeñas y madurez tardía), y supone que esa longevidad refleja una vida también larga en libertad (Johnsgard, 1986). Los registros más altos de Mitchell (1911), que cita, son de 179 meses para el faisán pavo gris, 163 para el gran argus y 161 para el kalij, y Delacour (1977) tuvo un argus de Rheinard casi 20 años (Johnsgard, 1986).
La condición y la comida
Johnsgard, a partir de los estudios de Gates y Hale (1975), propone que el momento de la puesta de cada hembra de faisán común, dentro de los límites que fija el fotoperiodo, depende de su estado físico al final del invierno y de la rapidez con que reúne las reservas de energía que exige la puesta (Johnsgard, 1986). En el capítulo sobre ecología se trata la condición física de la hembra y la comida de invierno. Los criadores dan la misma importancia a la alimentación: Howman (1979) recomienda cambiar en febrero del pienso de mantenimiento a uno de reproductores con más proteína y vitaminas, y avisa de que la mala calidad del alimento y una transición tardía retrasan la puesta (Howman, 1979). Chintaguay añade que la puesta y el tamaño corporal varían de forma significativa con la disponibilidad y la calidad del alimento, en especial con la proteína, que son características heredables, y que cuantas más generaciones separan a las aves de la vida silvestre, más huevos ponen las hembras (siempre que no haya problemas de endogamia) (del Campo, 2006).
La retirada continuada de los huevos estimula la puesta de muchos más huevos de los que se ven nunca en libertad, aunque lleva un riesgo de estrés reproductor; pero como las hembras de faisán común han llegado a poner más de 100 huevos al año y las gallinas domésticas más de 300, Johnsgard cree que el peligro es probablemente escaso mientras la dieta sea plenamente adecuada durante toda la puesta (Johnsgard, 1986). Este mecanismo es la causa principal de la diferencia entre las puestas de la tabla de cautividad y las de libertad.
Fertilidad
La fertilidad de los huevos es alta en el campo: del 89 al 95 % de los huevos de faisán común del Medio Oeste norteamericano eran fértiles, y solo el 61,5 % de los huevos caídos (BOW, 2022 (faisán común); Johnsgard, 1986). En cautividad hay especies con valores bajos: en el faisán de Elliot, el 52 % de unos 5.000 huevos (Johnsgard, 1986); en el koklas, según el libro del autor, una infertilidad del 35–40 % (Fichas de la web, 2026). Corder señala una diferencia de manejo con consecuencias: el dorado y el de Lady Amherst parecen necesitar una sola cópula para fertilizar todos los huevos de la hembra, mientras que otras especies, como el monal, parecen necesitar que el macho fertilice cada huevo, y el huevo fecundado se pone unos seis días después de la cópula (Corder, s. f.).
Cuadro comparativo por grupos
Faisanes de bosque, de campo abierto, tragopanes, monales, gallos, pavos, argus y espoloneros, lado a lado.
La tabla resume lo anterior por grupos. Es una simplificación: dentro de cada grupo hay excepciones, y para muchas especies los datos de campo se reducen a uno o dos nidos. Los periodos de incubación son los de las fuentes citadas (casi todos de cautividad) y se comparan con detalle en el capítulo sobre crecimiento y desarrollo.
| Grupo | Época y lugar del nido | Huevos | Puesta (libertad) | Incubación (días) | Quién cuida | Éxito y pérdidas |
|---|---|---|---|---|---|---|
| Tragopanes (Tragopan; bosque de montaña) | Abril–julio; árboles, tocones y nidos viejos de córvidos o ardillas, de 0,5 a 13 m | Ante o crema con motas pardas, 50–65 mm; 44–63 g | 2–5 (Cabot, 3–5) | 26–30, normalmente 28 | Hembra sola; pollos que vuelan a perchas a los 2–3 días | Cabot: 13 de 15 nidos perdidos (9 por depredadores, 2 por el tiempo) |
| Monales (Lophophorus; roquedos y bosque subalpino) | Abril–julio; rascado en el suelo bajo una roca o un arbusto; Sclater, repisas de acantilado | Crema con motas pardo rojizas, 63–73 mm; 70–99 g | 3–6 (Himalaya, 3–5; Sclater, 2–3) | 27–29 (28) | Hembra sola; hasta el 97,2 % del tiempo en el nido en Sclater | Sclater: 11 de 11 huevos eclosionaron (cuatro nidos) |
| Faisán ensangrentado y koklas (bosque y matorral de montaña) | Abril–junio; hueco en el suelo bajo arbusto o roca | Rosados o ante con manchas pardas; 48–51 mm; 29–40 g | Ensangrentado 2–7; koklas 5–7 | 26–29 (ens.); 26–27 (kok.) | Hembra; en el ensangrentado, ambos sexos cuidan a los pollos | Poco conocido |
| Orejudos y cheer (laderas abiertas, pinares y encinares) | Abril–junio; suelo, al pie de roca, peñasco o árbol caído | Crema muy pálido a verde piedra, casi sin manchas; 53–60 mm; 44–72 g | Orejudos 4–14; cheer 9–10 (hasta 14) | 24–28; cheer 26 | Hembra incuba; macho cerca y se une a la familia (cheer, orejudos) | Familias que forman bandadas en invierno |
| Gallos (Gallus; borde de bosque y bambú) | Estación seca o monzón; hueco bajo arbusto o bambú, a veces tocón o nido viejo | Blancos a crema o ante, lisos; 44–47 mm; 29–33 g | 2–6 (Lafayette 2; rojo 5–6; Sonnerat 4–5; verde 3–4) | 18–21 | Hembra; en Sonnerat y kalij, el macho se acerca a los pollos | Una puesta al año; reposición con 3–4 huevos; San Diego, 25 % de pollos a los 2 meses |
| Gallofaisanes (Lophura; bosque) | Febrero–octubre según la especie; suelo, raíces tabulares, nidos de hojas y bambú | Crema, rosados o ante; 45–54 mm; 32–48 g | 2 (Salvadori) a 6–9 (kalij), 7 (plateado), 4–8 (los firebacks) | 20–26 | Hembra; en el noble, el macho vigila | Puestas menores en las especies tropicales |
| Faisanes de cola larga, común y verde (Syrmaticus, Phasianus; borde de bosque y campo abierto) | Marzo–julio; suelo bajo hierba, árbol caído o matorral | Oliva a crema; 43–55 mm; 28–46 g | 6–15 en el común y venerado; 6–10 en los otros | 22–28 | Hembra sola | Común: éxito de nido 15–46 %; reposición hasta 3 veces; mortalidad de pollos del 35–56 % hasta octubre |
| Faisanes con esclavina (Chrysolophus; bosque y matorral) | Abril–junio; suelo bajo arbustos | Beige a crema, sin manchas; 44–46 mm; 28–31 g | 6–8 (China; dorado), 6–7 (Lady Amherst) | 22–24 | Hembra sola; el macho no defiende el nido | Dorado, 90 % de eclosión en un estudio chino |
| Espoloneros (Polyplectron; bosque tropical) | Febrero–junio o casi todo el año; suelo entre raíces, en bambú o sobre un termitero | Blanco ante o crema, a veces con hoyuelos; 45–53 mm; 35–42 g | 1–2 (malayo 1); varias puestas por temporada | 18–23 | Hembra; en Palawan y en un malayo cautivo, también el macho | Reposición cada tres a cuatro semanas |
| Argus (Rheinardia y Argusianus; bosque tropical) | Marzo–julio; depresión entre raíces tabulares | Ante rosado a rojizo con motas pardas; 64–68 mm; 74–75 g | 2 | 24–25 | Hembra sola; alimenta de pico a pico | Pocos nidos descritos |
| Pavos (Pavo, Afropavo; sabana, bosque y selva) | Con las lluvias; suelo bajo arbustos espinosos o hierba; Congo, plataformas y suelo | Crema a café con leche, casi sin manchas; 59–73 mm; 72–115 g | 3–6; Congo, 2–3 | 26–30 | Hembra sola; el macho de Congo se queda junto al nido | Pavo azul: 64 % de eclosión de 321 huevos |
Resumen de los apartados anteriores; fuentes: Johnsgard (1986), Madge y McGowan (2002), HBW (1994) y fichas de la web. Los rangos son los de las especies del grupo en las tablas de cada apartado.
Tres rasgos atraviesan los grupos. El primero es el ambiente: las especies de campo abierto y de borde de bosque ponen más huevos, proporcionalmente más pequeños, con reposición, y apuestan por la cantidad; las de bosque cerrado, sobre todo las tropicales, ponen pocos huevos grandes de pollos muy precoces y repiten la puesta a lo largo del año (del Hoyo et al., 1994; Johnsgard, 1986). El segundo es el nido: casi todos son un hueco en el suelo, y las especies que anidan en alto (tragopanes, algunos gallos) o en repisas de roca (monal de Sclater) lo hacen, según Beebe, para evitar a los enemigos terrestres y las inundaciones, aunque en el tragopán de Cabot se perdieron 13 de 15 nidos arbóreos, nueve de ellos por depredación (Beebe, 1918; del Hoyo et al., 1994; Fichas de la web, 2026). El tercero es el cuidado: solo la hembra incuba en todas las especies y solo en unas pocas el macho se implica en la cría (Johnsgard, 1986).
Bibliografía
Obras citadas en este capítulo, por orden alfabético.
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1922). A Monograph of the Pheasants, vol. III. Londres: H. F. Witherby (para la New York Zoological Society). Se cita para el koklas, el faisán común, el faisán verde y el faisán Wallich (cheer), en la lectura directa del volumen y, para los pasajes que citan las fichas de esta web, a través de ellas.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association (Warrington). Folleto sin fecha de edición, redactado desde la práctica del Reino Unido; cita como obra más reciente sobre el tema la de Howman (1993) y la de Cooper (2003).
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
- Giudice, J. H., Ratti, J. T. y Mlodinow, S. G. (2022). Ring-necked Pheasant (Phasianus colchicus), versión 1.1. En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe1. Se cita a través de la ficha del faisán común de esta web, que consultó la página.
- Hernández García, I. (2026). Fichas monográficas de especie de Faisanes del Mundo (en especial las del faisán común, el verde, el dorado, el de Lady Amherst, el Wallich, el argus de Rheinard, el gran argus, el ensangrentado, los tragopanes y los monales), cada una con sus fuentes. Fundación Zoo Koki, faisanesdelmundo.com. Se citan cuando el dato procede de una ficha y no se ha podido contrastar con la fuente que ella recoge.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Yang Lan (杨岚) et al. (1992). 中国雉类 白腹锦鸡 [The Chinese Phasianids: Lady Amherst’s Pheasant]. Pekín: China Forestry Publishing House. Libro en chino con resumen en inglés; se cita solo a través de lo que recogen las fichas del faisán dorado y del faisán de Lady Amherst de esta web (datos de ADN mitocondrial).
Cómo citar este capítulo: Hernández García, I. (2026). Biología reproductiva de los faisanes. En Faisanes del Mundo, guía general. Fundación Zoo Koki, faisanesdelmundo.com/guia/reproduccion.php.